Une synthèse des pelouses dunaires maritimes de l’Europe occidentale
Title
An overview of coastal dune grasslands in Western Europe
Résumé
Cet article concerne une tentative de synthèse sur les végétations de pelouses maritimes arrière-dunaires plus ou moins fixées de l’Europe occidentale, de la Norvège au Portugal. Outre une description synthétique des alliances et des associations, ces dernières sont placées dans deux schémas systémiques combinant l’ensemble des vingt géosigmetums des dunes sèches de la zone d’étude concernée.
Abstract
This paper deals with sand-dune vegetation along the European-atlantic coasts, from Norway to Portugal. Synthetic tables show the floristic composition of communities, dealing with perennials, annuals, bryophytes and lichens vegetation. Then two tables show the twenty geosigmetums that can be recognized in the studied area.
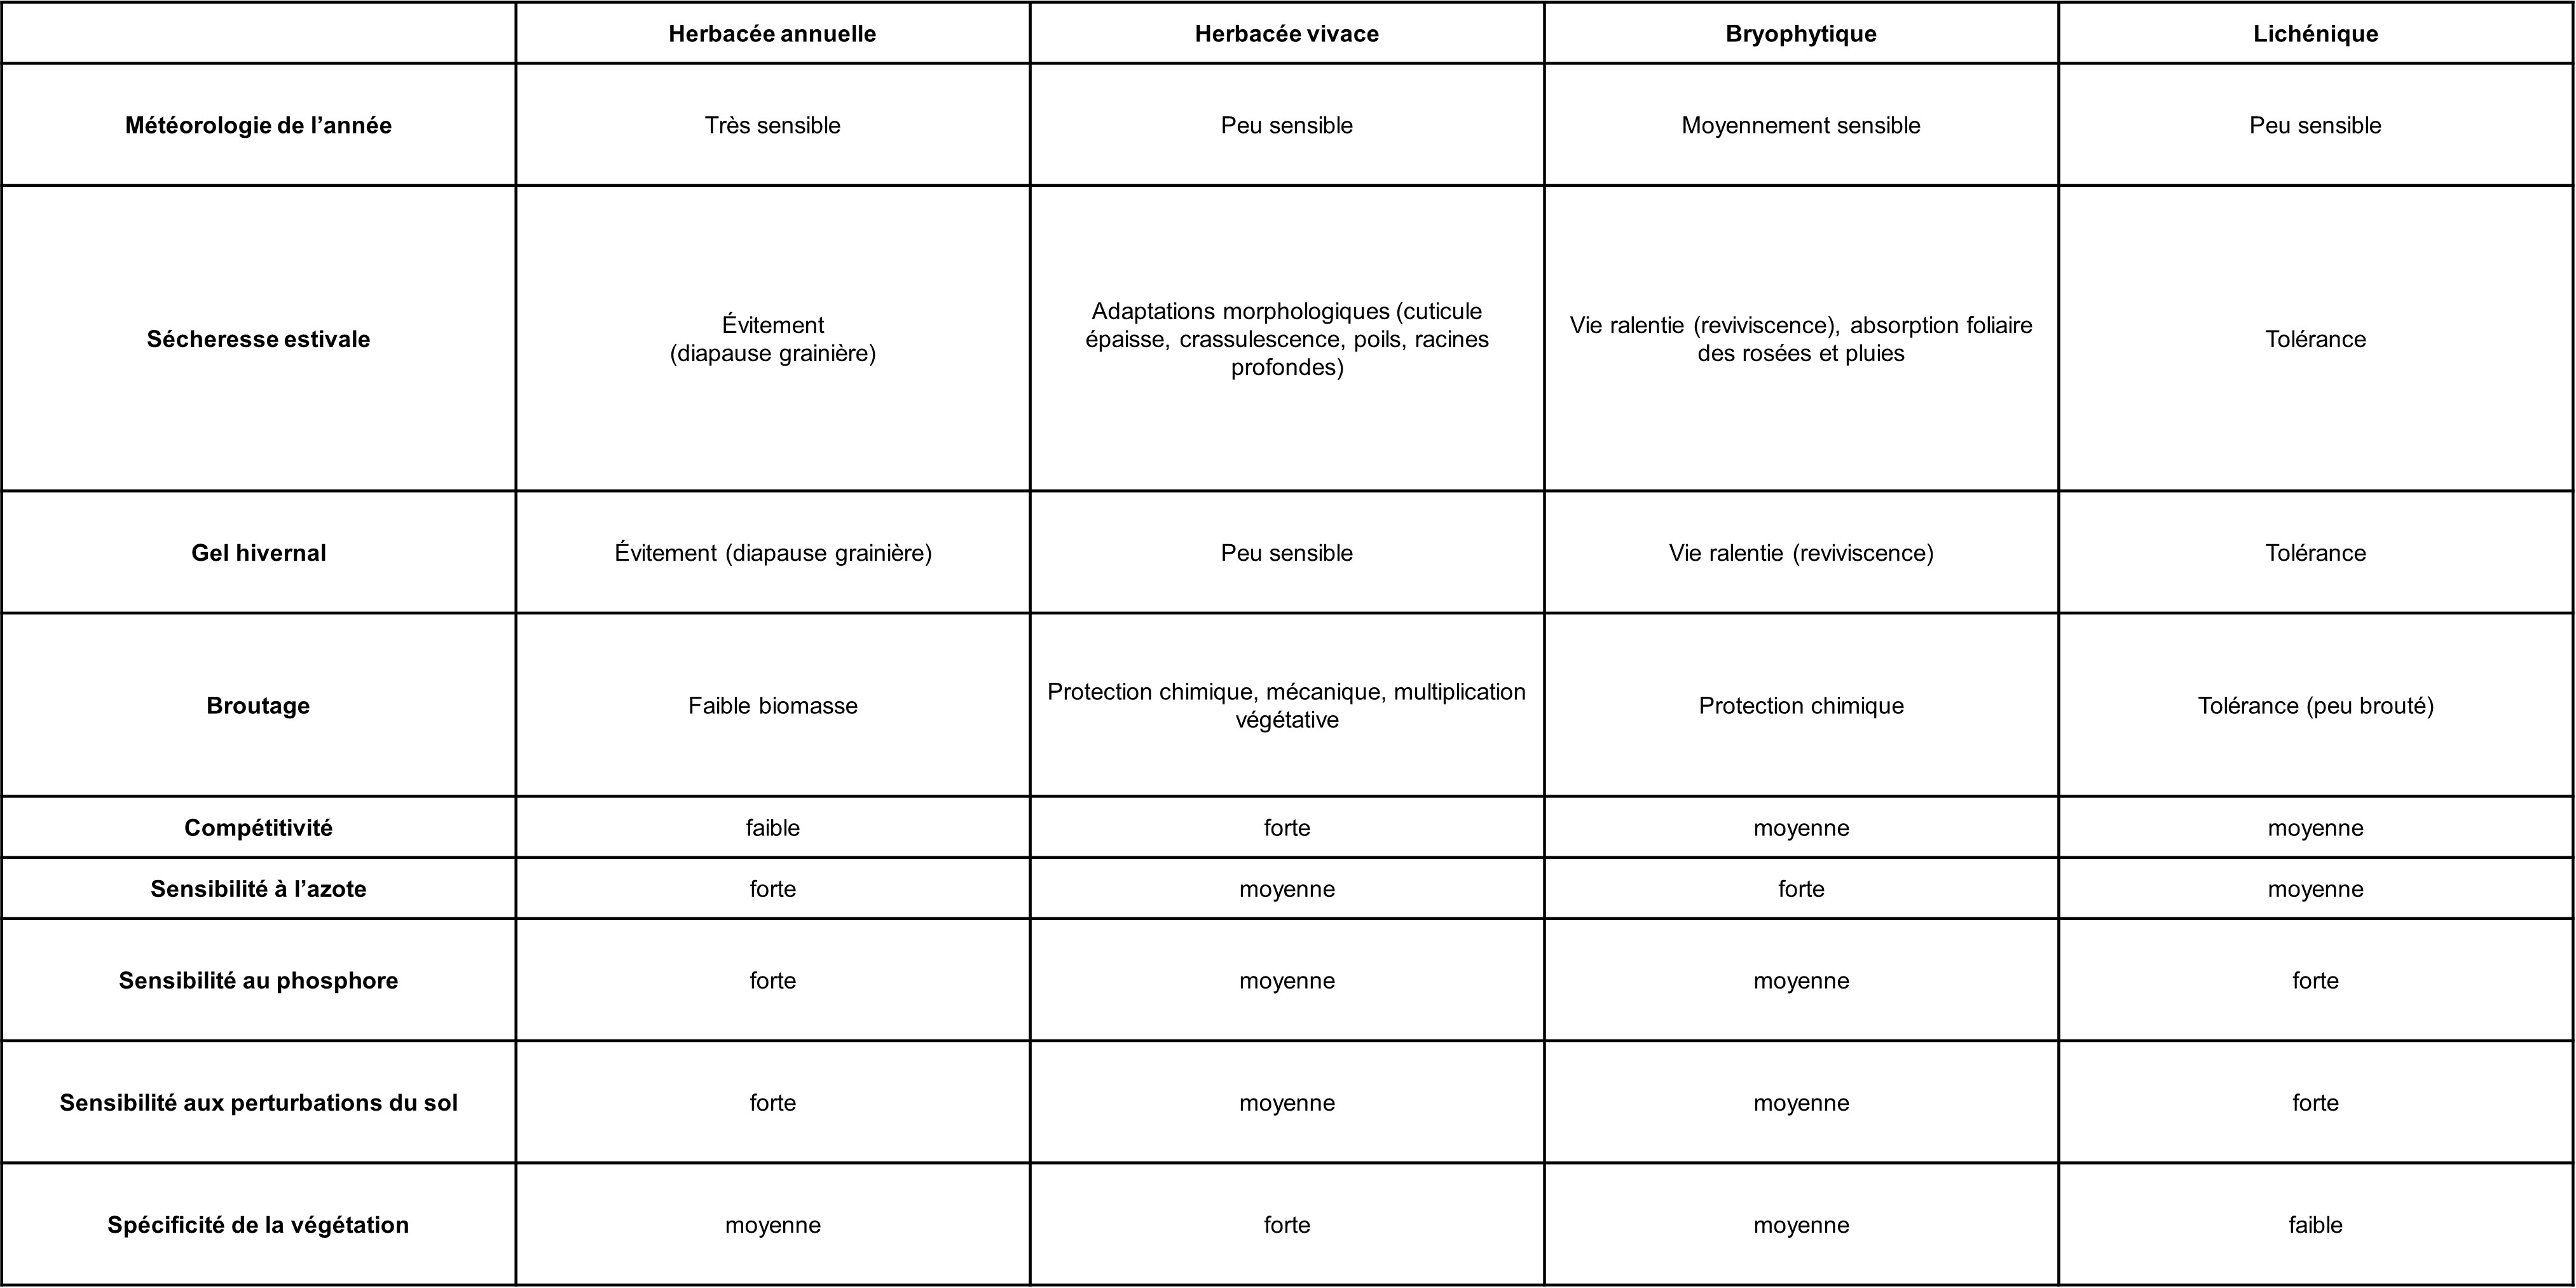
Dans un article précédent (Julve, 2024) nous explicitions les arguments synusiaux qu’il nous paraissait nécessaire d’adopter pour l’étude phytosociologique de la végétation des dunes noires fixées à Syntrichia ruraliformis, celles-ci constituant des phytocénoses à quatre composantes possibles : herbacée vivace, herbacée annuelle, bryophytique et lichénique. Il peut être utile de résumer ces arguments en un tableau (tableau 1).
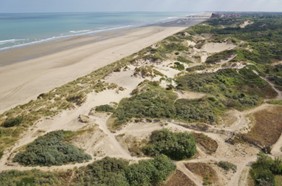
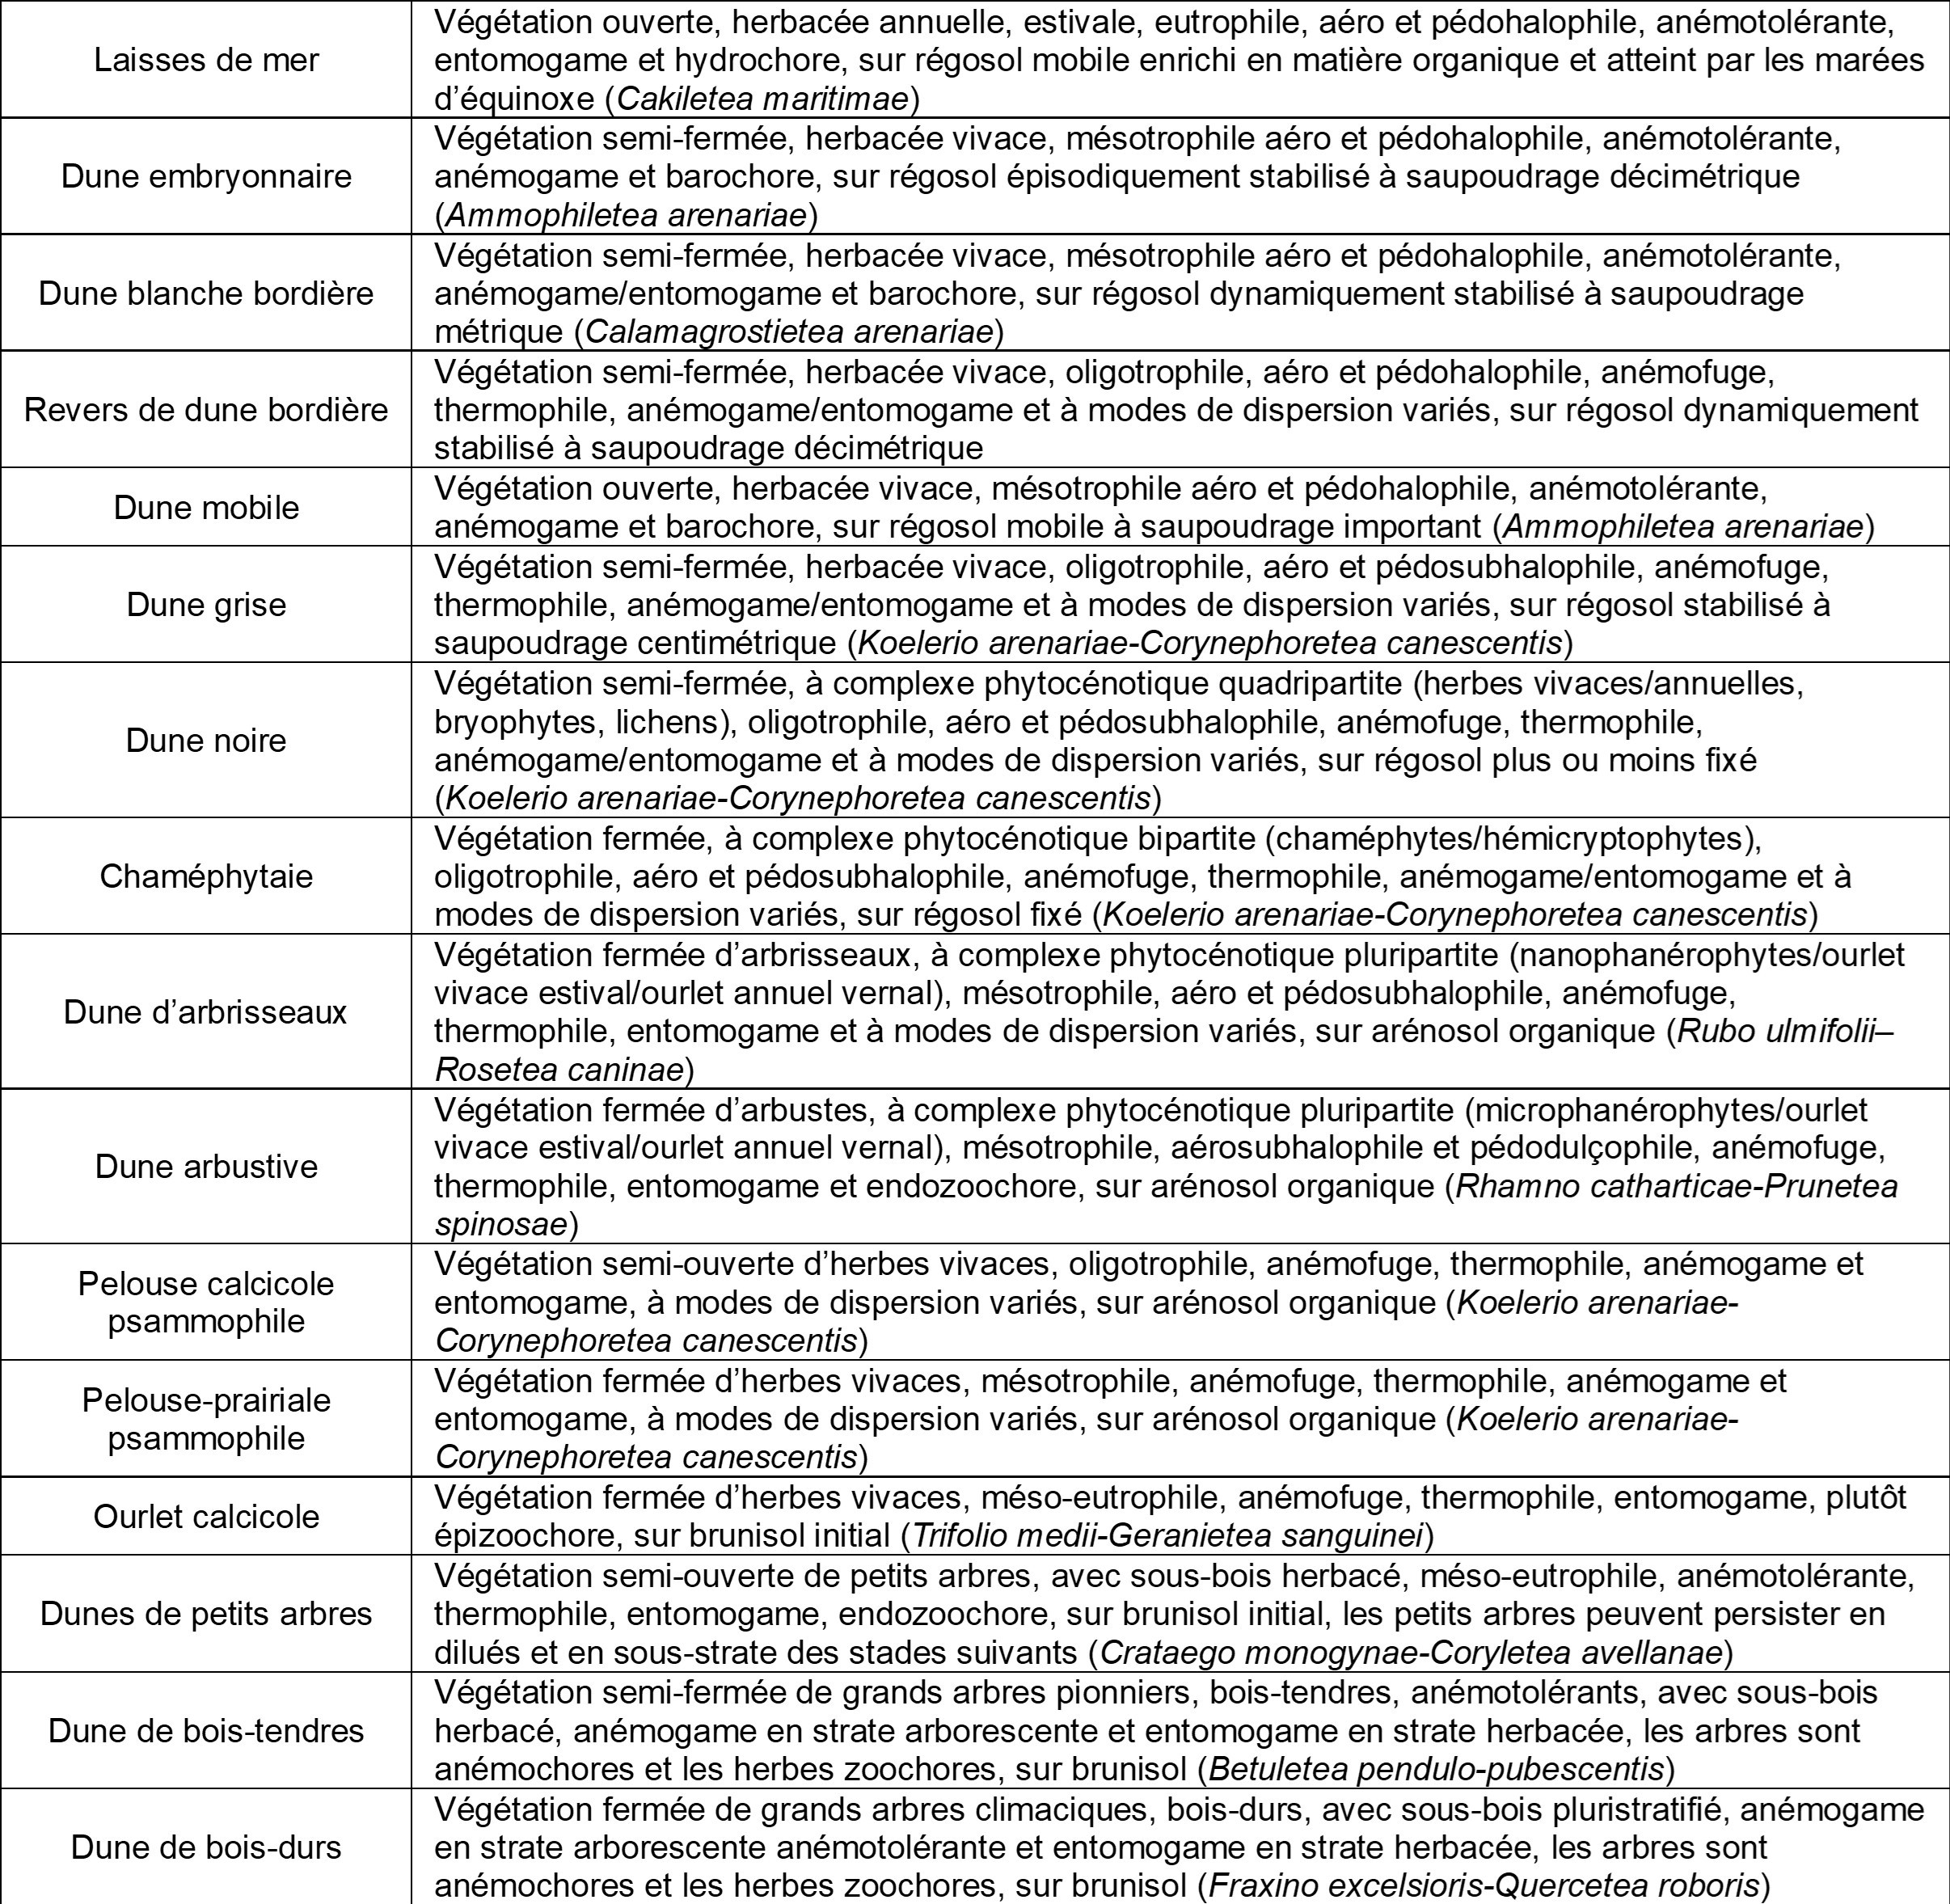
Hocquette (1954) et Bonnot (1975) fournissent également plusieurs exemples concrets des relations entre ces composantes synusiales. Le raisonnement appliqué aux dunes noires peut être généralisé à tous les complexes pelousaires de ce type, y compris continentaux, ainsi qu’aux différents compartiments des géosigmeta dunaires maritimes psammophiles et calcicoles (photo 1), dont nous pouvons rapidement présenter les caractéristiques écologiques (tableau 2).
Ce modèle sera utilisé pour les commentaires du tableau des géosigmeta dunaires européo-atlantiques (tableaux 7 et 8). Notons que l’apport des embruns et la chloruration des eaux de pluie, présente jusqu’à une centaine de kilomètre des côtes (Berner & Berner, 1987), engendrent un certaine halophilie des milieux littoraux, décroissante avec la distance à la mer. Au niveau des sols par contre, le contact en biseau des eaux salées et douces, les eaux salées plus denses passant en dessous, ainsi que la porosité des sols, permettent une alimentation en eau douce et une nappe de subsurface qui suit la topographie.
Dans la suite, la taxinomie des végétaux vasculaires suit Baseflor (et donc Flora Gallica v. 1 et Taxref v. 18) et POWO qui se base sur Govaerts (2024), celle des bryophytes suit Basebryo (et donc Bryologia Gallica & Ultramarina et Taxref v. 18), celle des lichens suit Roux et al. (2025), la syntaxinomie suit Baseveg, Basebryo et Baselich. La taxinomie des sols suit le Référentiel pédologique (AFES, 2008).
1. Les pelouses herbacées vivaces des dunes maritimes grises et noires atlantico-européennes
Le tableau 3 présente les végétations herbacées vivaces et chaméphytiques des pelouses maritimes connues de la façade atlantico-européenne.
1.1. Le Koelerion arenariae Tüxen 1937 corr. Gutermann & Mucina 1993
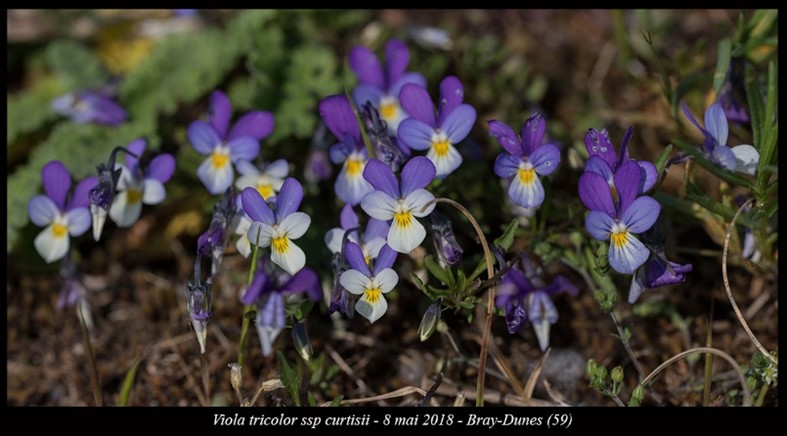
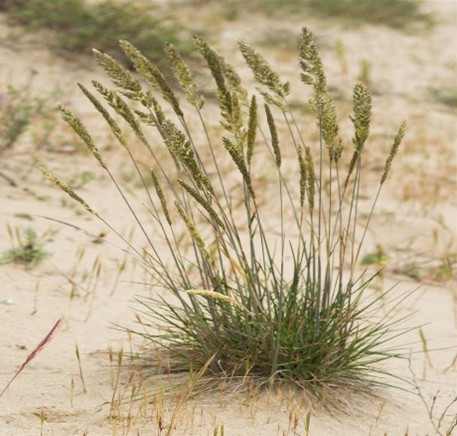
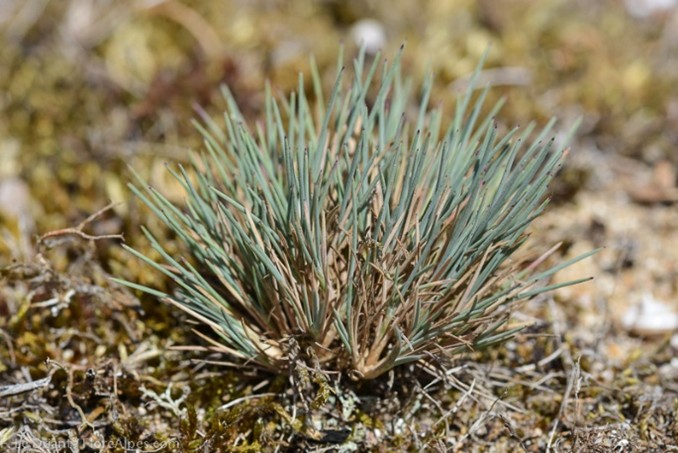
La correction du nom a été rendue nécessaire par l’identification correcte de Koeleria arenaria, au détriment de K. albescens. Il s’agit de pelouses psammophiles maritimes, basiphiles et calcicoles, en arrière-dunes des rivages de la Manche et de la mer du Nord, de la Norvège méridionale à la Bretagne septentrionale. Elles représentent les composantes herbacées vivaces des dunes grises et noires de ces régions sur arénosols fixés. Les espèces caractéristiques en sont Viola tricolor subsp. curtisii (groupe d’ass. septentrionales ; photo 2), Festuca arenaria, Koeleria arenaria (photo 3), Poa pratensis subsp. irrigata, Euphorbia portlandica subsp. portlandica (groupe d’ass. méridionales) et des pissenlits de la section Erythrosperma : Taraxacum rubicundum, T. lacistophyllum, T. obliquum selon Sissingh (1974).
- Colonnes 1-2 : Euphorbio paraliae-Festucetum arenariae Géhu 1963 apud Géhu & Franck 1982 des côtes flamandes à la Bretagne septentrionale. Il y a un problème de conception avec cette association nommée Euphorbio paraliae-Festucetum juncifoliae dans Géhu (1963 et 1964). Or dans le tableau publié par Géhu & Franck (1982), on ne trouve que Festuca arenaria, même si une note mentionne « parfois accompagnée de Festuca juncifolia ». juncifolia est une espèce des ammophilaies alors que F. arenaria est une espèce des arrière-dunes fixées. Donc on peut imaginer qu’il peut se présenter trois possibilités : un syntaxon de l’ammophilaie à valeur de sous-association de transition vers les dunes fixées, comme le proposait Tüxen (1937), un syntaxon autonome à Festuca juncifolia du revers de dune bordière et dépendant des Ammophiletea, un syntaxon autonome à Festuca arenaria se rattachant plutôt aux Koelerio-Corynephoretea appartenant déjà aux dunes grises. C’est cette dernière option qui est choisie ici, sur la base du tableau comparatif. En effet, la présence de quelques espèces introgressives des Ammophiletea est régulière dans les associations de dunes grises. Cette définition précise du revers interne de dune blanche et de la dune grise est un problème récurrent comme on le verra dans la suite. Peut-être que la séparation des deux sous-associations présentées en colonnes 1 et 2 pourra solutionner une partie du problème : colonne 1 sous-association à Sedum acre, de transition vers la dune noire fixée et colonne 2 sous-association typique encore proche des ammophilaies (revers de dune ?).
- Colonne 3 : groupement à Carex arenaria & Festuca arenaria des îles Britanniques, avec Tripleurospermum maritimum, Argentina anserina, appauvri et en limite de l’alliance.
- Colonne 4 : Gentiano campestris-Pimpinelletum saxifragae Tüxen & V. Westh. in Tüxen 1967, des côtes du sud-ouest de la Norvège, s’enrichit en espèces de la classe des Koelerio-Corynephoretea, avec l’apport habituel d’espèces des pelouses calcicoles intérieures des Festuco-Bromopsietea. On notera que l’écomorphose littorale de Galium verum n’est pas retenu dans Flora Gallica ni dans POWO. Les espèces différentielles, en provenance des ourlets, sont Pimpinella saxifraga, Thalictrum minus subsp. minus, Knautia arvensis, Geranium sanguineum, Poa pratensis angustifolia. Il s’agit donc d’une pelouse-ourlet qu’il semble encore possible de rattacher au Koelerion arenariae, dont les espèces sont les plus nombreuses.
- Colonnes 5 à 15 : Violo saxatilis curtisii-Koelerietum arenariae Julve 1996 ex hoc loco, proposé dans Baseveg en 1996 et que nous pouvons valider par un tableau ici, pelouse de la dune grise existant également en superposition phytocénotique dans la dune noire, présente du Danemark à la Picardie, en Écosse et Angleterre, sur les côtes de la mer du Nord et de la Manche orientale. Les espèces les plus caractéristiques sont les deux taxons éponymes, Corynephorus canescens est une bonne différentielle par rapport aux associations proches. On peut distinguer une race propre au Danemark et au Schleswig-Holstein avec Armeria maritima subsp. intermedia, Plantago maritima subsp. maritima, Silene uniflora subsp. uniflora, Erigeron acris subsp. acris comme différentielles (colonne 5). Les colonnes 12 à 15 représentent une sous-association tendant vers les pelouses décalcifiées, avec Jasione montana, Hieracium umbellatum, Viola canina subsp. canina, Luzula campestris.
- Colonne 16 : Veronico bastardii-Rosetum spinosissimae (Géhu & Franck 1982) Julve 2025 nov. hoc loco. Il s’agit d’une pelouse-ourlet dont les deux espèces éponymes sont caractéristiques, avec le fond classique des caractéristiques du Koelerion arenariae, accompagné de quelques taxons eutrophiles des friches.
- Colonnes 17 à 20 : Poo pratensis subsp. irrigatae-Festucetum arenariae Julve 2025 nov. hoc loco. Il s’agit d’une pelouse prairiale arrière-dunaire présente dans les îles Britanniques, dont c’est ici la forme typique initiale.
- Colonnes 21 à 27 : la sous-association trifolietosum repentis représente une forme plus prairialisée, plus eutrophisée et présente dans les zones touristiques plus fréquentées. Elle ajoute de nombreux taxons prairiaux, mais aussi des espèces de pelouses intérieures.
- Colonnes 28 et 29 : Euphorbio portlandicae-Koelerietum arenariae (Géhu & B. Foucault 1978) B. Foucault 1995, distinguée des associations précédentes par l’absence de Viola tricolor subsp. curtisii mais par la présence de Euphorbia portlandica, sur le même fond d’espèces du Koelerion arenariae.
- Colonnes 30 à 33 : race du Cotentin septentrional, différenciée par la présence de Armeria arenaria arenaria, Galium neglectum.
- Colonnes 34 et 35 : Lino biennis-Koelerietum arenariae Géhu ex Colasse & Delassus 2014. C’est une pelouse-prairie issue de l’association précédente par fertilisation et pâturage extensif. Au fond des caractéristiques de l’association précédente, moins Sedum acre et Euphorbia portlandica, s’ajoute un important contingent d’espèces prairiales : Linum bienne, Trifolium pratense, Dactylis glomerata, Achillea millefolium, Cerastium fontanum, Bellis perennis, Trisetum flavescens, Scorzoneroides autumnalis, ainsi que des espèces de pelouses calcicoles : Cirsium acaulon, Ranunculus bulbosus, Medicago lupulina, Avenula pubescens pubescens, Arabis hirsuta, Euphrasia stricta.
- Colonnes 36 à 38 : pelouse-ourlet de l’Euphorbio portlandicae-Rosetum spinosissimae Foucault 1995, propre au Cotentin septentrional (race à Veronica spicata, col. 36-37) et aux îles Anglo-Normandes (race à Festuca armoricana, col. 38).
- Colonne 39 : pelouse plus interne, avec un début d’acidification, le Carici arenariae-Festucetum filiformis Colasse & Delassus 2014, propre au Cotentin méridional. Aux espèces du Koelerion arenariae, s’ajoute une douzaine d’espèces des pelouses calcicoles, mais aussi Festuca filiformis et Luzula campestris.
- Colonne 40 : Galio veri-Avenuletum pubescentis Colasse & Delassus 2014, pelouse interne différenciée par onze espèces des pelouses basiphiles des Festuco valesiacae-Bromopsietea erectae pour huit des Koelerio glaucae-Corynephoretea canescentis, ce qui fait hésiter sur son rattachement, que l’on maintient ici par enchaînement et en tenant compte du nombre relatif et non absolu des caractéristiques de chaque classe.
- Colonne 41 : Galio veri-Festucetum longifoliae Géhu ex Colasse & Delassus 2014, pelouse interne en limite de l’alliance, où il ne reste plus que Sedum acre, Festuca longifolia et six caractéristiques de classe pour une dizaine d’espèces des pelouses calcicoles intérieures.
- Colonne 42 : le Festuco armoricanae-Galietum veri Géhu 2000, n’est connu que d’un seul relevé de Jersey. Selon son auteur, ce serait une pelouse maritime décalcifiée, vicariante du Festuco filiformis-Galietum veri (Onno 1933) Braun-Blanq. & De Leeuw 1936. Mais cela n’apparaît pas du tout dans la composition floristique du seul relevé publié.
Plusieurs syntaxons proposés en nomen nudum par Géhu (1995), sans relevés, pourraient prendre place dans cette alliance : Asperulo occidentalis-Galietum veri Géhu 1995 nom. nud., pelouse pâturée du Cotentin oriental, Armerio arenariae-Galietum veri Géhu 1995 nom. nud., pelouse pâturée du Nord-Ouest-Cotentin, Galio veri-Festucetum juncifoliae Géhu 1995 nom. nud. pelouse de revers de dune en Manche occidentale.
1.2 L’Euphorbio portlandicae-Helichrysion stoechadis Géhu & Tüxen ex G. Sissingh 1974
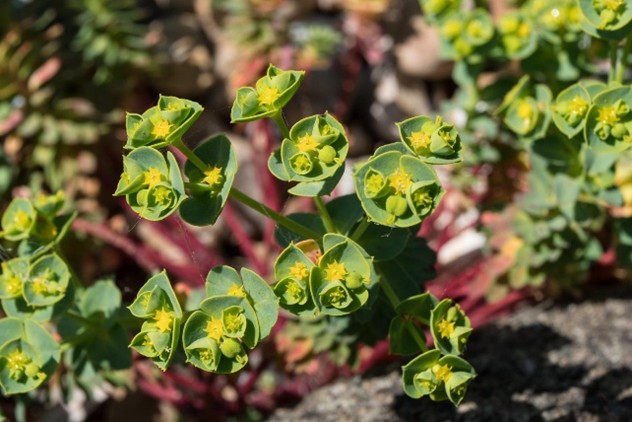
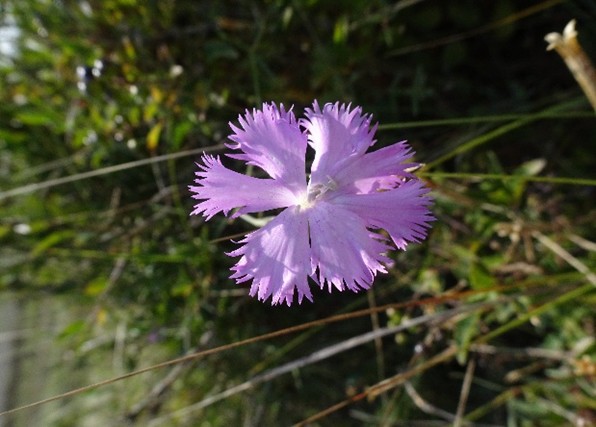
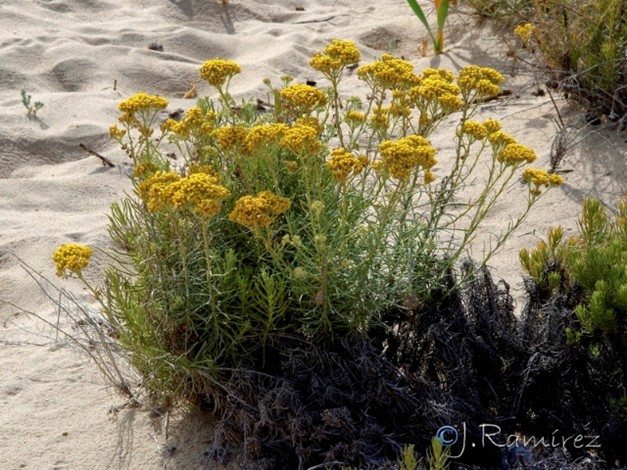
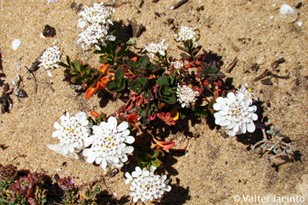
À partir de la Bretagne méridionale et jusqu’en Aquitaine, les pelouses maritimes psammophiles calcicoles des dunes grises et noires appartiennent à cette alliance où les chaméphytes xéromorphiques deviennent de plus en plus fréquents. Outre la persistance des transgressives Festuca arenaria, Koeleria arenaria, Sedum acre, Euphorbia portlandica (photo 4), s’y ajoutent des caractéristiques nombreuses : Helichrysum stoechas subsp. stoechas, Galium arenarium, Herniaria ciliolata subsp. robusta, Dianthus gallicus (photo 5), Asperula occidentalis, etc.
- Colonnes 43-44 : Linario thymifoliae-Festucetum juncifoliae Lafon & Le Fouler in Lafon, Le Fouler, Dufay & Hardy 2022. Pelouse de dune grise initiale gasconne, au nord d’Arcachon. Rattaché par ses auteurs à l’Ammophilion dans un groupe d’associations à Festuca juncifolia, typique des revers de dunes bordières. Cette position peut se comprendre, mais aussi se discuter. En effet la présence de compagnes de l’Ammophilion est quasi constante dans les formes initiales des dunes grises, comme le montre bien le tableau 3. Constantes également les espèces de pelouses intérieures telles Lotus corniculatus et Ononis spinosa subsp. procurrens. Enfin les espèces Galium arenarium, Linaria thymifolia, Hieracium eriophorum, Silene uniflora subsp. thorei, Astragalus baionensis me semblent avoir leur optimum dans les dunes grises. L’apparition d’Helichrysum stoechas dans des sous-associations dites de transition (col. 44), et qui sont plutôt les formes typiques, confirme le point de vue adopté ici, qui pourra se fortifier ou se récuser par des travaux ultérieurs, la même question se posant pour le Koelerion arenariae, comme évoqué précédemment.
- Colonnes 45 à 50 : Galio arenarii-Hieracietum eriophori Géhu ex Lafon, Le Fouler, Dufay & Hardy 2022. Pelouse semi-ouverte de dune grise initiale gasconne, au sud d’Arcachon. Même problématique que précédemment. Les auteurs distinguent une sous-association typique (col. 45-46), une sous-association initiale à Elytrigia juncea subsp. juncea (col. 47-48) et une sous-association terminale à Helichrysum stoechas (col. 49-50).
- Colonnes 51 à 54 : Festuco arenariae-Galietum arenarii Géhu 1964, pelouse de la dune grise initiale, de la Bretagne méridionale aux Charentes. Elle combine Festuca arenaria, Koeleria arenaria, Euphorbia portlandica, Dianthus gallicus, Galium arenarium, Carex arenaria, Leontodon saxatilis saxatilis, Plantago lanceolata var. sphaerostachya, Pancratium maritimum, Ononis spinosa subsp. procurrens, Eryngium campestre avec des espèces minoritaires de la dune bordière : Convolvulus soldanella, Eryngium maritimum, Euphorbia paralias, Medicago marina, Elytrigia juncea subsp. boreoatlantica.
- Colonnes 55 à 58 : Thymo drucei-Helichrysetum stoechadis Géhu & G. Sissingh in Sissingh 1974 prov., des dunes fixées du Finistère méridional hyperatlantique, caractérisé par Armeria arenaria subsp. arenaria, Galium arenarium, Helichrysum stoechas, Thymus drucei. On pourrait y distinguer une sous-association type, basiphile, à Festuca arenaria Euphorbia portlandica, Astragalus baionensis, Hypochaeris radicata, Plantago lanceolata var. sphaerostachya, Anthyllis vulneraria subsp. vulneraria, Allium spharocephalon, Eryngium campestre (col. 55-56), et une sous-association acidifiée à Jasione montana (col. 57-58).
- Colonnes 59 à 65 : Roso spinosissimae-Ephedretum distachyae Kuhnholtz-Lordat (1927) 1931, pelouse chaméphytique de Bretagne méridionale. Elle est caractérisée par les deux espèces éponymes, auxquelles on peut joindre Asparagus officinalis prostratus, Dianthus gallicus, Asperula occidentalis, Helichrysum stoechas subsp. stoechas, Herniaria ciliolata subsp. robusta.
- Colonnes 66 à 70 : Artemisio crithmifoliae-Ephedretum distachyae Géhu & G. Sissingh in Sissingh 1974, pelouse chaméphytique de Vendée-Charentes. Très proche de la précédente, elle s’en distingue par la régression de Sedum acre, Rosa spinosissima, Asperula occidentalis et par l’apparition de Artemisia crithmifolia (= A. campestris subsp. maritima, A. lloydii) Centaurea aspera subsp. aspera.
- Colonnes 71 à 73 : Artemisio crithmifoliae-Helichrysetum stoechadis Lafon & Le Fouler in Lafon, Le Fouler, Dufay & Hardy 2022, pelouse fermée du Médoc septentrional, perdant Ephedra distachya, Festuca arenaria, Euphorbia portlandica, Ononis spinosa procurrens, mais gagnant Solidago virgaurea subsp. virgaurea (Solidago macrorrhiza n’est pas accepté par les flores de référence), Lotus corniculatus subsp. corniculatus, Convolvulus soldanella. Selon Lafon et al. (2022), elle pourrait constituer une forme initiale des deux syntaxons précédents. On peut distinguer une sous-association à Sedum acre, S. rupestre, Rumex acetosella, Carex arenaria, des sables plus tassés (col. 71) et une sous-association à Ammophila arenaria subsp. arenaria, Corynephorus canescens, des sables remobilisés (col. 73).
- Colonne 74 : Hieracio eriophori-Dianthetum gallici Dufay & Hardy in Lafon, Le Fouler, Dufay & Hardy 2022. Cette pelouse semi-fermée de dune grise en Gascogne méridionale, au sud des Landes, est proche du Galio arenarii-Hieracietum eriophori Géhu ex Lafon, Le Fouler, Dufay & Hardy 2022 dont elle possède les espèces caractéristiques. Elle s’en distingue par la présence de Koeleria arenaria, Dianthus gallicus, Asperula occidentalis, Solidago virgaurea subsp. virgaurea, Artemisia crithmifolia, Festuca vasconcensis, Thymus drucei.
- Colonnes 75 à 78 : Alysso loiseleurii-Helichrysetum stoechadis Géhu ex Lafon, Le Fouler, Dufay & Hardy 2022, pelouse semi-fermée de dune noire stabilisée à complexe phytocénotique bryo-lichénique souvent présent. Présente au sud des Landes « seulement sur une vingtaine de kilomètres de côtes entre Tarnos et Soorts-Hossegor» selon Lafon et al. (2022). Caractérisée par Alyssum loiseleurii, Sedum acre, Koeleria arenaria, Dianthus gallicus, Asperula occidentalis, Solidago virgaurea subsp. virgaurea, Artemisia crithmifolia, Helichrysum stoechas, Thymus drucei accompagnée de plusieurs espèces des dunes blanches comme Convolvulus soldanella, Festuca juncifolia, Ammophila arenaria subsp. arenaria, Eryngium maritimum. Il est possible de reconnaître une sous-association à Hieracium eriophorum (col. 75-76), proche du Hieracio eriophori-Dianthetum gallici, et une sous-association à Rumex acetosella (col. 78) des dunes en voie de décalcification, proche des syntaxons suivants.
Les deux associations suivantes représentent un groupe de syntaxons sur arénosol en voie de décalcification, ce qui se produit en arrière-dunaire ancien, plus éloigné du littoral. Elles combinent sur le fond un peu appauvri d’espèces calcicoles typique de l’alliance l’apparition d’espèces acidophiles, telles Rumex acetosella, Jasione maritima, Festuca vasconcensis.
- Colonnes 79 à 81 : Thymo drucei-Corynephoretum canescentis Dufay & Hardy in Lafon, Le Fouler, Dufay & Hardy 2022, pelouse psammophile fixée de dune noire, en premier stade de décalcification, avec des synusies bryophytiques et lichéniques occupant 60% de la phytocénose (Lafon et al., 2022). Propre à la partie méridionale des Landes (de Contis-les-Bains à Bayonne), elle se caractérise par la présence de Koeleria arenaria, Helichrysum stoechas subsp. stoechas, Herniaria ciliolata subsp. robusta, Thymus drucei, Hypochaeris radicata, mais aussi des acidiphiles : Festuca vasconcensis, Jasione maritima, Rumex acetosella. Trois sous-associations assez peu caractérisées ont été distinguées par les auteurs (voir les trois colonnes 79-81).
- Colonnes 82 à 87 : Jasiono maritimae-Helichrysetum stoechadis (Lafon, Le Fouler, Dufay & Hardy 2022) nomen novum et comb. nova hoc loco, pelouse chaméphytique sur sables fixés de la Gascogne septentrionale (de la Gironde au bassin d’Arcachon) qui correspond aux Sileno portensis-Helichrysetum stoechadis Géhu ex Lafon, Le Fouler, Dufay & Hardy 2022 et Micropyro tenelli-Helichrysetum stoechadis Lafon & Le Fouler in Lafon, Le Fouler, Dufay & Hardy 2022, en excluant les annuelles qui constituent biologiquement des synusies à part, tout comme les mousses et les lichens. Elle est identifiée grâce à la présence de Helichrysum stoechas stoechas, Herniaria ciliolata subsp. robusta, Galium arenarium, Corynephorus canescens, Carex arenaria et de Jasione maritima, Rumex acetosella. On pourra probablement distinguer une sous-association à Ammophila arenaria avec une variante à Lotus corniculatus (col. 82-83) et une autre variante à Artemisia crithmifolia (col. 84-85), et une sous-association à Rumex acetosella (col. 86-87).
1.3. Les pelouses psammophiles maritimes acidifiées
Il s’agit de pelouses sur sables plus anciennement déposés, plus ou moins fixés mais avec des possibilités de remobilisation du fait de la faible cohérence des matériaux. Elles sont donc situées plus en arrière du trait de côte et leur ancienneté plus grande a permis, par l’action plus longue de la pluviométrie, une dissolution partielle des carbonates qui révèle par contraste le caractère plus acide du matériel siliceux originel : grains de sables issus de l’érosion de montagnes siliceuses (Julve, 2024). On obtient donc un certain mélange de flore basiphile et acidiphile qui peut rendre la classification malaisée. Naturellement, si le phénomène de dissolution se prolonge ou bien sous les climats plus pluvieux, plus froids et généralement en zones plus éloignées du trait de côte, on peut aboutir à des systèmes entièrement acidiphiles avec des pelouses des Nardetea strictae et des landes, qui seront évoquées dans la partie sur les géosigmeta dunaires maritimes.
- La colonne 88 représente le Corynephoro canescentis-Sedetum anglici Foucault 1999. C’est une pelouse psammophile de Bretagne méridionale initialement décrite des îles Houat et Hoedic dans la baie de Quiberon (Géhu, 1964b). La combinaison floristique, pauvre, montre Rumex acetosella, Jasione montana comme espèces acidiphiles caractéristiques et des plantes des unités supérieures : Corynephorus canescens, Carex arenaria, associées à des différentielles de dalles Sedum anglicum, Prospero autumnale, Romulea columnae. Euphorbia portlandica souligne la spécificité biogéographique de l’association.
- Les colonnes 89 à 96 illustrent le Violo caninae subsp. caninae-Corynephoretum canescentisWesth. apud V. Westh., Dijk, Passchier & G. Sissingh ex Géhu & de Foucault 1978. La var. dunensis de Viola canina n’est pas acceptée par les référentiels utilisés. Il s’agit d’une pelouse arrière-dunaire de sables en partie décalcifiés et remobilisés par une perturbation d’origine naturelle ou anthropozoogène. L’association est présente du Danemark à la Picardie et en Angleterre. La combinaison des acidiphiles Rumex acetosella, Agrostis capillaris, Jasione montana et des espèces constantes de la classe comme Corynephorus canescens, Carex arenaria, quelques relictuelles basiphiles (Festuca arenaria, Koeleria arenaria, Galium verum subsp. verum) et épisodiquement des pionnières des pelouses acidiphiles (Viola canina subsp. canina, Luzula campestris, Hieracium umbellatum) est typique.
- Les colonnes 97-98 montrent une association assez proche floristiquement, l’Helichryso arenarii-Jasionetum montanae Libbert 1940, des rives de la Baltique (Poméranie, Pologne). Avec la même combinaison que dans le Violo-Corynephoretum, s’y ajoutent Helichrysum arenarium et parfois Leymus arenarius.
- Les colonnes 99 à 104 présentent une association méconnue ou négligée, l’Agrostio capillaris-Poetum pratensis subsp. irrigatae Tüxen & Preising 1951 Tout comme il existe des pelouses-ourlets, intermédiaires dynamiques entre des pelouses et des ourlets, il s’agit ici d’une pelouse-prairie, c’est-à-dire d’une pelouse en voie de prairialisation par densification, approfondissement du sol (on passe progressivement d’un régosol à un arénosol) et utilisation pastorale. L’association est présente en Grande-Bretagne et de la Basse-Saxe à l’Artois. Elle combine Festuca arenaria, Poa pratensis irrigata, Koeleria arenaria, avec des acidiphiles : Rumex acetosella, Agrostis capillaris, Jasione montana, Festuca filiformis, des espèces de la classe : Carex arenaria, Pilosella officinarum, Hypochaeris radicata (mais pas de Corynephorus canescens car ici le sable est stabilisé ; photo 6). Des plantes de pelouses basiphiles comme Galium verum subsp. verum (la var. maritimum n’est pas acceptée par les référentiels utilisés), Lotus corniculatus subsp. corniculatus sont constantes, mais aussi des plantes de pelouses acidiphiles comme Luzula campestris, Anthoxanthum odoratum. La composante prairiale est marquée par la présence de Cerastium fontanum subsp. vulgare, Holcus lanatus subsp. lanatus, Trifolium repens, Achillea millefolium subsp. millefolium… Jacobaea vulgaris, espèce des friches, est aussi constante. Il semble possible de définir une race à Carex trinervis de Flandre-Artois et une race à Campanula rotundifolia du reste de l’aire, dans laquelle on distingue une sous-association à Astragalus danicus, Thymus drucei, décrite d’Écosse (Birse, 1980).
- Les colonnes 105 à 110 montrent ce qui semble être une unique association de pelouses d’arrière-dunes sur sables fixés et en voie d’acidification : le Festuco filiformis-Galietum veri (Onno 1933) Braun-Blanq. & De Leeuw 1936. Ce syntaxon est répandu de la Scandinavie aux îles Britanniques et jusqu‘en Artois sur le continent. La combinaison est similaire à l’Agrostio-Poetum, mais moins riche floristiquement et sans les prairiales. Il est clair que l’Agrostio-Poetum dérive du Festuco-Galietum par eutrophisation et densification. On peut distinguer trois races : britannique (col. 105-106), sud-ouest-scandinave à Sedum anglicum (col. 107), allemande avec Armeria maritima subsp. intermedia, Plantago maritima subsp. maritima, Silene uniflora subsp. uniflora (col. 108 à 110).
Le classement des cinq associations précédentes peut se discuter. Si l’appartenance aux Koelerio glaucae-Corynephoretea canescentis Klika in Klika & Novák 1941 des pelouses sableuses est claire, le regroupement d’espèces basiphiles et acidiphiles, lié à la décalcification incomplète, nécessite une discussion. On pourrait envisager un groupe d’associations acidiclinophiles rattaché au Koelerion arenariae, mais il existe aussi dans la sous-classe acidiphile des Rumicenea acetosellae B. Foucault 1999 une alliance de caractère intermédiaire, des sables calcareux maritimes partiellement décalcifiés, décrite par de Foucault (2021), le Carici arenariae-Corynephorion canescentis B. Foucault 2021, rangé dans les Agrostio capillaris-Jasionetalia montanae B. Foucault 1999. Cette option nous paraît préférable dans ce cas-ci et, afin de pouvoir l’étayer, nous avons ajouté dans le tableau comparatif deux associations du Corynephorion canescentis Klika 1931, alliance acidiphile des sables entièrement décalcifiés qui peut apparaître à proximité du littoral maritime des zones froides de l’Europe du Nord, Allemagne de la mer du Nord et de la mer Baltique, Danemark.
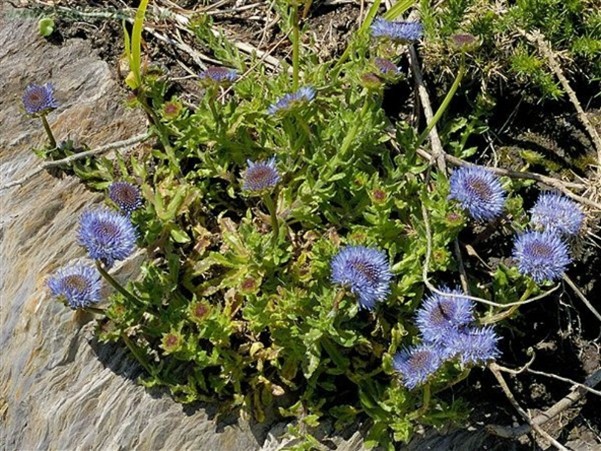
- Les colonnes 111-112 illustrent ainsi le Thymo serpylli-Festucetum filiformis Tüxen (1928) 1937, de Basse-Saxe. Il y reste quelques espèces épisodiques du Koelerion arenariae, mais la combinaison floristique comprend surtout les acidiphiles habituelles, Rumex acetosella, Agrostis capillaris, Jasione montana (photo 7), Festuca filiformis, Scleranthus perennis subsp. perennis et surtout Thymus serpyllum subsp. serpyllum, Agrostis vinealis. Les compagnes se recrutent surtout dans les pelouses acidiphiles évoluées des Nardetea strictae avec Luzula campestris et Anthoxanthum odoratum.
- Les colonnes 113 à 116 montrent le Corynephoro canescentis-Agrostietum vinealis (Juraszek 1928) Sommer 1971, de Basse-Saxe, Pologne, Suède méridionale, Pays-Bas, présent aussi en Belgique et dans le nord de la France. C’est une association répandue qui pénètre largement à l’intérieur des terres sur les sables mobiles acides. Corynephorus canescens, Agrostis vinealis, Carex arenaria y sont plus constants que dans le Thymo serpylli-Festucetum filiformis et il n’y a pas de compagnes des pelouses fermées.
Dans la même idée de comparaison avec les pelouses de systèmes sableux intermédiaires de climat océanique, nous avons ajouté dans le tableau comparatif trois associations de l’Armerion vulgaris Krausch (1962) 1968, provenant des rivages danois et allemand de la mer Baltique et représentant des pelouses semi-décalcifiées.
- Les colonnes 117-118 représentent l’Armerio vulgaris-Galietum veri (Bochnig 1959) H. Passarge 2002, pelouse ouverte littorale du Mecklenbourg. En commun avec le Koelerion arenariae on y trouve Sedum acre, Festuca arenaria, Viola tricolor subsp. curtisii, Poa pratensis subsp. irrigata. Les habituelles espèces acidiphiles y montrent un début de décalcification, avec Rumex acetosella, Agrostis capillaris, Jasione montana. Les caractéristiques de l’alliance, Armeria vulgaris, et des unités supérieures, Helichrysum arenarium, Carex arenaria, Hypochaeris radicata, Pilosella officinarum, Plantago lanceolata sphaerostachya sont accompagnées de Galium verum subsp. verum et Anthoxanthum odoratum qui montrent bien le caractère intermédiaire de la pelouse. Quelques prairiales évoquent aussi une pelouse-prairie. Enfin Ammophila arenaria montre le contact littoral.
- La colonne 119 montre une association proche, le Diantho deltoidis-Armerietum vulgaris Krausch 1968, mais plus continentale (décrite du Brandebourg). Il y reste Sedum acre, Festuca arenaria, les acidiphiles habituelles des pelouses semi-décalcifiées et plusieurs caractéristiques, Armeria vulgaris, Festuca trachyphylla, des espèces de pelouses basiphiles Galium verum, Lotus corniculatus et acidiphiles Dianthus deltoides, Luzula campestris, Anthoxanthum odoratum.
- La colonne 120 précise l’Helichryso arenarii-Phleetum phleoidis (Böcher 1945) Dierßen 1996, avec une combinaison floristique similaire, mais des caractéristiques en plus : Phleum phleoides, Helictochloa pratensis subsp. pratensis, Artemisia campestris subsp. campestris, Helichrysum arenarium. On note davantage d’espèces des pelouses basiphiles, Ononis spinosa subsp. procurrens, Pimpinella saxifraga, Anthyllis vulneraria subsp. vulneraria, et une compagne halophile significative, Armeria maritima subsp. intermedia.
Des pelouses psammophiles des rivages de la mer Baltique, mais non ou peu décalcifiées, existent également. Nous en avons ajouté trois dans le tableau. La première est classée dans le Koelerion glaucae Volk 1931 des pelouses centro-européennes, les deux autres sont classées dans le Hieracio umbellati-Festucion arenariae H. Passarge 2002 des rivages maritimes allemand et polonais, vicariant baltique du Koelerion arenariae.
- La colonne 121 montre le Festuco beckeri-Koelerietum glaucae Bandžiuliene 1985, proche des précédents par Sedum acre, Artemisia campestris subsp. campestris, Helichrysum arenarium, Pulsatilla pratensis, mais avec six caractéristiques en propre : Thymus serpyllum subsp. serpyllum (le vrai !), Koeleria glauca, Festuca beckeri, Dianthus arenarius, Astragalus arenarius, Anthericum liliago. C’est une pelouse des rivages de la Lithuanie.
- La colonne 122, Artemisio campestris subsp. sericeae-Festucetum arenariae (Raabe 1944) H. Passarge 2002 est décrite des rivages de Poméranie (actuellement en Pologne). C’est une pelouse psammophile un peu décalcifiée (Jasione montana, Hieracium umbellatum) qui possède Festuca arenaria, F. trachyphylla, Sedum acre, Helichrysum arenarium, Artemisia campestris subsp. sericea, Corynephorus canescens et Ammophila arenaria subsp. arenaria.
- Les colonnes 123-124, illustrent une pelouse maritime du Mecklembourg, le Hieracio umbellati-Festucetum arenariae & H. Passarge 1973. On y retrouve de manière intéressante Viola tricolor subsp. curtisii, Festuca arenaria, Carex arenaria, mais aussi Hieracium umbellatum et surtout des compagnes informatives : Ammophila arenaria subsp. arenaria, Leymus arenarius, Honckenya peploides subsp. peploides, Calamagrostis ×baltica.
1.4 Les pelouses maritimes ibéro-atlantiques
Elles peuvent se ranger toutes dans l’Helichrysion serotini subsp. picardii (Rivas Mart., M.C. Costa & Izco in Rivas Mart., Lousã, T.E. Díaz, Fern.-Gonz. & J.C. Costa 1990) Rivas Mart., Fern.-Gonz. & Loidi 1999. Il s’agit de pelouses psammophiles maritimes des dunes situées le long de la côte atlantique entre les Asturies et l’Algarve. Nous choisissons ici de placer cette alliance dans les Artemisio crithmifoliae-Koelerietalia arenariae G. Sissingh 1974, Sedenea acris B. Foucault 1999, Koelerio glaucae–Corynephoretea canescentis Klika in Klika & Novák 1941, mais les auteurs espagnols penchent plutôt pour un rattachement aux Crucianelletalia maritimae G. Sissingh 1974, Helichryso stoechadis–Crucianelletea maritimae (Géhu, Rivas Mart. & Tüxen in Bon & Géhu 1973) G. Sissingh 1974 em. Biondi & Géhu in Géhu & Biondi 1994, d’origine méditerranéenne. Il faudrait une synthèse des deux classes pour pouvoir trancher, ce qui sort du cadre de cet article.
- La colonne 125 représente le Carici arenariae-Festucetum juncifoliae Rivas Mart. & Izco 2011. C’est une pelouse de dune grise semi-fixée, pauvre en espèces (relevés trop petits ?) et juste en arrière de la dune bordière. Outre Carex arenaria, Corynephorus canescens, Pancratium maritimum, on y recense les caractéristiques chaméphytiques Helichrysum serotinum picardii, Iberis procumbens. Deux espèces des dunes blanches, Festuca juncifolia, Convolvulus soldanella, complètent le cortège.
- La colonne 126, Sedo sediformis-Corynephoretum canescentis Honrado, Alves, Lomba, Vicente, G. Silva & Nepomuceno 2007 est une pelouse psammophile du Portugal septentrional. Elle possède Herniaria ciliolata robusta, Corynephorus canescens, Antirrhinum cirrhigerum, Sedum sediforme, Cyperus capitatus.
- La colonne 127, Jasiono maritimae sabulariae-Corynephoretum canescentis Lomba, Alves & Honrado 2008 est également une pelouse psammophile du Portugal septentrional, proche de la précédente mais plus décalcifiée, avec Jasione maritima, Rumex acetosella, Linaria repens.
- La colonne 128, Linario polygalifoliae-Corynephoretum canescentis Rodríguez Oubiña, Ortiz & Pulgar 1998 est une pelouse psammophile semi-décalcifiée de Galice. Elle comprend remarquablement Sedum acre, S. album, Euphorbia portlandica, comme acidiphiles Jasione montana, J. maritima, Arenaria grandiflora subsp. grandiflora. Les espèces des Crucianelletalia y apparaissent quelquefois, Crucianella maritima, Sonchus bulbosus bulbosus mais les espèces de l’alliance y sont abondantes : Helichrysum serotinum subsp. picardii, Iberis procumbens, Linaria polygalifolia, Romulea clusiana, Anthyllis vulneraria subsp. iberica, Centaurea limbata.
- La colonne 129 représente l’Herniario scabridae Unamunoanae-Corynephoretum canescentis Pinto-Gomes, Paiva-Ferreira, Cano & Mendes 2006. C’est une pelouse psammophile de l’Algarve (Portugal méridional). Jasione montana y marque un début de décalcification. Plusieurs caractéristiques sont présentes : Sesamoides purpurascens, Euphorbia baetica, Herniaria scabrida, Armeria rouyana, Thymus capitellatus…
- La colonne 130 montre l’Herniario maritimae-Corynephoretum canescentis Pinto-Gomes, Paiva-Ferreira, Cano & Mendes 2006, pelouse psammophile de l’Alentejo (entre Lisbonne et l’Algarve). Elle est caractérisée par Herniaria maritima, Sesamoides spathulifolia, Thymus carnosus, Dianthus broteri, Marcus-kochia littorea, Iberis ciliata subsp. welwitschii, Armeria pungens.
- La colonne 131 illustre l’Armerio welwitschii-Crucianelletum maritimae Braun-Blanq., Rozeira & P. Silva in Braun-Blanq., G. Braun-Blanq., Rozeira & P. Silva 1972, de l’Alentejo également. On y remarque Herniaria ciliolata subsp. robusta, Artemisia crithmifolia, Corynephorus canescens, ce qui rapproche cette pelouse psammophile calcicole de l’Euphorbio portlandicae-Helichrysion stoechadis. Mais les espèces de l’Helichrysion serotini subsp. picardii sont majoritaires : Armeria welwitschii, Helichrysum serotinum subsp. picardii, Iberis procumbens, Lysimachia monelli subsp. maritima. Les compagnes Sedum sediforme, Seseli tortuosum subsp. tortuosum, Lotus creticus, Ammophila arenaria subsp. arundinacea (!) complètent le cortège et préfigurent le passage aux systèmes ibéro-méditerranéens.
- La colonne 132 précise le Linario polygalifoliae-Crucianelletum maritimae nov. hoc loco du Portugal septentrional. Il correspond à la partie herbacée vivace du « Scrophulario frutescentis-Vulpietum alopecuroris» Braun-Blanq., Rozeira & P. Silva in Braun-Blanq., G. Braun-Blanq., Rozeira & P. Silva 1972. Il est caractérisé par la combinaison des atlantiques Artemisia crithmifolia, Helichrysum stoechas subsp. stoechas, Herniaria ciliolata subsp. robusta, la présence de l’acidiphile Jasione montana qui signe une pelouse semi-décalcifiée, les caractéristiques d’alliance, Lysimachia monelli subsp. maritima, Linaria polygalifolia, les compagnes vicariantes des Crucianelletalia, Crucianella maritima, Pancratium maritimum, Marcus-kochia littorea et d’autres compagnes significatives comme Seseli tortuosum subsp. tortuosum, Ammophila arenaria subsp. arenaria, Medicago marina.
- La colonne 133 est l’Iberidetum procumbentis Bellot Rodriguez 1968, pelouse chaméphytique psammophile calcicole de Galice. On y trouve Alyssum loiseleurii, Artemisia crithmifolia, Helichrysum stoechas subsp. stoechas, Iberis procumbens, Scrophularia frutescens, Linaria repens, mais aussi des espèces des Crucianelletalia comme Crucianella maritima, Pancratium maritimum, Marcus-kochia littorea, Lysimachia monelli subsp. maritima, Sonchus bulbosus bulbosus, Herniaria maritima. Les compagnes des dunes blanches sont abondantes : Ammophila arenaria subsp. arundinacea (!), Convolvulus soldanella, Eryngium maritimum, Euphorbia paralias, Elytrigia juncea subsp. boreoatlantica, Polygonum maritimum, Achillea maritima, Matthiola sinuata, ce qui pose question quant à l’homogénéité des relevés. Il faudra que nos amis espagnols clarifient leur position sur la limite géographique entre les deux sous-espèces d’oyat, car les taxons indiqués dans les différentes associations de l’Helichrysion picardii semblent incohérents.
- La colonne 134, Festuco arenariae-Crucianelletum maritimae Alvarez Diaz 1972, est également une pelouse de Galice. Elle est remarquable par la présence constante de Festuca arenaria, Euphorbia portlandica, Sedum album, Helichrysum stoechas subsp. stoechas, Artemisia crithmifolia, associés aux méridionales Crucianella maritima, Sonchus bulbosus subsp. bulbosus, Scrophularia frutescens, Linaria polygalifolia, Anthyllis vulneraria iberica, Romulea clusiana. Les compagnes des dunes blanches sont également abondantes : Ammophila arenaria subsp. arenaria (!), Convolvulus soldanella, Euphorbia paralias, Medicago marina, Polygonum maritimum, Achillea maritima.
- La colonne 135, Artemisio crithmifoliae-Armerietum pungentis Rivas Goday & Rivas Mart. 1958, est une pelouse maritime de la province de Huelva. Artemisia crithmifolia, Helichrysum stoechas subsp. stoechas, y sont encore significativement présentes, mais les caractéristiques sont Crucianella maritima, Sonchus bulbosus subsp. bulbosus, Cyperus capitatus, Lotus creticus, Armeria pungens, accompagnées de Ammophila arenaria subsp. arundinacea, Medicago marina, Euphorbia paralias. Du fait de l’absence des caractéristiques de la classe Koelerio-Corynephoretea, on pourrait considérer que cette association a déjà basculé dans les Helichryso stoechadis-Crucianelletea maritimae et le Crucianellion maritimae. Une synthèse des deux classes sera nécessaire pour trancher.
- Colonnes 136-137 : Helichryso stoechadis-Ononidetum ramosissimae Guinea ex Loriente 1975. Cette pelouse maritime de Cantabrie est remarquable par la présence de Festuca arenaria, Koeleria arenaria, Ononis ramosissima, Sedum album, Helichrysum stoechas subsp. stoechas, Convolvulus soldanella, les autres espèces étant plus diluées. On peut distinguer une sous-association à Ammophila arenaria subsp. arenaria (col. 137).
- Colonne 138 : l’Helichryso stoechadis-Koelerietum arenariae Loriente 1974 corr. Rivas Mart., Fern.-Gonz. & Loidi 1999 est également une pelouse cantabrique, avec Koeleria arenaria, Festuca arenaria, Dianthus gallicus, Asperula occidentalis, Helichrysum stoechas subsp. stoechas, Herniaria ciliolata subsp. robusta. Remarquables y sont Ononis spinosa subsp. procurrens, Polygala vulgaris subsp. vulgaris. Cette flore rapproche l’association de l’Euphorbio portlandicae-Helichrysion stoechadis. Les compagnes Ammophila arenaria subsp. arenaria, Convolvulus soldanella, Eryngium maritimum, Euphorbia paralias complètent la combinaison floristique.
2. Les tonsures à annuelles des dunes maritimes fixées atlantico-européennes
Ces végétations annuelles se développent précocement, au printemps, un peu plus tôt en année humide, un peu plus tard en année sèche. Leur enracinement très faible les rend sensibles au climat de l’année, en particulier pour le bilan hydrique. Elles forment une sorte de voile discontinu développé surtout dans les tonsures des zones sableuses plus ou moins érodées, mais stables. Le tableau 4 en montre les exemples principaux.
Phleum arenarium (photo 10) est l’espèce la plus typique, dont les tiges sèches restent observables souvent tard en saison et jusqu’en été. Elle peut former des communautés basales (colonne 1), en particulier dans les régions septentrionales, puisqu’il existe un appauvrissement floristique régulier des Stipellulo capensis-Brachypodietea distachyi basiphiles et des Tuberarietea guttatae acidiphiles, depuis le Sud européen jusque vers le Nord européen. La colonne 2, provenant d’Irlande, pourrait correspondre au Veronico arvensis-Cerastietum diffusi B. Foucault 1999 prov. Pauvre en espèce de la classe, on y remarque la présence de deux différentielles des Cardaminetea hirsutae : Veronica arvensis, Geranium molle et surtout l’hygrophile Centaurium erythraea.
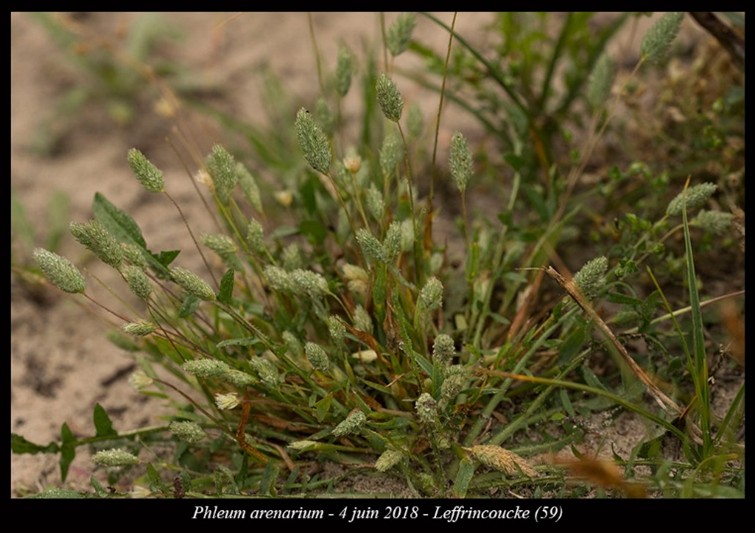
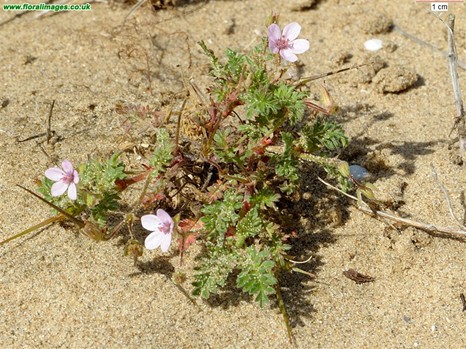
Les colonnes 3 à 6 illustrent l’Erodio lebelii-Phleetum arenarii Boerboom 1960, caractérisé par Erodium lebelii (photo 11) et Myosotis ramosissima subsp. lebelii. Il est présent sur le littoral de la mer du Nord, jusqu’au Danemark, et de Manche orientale. On le rencontre également sur les côtes britanniques et irlandaises.
L’ Hornungio petraeae-Phleetum arenarii (Géhu & B. Foucault 1978) B. Foucault 1995 (colonnes 7 à 12) en est un vicariant plus méridional de climat plus chaud, présent en Normandie occidentale et Bretagne septentrionale. Hornungia petraea, Senecio vulgaris subsp. denticulatus, Viola kitaibeliana le caractérisent, avec des différentielles thermophiles comme Mibora minima, Catapodium rigidum, Silene conica, Bupleurum baldense.
Les colonnes 13 et 14 sont des communautés semblant basales, proches de l’association précédente, recensées sur la côte ouest du Cotentin, qu’on peut dénommer provisoirement groupement à Trifolium scabrum & Veronica arvensis. La colonne 15 évoque un groupement à Trifolium striatum & Catapodium rigidum B. Foucault 1995, faiblement différencié.
Les colonnes 16 à 19 illustrent l’Erodio cicutarii-Alyssetum alyssoidis Lafon & Henry 2022, différencié par Alyssum alyssoides, Petrorhagia prolifera, Medicago littoralis, Linaria supina et les thermophiles du groupe précédent. Cette association est présente en Bretagne méridionale, ainsi que sur leurs îles et jusqu’en Charentes. Comme pour les deux groupements suivants, la disparition de Cerastium semidecandrum et des compagnes des Cardaminetea hirsutae, est compensée par l’apparition d’espèces nitrophiles : Erodium cicutarium, Lagurus ovatus subsp. ovatus, Anisantha rigida. Ceci est probablement due à une fréquentation touristique plus intense de ces régions, le compartiment annuel étant le premier à s’eutrophiser en cas d’anthropisation.
Les colonnes 20 et 21 sont probablement à rapporter au Medicagini minimae-Phleetum arenarii B. Foucault 1999 prov. Il est différencié par Medicago minima, Lysimachia linum-stellatum, Medicago littoralis et les thermophiles habituelles.
L’Omphalodo littoralis-Brometum hordeacei B. Foucault 1999 prov. est illustré par les colonnes 22 à 24. Caractérisé par Omphalodes littoralis subsp. littoralis, Linaria arenaria, Lysimachia linum-stellatum et le groupe des thermophiles basiphiles, la colonne 25 est une communauté basale, thermophile, basiphile et subnitrophile, proche des trois associations précédentes. On peut la dénommer provisoirement groupement à Mibora minima & Catapodium rigidum.
La colonne 26 illustre un groupement très pauvre en espèces, de nature composite, puisqu’il est constitué de deux taxons mésotrophiles, Phleum arenarium, Arenaria serpyllifolia, et de deux taxons eutrophiles, Bromus hordeaceus subsp. thominei, Erodium cicutarium. Il s’agit manifestement d’une tonsure à annuelles eutrophisée, qui a même perdu toutes les espèces thermophiles, bien qu’elle vienne des mêmes régions que les précédents groupements. On peut la nommer provisoirement groupement à Phleum arenarium & Bromus hordeaceus subsp. thominei.
Les colonnes 27 à 31, extraites du travail de Dierssen (1996), proviennent du Nord-Ouest européen (Norvège, Danemark, îles Féroés, Écosse, Irlande) et sont donc dépourvues d’espèces thermophiles. Elles combinent des taxons basiphiles (Clinopodium acinos) et des taxons acidiphiles (Trifolium arvense), mais en fréquence faible. Compte-tenu de la dynamique d’acidification des dunes littorales atlantiques, originellement basiphiles, on peut imaginer une communauté boréale européo-atlantique originelle avec une sous-association de transition vers les sables décalcifiés. On peut ainsi proposer un Clinopodio acini-Cerastietum semidecandri ass. nov. hoc loco.
La suite du tableau nous permet d’aborder les arrière-dunes décalcifiées. On bascule ainsi vers les Tuberarietea guttatae acidiphiles tout en conservant quelques espèces relictuelles des Stipellulo capensis-Brachypodietea distachyi basiphiles, car la décalcification de surface, liée à l’éloignement de la mer et à la dissolution des carbonates sous l’effet de la pluviométrie, est rarement totale en système maritime.
Les colonnes 32 à 35 semblent pouvoir se rattacher à l’Airetum praecocis (Schwick. 1944) Krausch 1968 qui n’est pas spécifique du littoral et apparaît également à l’intérieur des terres. Ces colonnes proviennent de régions psychro-atlantiques (Norvège, Allemagne du Nord-Ouest et Grande-Bretagne).
Mieux caractérisé est le Vulpio ciliatae subsp. ambiguae-Airetum praecocis (Géhu & B. Foucault 1978) B. Foucault 1999, dont les espèces caractéristiques sont Vulpia ciliata subsp. ambigua, Aphanes australis, Ornithopus perpusillus, Moenchia erecta, Vicia lathyroides, Trifolium arvense. On peut y distinguer une sous-association appauvrie (colonnes 36 et 37), une sous-association typique (colonne 38) et une sous-association à Logfia minima (colonne 39), qui fait la transition avec l’association suivante. Ces quatre colonnes proviennent du Nord-Ouest français.
Les colonnes 40 à 44 sont le Senecioni vulgaris subsp. denticulati-Teesdalietum nudicaulis Lafon in Lafon, Le Fouler, Dufay & Hardy 2022 et proviennent du littoral aquitain. Les caractéristiques en sont Micropyrum tenellum, Teesdalia nudicaulis, Logfia minima, Tuberaria guttata, Vulpia fasciculata, Senecio vulgaris subsp. denticulatus. Proche en est l’Airo praecocis-Tuberarietum guttatae B. Foucault 2023 (colonne 45) des îles sud-armoricaines, où on remarque Aira multiculmis et Anthoxanthum aristatum.
Les colonnes 46 à 52 illustrent le Sileno portensis-Vulpietum fasciculatae B. Foucault 1999 prov. décrit du Pays basque. Proche de l’association aquitaine, il s’en distingue par Silene portensis.
Enfin trois groupements issus du travail de Lafon et al. (2022) semblent être des formes appauvries ou eutrophisées des associations précédemment évoquées. Il en est ainsi d’un groupement à Hypochaeris glabra et Logfia minima (colonne 53), du Laguro ovati-Vulpietum fasciculatae Géhu & Géhu-Franck 1985 (colonne 54) et d’un groupement à Phleum arenarium & Vulpia fasciculata (colonnes 55 à 57).
3. Les végétations bryophytiques des dunes maritimes noires atlantico-européennes
En phytosociologie synusiale (Gillet et al., 1991 ; Gillet & Julve, 2018), il est nécessaire d’analyser séparément les végétations herbacées vivaces, les végétations herbacées annuelles, les végétations bryophytiques et les végétations lichéniques. J’ai déjà exprimé les raisons de cette séparation dans le cas des dunes maritimes fixées (Julve, 2024), raisons reprises en début de cet article. Ajoutons que ce qui distingue les dunes grises et les dunes noires est la présence des mousses et des lichens dans ces dernières, alors qu’elles sont absentes des premières.
Il existe une compétition entre bryophytes et lichens, l’azote du sol favorisant les premiers et le phosphore les seconds (Sparrius et al., 2013), si bien que les complexes bryo-lichéniques ne sont jamais en équilibre pérenne. Mais il existe une autre raison, c’est la très faible palatabilité des bryophytes pour les herbivores. Ainsi Prins (1981) montre que les mousses ont une faible digestibilité et sont riches en composés peu appétants proches de la lignine, riches en parois cellulaires épaisses et polymères phénoliques, tannins, donc avec une biodégradabilité très faible, même pour les ruminants. Elles ont une faible teneur en protéines, lipides, sucres et en minéraux, ce qui les rend peu énergétiques. Enfin leur faible biomasse et leurs fibres indigestes les font rarement consommer sauf épisodiquement en zones subarctiques. Haines et Renwick (2009) précisent que les insectes consomment beaucoup moins de mousses que des plantes vasculaires, que certaines mousses (ex. Leucobryum glaucum) contiennent des extraits éthanoliques répulsifs, voire des composés toxiques pour les bactéries intestinales et que les mécanismes pré-ingestifs (goût, répulsion) jouent un rôle clé dans l’évitement. Au global seuls les tardigrades et certains gastéropodes ou larves d’insectes semblent en consommer régulièrement. Les lagopèdes et les rennes consomment plutôt épisodiquement des lichens, pour survivre en zones arctiques.
Les végétations bryophytiques basiphiles et acidiphiles sont présentées en deux tableaux distincts. Les colonnes 1 à 18 du tableau 5 illustrent l’Homalothecio lutescentis-Syntrichietum ruraliformis Julve 2005 ex hoc loco, avec quatre sous-associations : la forme typique (colonnes 1-6) des sables calcarifères fixés, une forme appauvrie (colonnes 7-9), une forme sciaphile à Racomitrium canescens et Abietinella abietina (colonnes 10-14), une forme en voie de décalcification à Brachythecium albicans (colonnes 15-18). Cette association est répandue dans les dunes maritimes fixées du littoral de la mer du Nord et de la Manche.
Les colonnes 19 à 31 montrent un vicariant thermophile des côtes du golfe de Gascogne, de la Bretagne méridionale au Pays basque. Il s’agit du Tortello squarrosae-Syntrichietum ruraliformis ass. nov. hoc loco, caractérisé par Tortella squarrosa et une fréquence accrue de T. flavovirens, Hypnum cupressiforme var. lacunosum. Là aussi on observe quatre sous-associations : typique (colonnes 19-28), à faciès pionnier à Barbula convoluta, B. unguiculata, Streblotrichum convolutum, Didymodon acutus (colonne 29), à Rhynchostegium megapolitanum (colonne 30) et en voie de décalcification avec Brachythecium albicans (colonne 31).
Les quatre dernières colonnes sont issues de travaux italien (Cogoni et al., 2011) et espagnol (Guerra & Puche, 1984), des côtes méditerranéennes, à titre de comparaison. On y note l’absence de Syntrichia ruraliformis. La colonne 32 des côtes de Sardaigne montre un goupement à Tortella flavovirens & T. squarrosa Cogoni, Brundu & Zedda 2011, proche de l’association précédente mais appauvri. Il en est de même pour la colonne 33 qui montre un goupement à Tortella flavovirens & Rhynchostegium megapolitanum Cogoni, Brundu & Zedda 2011, vicariant de la troisième sous-association du Tortello squarrosae-Syntrichietum ruraliformis. La colonne 34 d’Espagne montre le Tortello flavovirentis-Bryetum dunensis Guerra & Puche 1984, caractérisé par les deux espèces éponymes. Enfin la colonne 35 illustre une BC Tortella flavovirens [Tortellion flavovirentis] très basale, mais fréquente en Sardaigne.
Le tableau 6 présente les groupements des sables décalcifiés, tels qu’ils apparaissent dans les arrière-dunes plus anciennes, plus éloignées du littoral, qui ont subi la décarbonatation pluviale sur une durée plus grande. Le Brachythecietum albicantis Gams ex Neumayr 1971 (colonne 1) est établi sur des sols peu décalcifiés et bien éclairés. Il reste relativement proche des groupements basiphiles avec lesquels il fait une transition. Les colonnes 2 à 5 illustrent le Pohlio nutantis-Polytrichetum juniperini von Krusenstjerna 1945, présent tout le long de la façade atlantico-européenne sur des sols acidiclines plutôt mésotrophes. Il serait possible d’y reconnaître quatre sous-associations, correspondant aux quatre colonnes, mais il paraît préférable d’attendre davantage de matériel pour l’affirmer.
Les colonnes 6 à 14 correspondent au classique Polytrichetum piliferi Klika 1931, acidiphile et oligotrophile, plus pionnier que le précédent et répandu dans toute l’Europe occidentale. Le Polytricho longiseti-Dicranetum scoparii Kurkova 1978 des colonnes 15 et 16 apparaît sur des sols plus profonds, plus stabilisés, parfois un peu ombragés, en Europe septentrionale. La colonne 17 montre enfin une communauté basale à Ceratodon purpureus, assez courante sur le littoral, mais fréquente également à l’intérieur des terres. L’ensemble de ces cinq communautés n’est pas spécifique au littoral maritime et apparaît aussi bien à l’intérieur des terres sur les substrats sableux peu profonds à régosol superficiel.
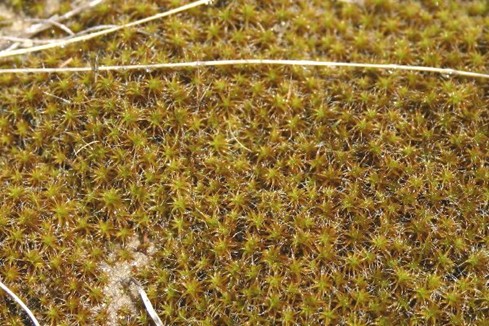
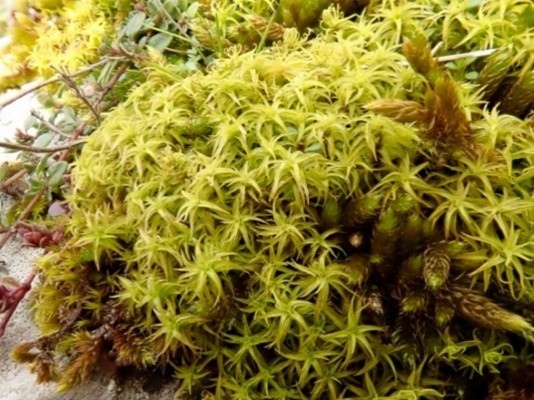
4. Les végétations lichéniques des dunes maritimes fixées atlantico-européennes
Les végétations lichéniques dunaires apparaissent sur des dunes bien fixées. Malgré le nombre important de relevés et le grand nombre d’espèces inventoriées, il ne semble possible d’y reconnaître que trois groupements sur les dunes maritimes étudiées (tableau 7).
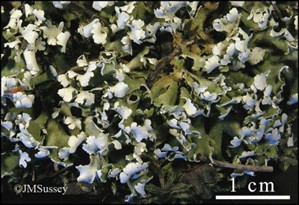
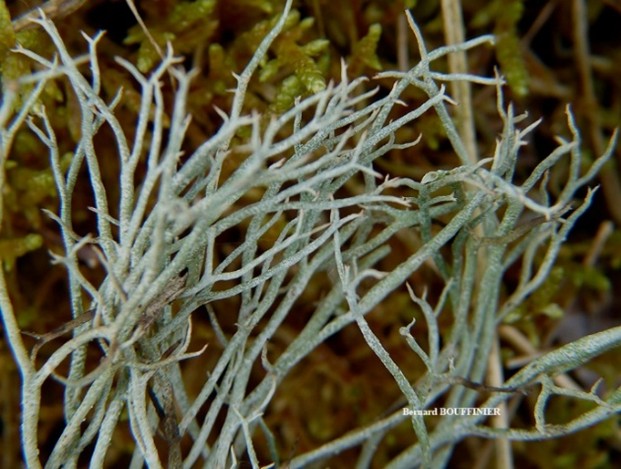
Les colonnes 1 à 3 illustrent de rares groupements épiphytiques à Agonimia vouauxii, Scytinium schraderi, S. pulvinatum, qui n’ont été reconnus pour l’instant qu’en Aquitaine (Beudin et al., 2022). Les colonnes 4 à 23 présentent le Cladonietum foliaceae subsp. foliaceae Klement 1955 corr. Drehwald 1993, une association acidiphile des sables arrière-littoraux décalcifiés. Elle est riche d’une bonne quinzaine d’espèces de Cladonia (photos 14 et 15) et apparaît aussi bien en pleine lumière que sous des pinèdes, sur la totalité de l’aire envisagée. Elle peut même atteindre le littoral méditerranéen (Cogoni et al., 2011, Sardaigne), comme le montre la colonne 4.
Le Cladonietum foliaceae subsp. endiviifoliae Kaiser 1926, des colonnes 24 à 32, est une association basiphile des sables fixés maritimes, plus proches du littoral et donc encore riches en fragments de coquilles de mollusques. Elle est caractérisée par Cladonia foliacea subsp. endiviifolia, C. furcata subsp. subrangiformis, Peltigera rufescens. Elle atteint également la Méditerranée (colonne 24).
5. Les géosigmetums des dunes maritimes fixées atlantico-européennes
Ils sont précisés dans leurs compositions syntaxinomiques par les tableaux systémiques 8 (systèmes basiphiles des dunes fixées littorales) et 9 (systèmes acidiphiles des arrière-dunes décalcifiées).
Le tableau 8 fournit des données des côtes de la mer Baltique (Suède et Poméranie) jusqu’à l’Algarve (Portugal méridional). On y reconnaît vingt géosigmetums en bandes parallèles au littoral, allant des laisses de mer jusqu’aux boisements arrière-dunaires de bois durs. Il reste encore des cases à identifier ou à confirmer, mais le tableau présenté fournit déjà une base de travail. Le tableau 9 des systèmes acidiphiles reste en grande partie à compléter mais fournit déjà un canevas de base fiable, avec également vingt géosigmetums. L’analyse de détail de ces deux tableaux systémiques serait trop longue pour le cadre imparti à cet article, mais l’information qui y est contenue pourra servir aux travaux portant sur les dunes arrière-littorales. Ajoutons qu’il conviendrait également de traiter les géosigmetums concentriques (sensu Julve & Vitte, 2019) des dépressions humides, ponctuelles dans les systèmes dunaires.
Bibliographie
Association française pour l’étude du sol (AFES), Baize D. & Girard M.-C. (coords.), 2008. Référentiel pédologique. Editions Quae, Versailles, 405 p.
Berner E.K. & Berner R.A., 1987. The Global Water Cycle: Geochemistry and Environment. Prentice-Hall Inc., Englewood Cliffs, New Jersey 07632, USA, xiv + 397 p.
Beudin T., Bernard E. & David R., 2022. Caractérisation des communautés bryo-lichéniques des dunes grises de Nouvelle-Aquitaine (HIC 2130*) et contribution à l’évaluation de leur état de conservation. Conservatoire botanique national Sud-Atlantique, 76 p. + annexes.
Birse E.L., 1980. Plant communities of Scotland, revised and additional tables. Soil Survey of Scotland Bulletin 4. The Macaulay Institute for Soil Research, Aberdeen.
Bonnot E.-J., 1975. Sur la place et le rôle des bryophytes dans la végétation des dunes. Colloques phytosociologiques 1, La végétation des dunes maritimes : 149-158.
Cogoni A., Brundu G. & Zedda L., 2011. Diversity and ecology of terricolous bryophyte and lichen communities in coastal areas of Sardinia (Italy). Nova Hedwigia 92 (1-2) : 159-175.
Dierssen K., 1996. Vegetation Nordeuropas. UTB für Wissenschaft, Eugen Ulmer, Stuttgart, 838 p.
Foucault B. (de), 2021. Complément à l’étude phytosociologique du littoral du Languedoc-Roussillon : les dunes de Sainte-Marie-la-Mer à Argelès-sur-Mer ; comparaison avec un système arrière-dunaire atlantique. Carnets botaniques 32 : 1-13 + tabl.
Géhu J.-M., 1963. L’excursion dans le nord et l’ouest de la France de la Société internationale de phytosociologie. Bulletin de la Société de botanique du Nord de la France 16 : 105-189.
Géhu J.-M., 1964a. L’excursion dans le nord et l’ouest de la France de la Société internationale de phytosociologie. Vegetatio 12 (1-2) : 1-95.
Géhu J.-M., 1964b. La végétation psammophile des îles de Houat et Hoëdic. Bulletin de la Société de botanique du nord de la France 17 (4) : 238-266.
Géhu J.-M., 1995. Les côtes de France (Corse incluse). Inventaire typologique des milieux terrestres littoraux menacés à des fins conservatoires, 2 – Thesaurus des phytocoenoses littorales atlantiques. Centre régional de phytosociologie agréé Conservatoire botanique national de Bailleul, Fondation de France, 223 p.
Géhu J.-M. & J. Franck, 1982. La végétation du littoral Nord-Pas de Calais (essai de synthèse). Bailleul, 362 p.
Gillet F., de Foucault B. & Julve Ph., 1991. La phytosociologie synusiale intégrée : objets et concepts. Candollea 46 : 315-340.
Gillet F. & Julve Ph., 2018. The integrated synusial approach to vegetation classification and analysis. Phytocoenologia 48, special issue on Vegetation Classification Approaches : 141-152.
Govaerts R. (ed.), 2024. WCVP: World Checklist of Vascular Plants. Facilitated by the Royal Botanic Gardens, Kew. [WWW document] URL http://sftp.kew.org/pub/data-repositories/WCVP/ [21 May 2024].
Guerra J. & Puche F., 1984. Bryum dunense Smith & Whitehouse en la Península Ibérica y Baleares. Observaciones taxonomicas, corologicas y fitosociologicas. Acta Botánica Malacitana 9 : 85-92.
Haines W.P. & Renwick J.A., 2009. Bryophytes as food: comparative consumption and utilization of mosses by a generalist insect herbivore. Entomologia Experimentalis et Applicata 133 (3) : 296-306.
Hocquette M., 1954. Lichens et lapins ou la mort de la dune noire. Bulletin de la Société de botanique du nord de la France 7 : 1-4.
Julve Ph., 2024. Comment étudier phytosociologiquement les dunes noires des littoraux maritimes atlantiques ? Bulletin de la Société de botanique du nord de la France 77 : 119-128.
Julve Ph. & Vitte M., 2019. Des synusies aux terroirs : un modèle dynamique et des échelles spatiales. Actes du colloque international de Brest, septembre 2014, La phytosociologie paysagère, des concepts aux applications. Documents phytosociologiques, 3e série, 9 : 46-56.
Lafon P., Le Fouler A., Dufay J. & Hardy F., 2022. Contribution à la connaissance phytosociologique de la xérosère des dunes littorales non boisées d’Aquitaine (France). Carnets botaniques 94 : 1-23.
POWO, 2025. Plants of the World Online. Facilitated by the Royal Botanic Gardens, Kew. Published on the Internet; https://powo.science.kew.org/, [12 May 2025].
Prins H.H.T., 1981. Why Are Mosses Eaten in Cold Environments Only? Oikos 38 : 374-380.
Roux C. et al., 2025. Catalogue des lichens et champignons lichénicoles de France métropolitaine, 4e édition revue et augmentée. Edit. Claude Roux, Mirabeau (Vaucluse), 2 015 p.
Sissingh G., 1974. Comparaison du Roso-Ephedretum de Bretagne avec des unités de végétation analogues (contribution à la systématique des associations de dunes grises atlantiques et méditerranéennes). Documents phytosociologiques 7-8 : 95-106.
Sparrius L.B., Kooijmann A.M. & Sevink J., 2013. Response of inland dune vegetation to increased nitrogen and phosphorus levels. Applied Vegetation Science 16 (1) : 40-50.
Tison J.-M. & de Foucault B., 2014. Flora Gallica, Flore de France. Biotope, Mèze, xx + 1 196 p.
Tüxen R., 1937. Die Pflanzengesellschaften in Nordwestdeutschland. Mitteilungen der Floristische Soziologische Arbeitsgemeinschaft Niedersachsen 3 : 1-170.
Remerciements
Nous remercions les amis du Conservatoire botanique national des Hauts-de-France, ainsi que Richard Lindsay, pour la mise à disposition de textes et tableaux difficilement accessibles.