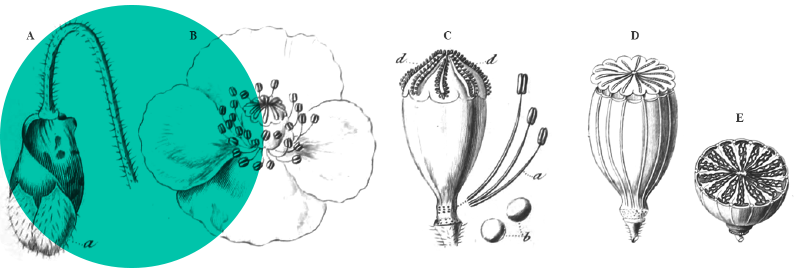
Sur la végétation de la Sibérie centro-méridionale et de la Mongolie
Title
On the vegetation of central and southern Siberia and Mongolia
Résumé
Le présent travail apporte une nouvelle vision de la végétation de Sibérie centro-méridionale et de Mongolie en abordant les boisements de Larix sibirica, des fourrés accueillant divers Caragana, des steppes vivaces à Artemisia, des mégaphorbiaies, la végétation halophile surtout vivace. Trois ordres et douze alliances nouveaux ont été définis ou validés.
Abstract
This study provides a new perspective on the vegetation of central-southern Siberia and Mongolia by examining Larix sibirica forests, shrubs with various Caragana species, perennial Artemisia steppes, tall herbs communities, and halophytic vegetation, primarily perennial. Three new orders and twelve new alliances have been defined or validated.
1. Introduction
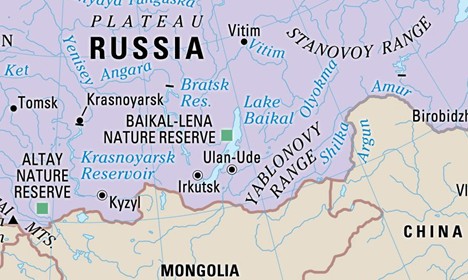
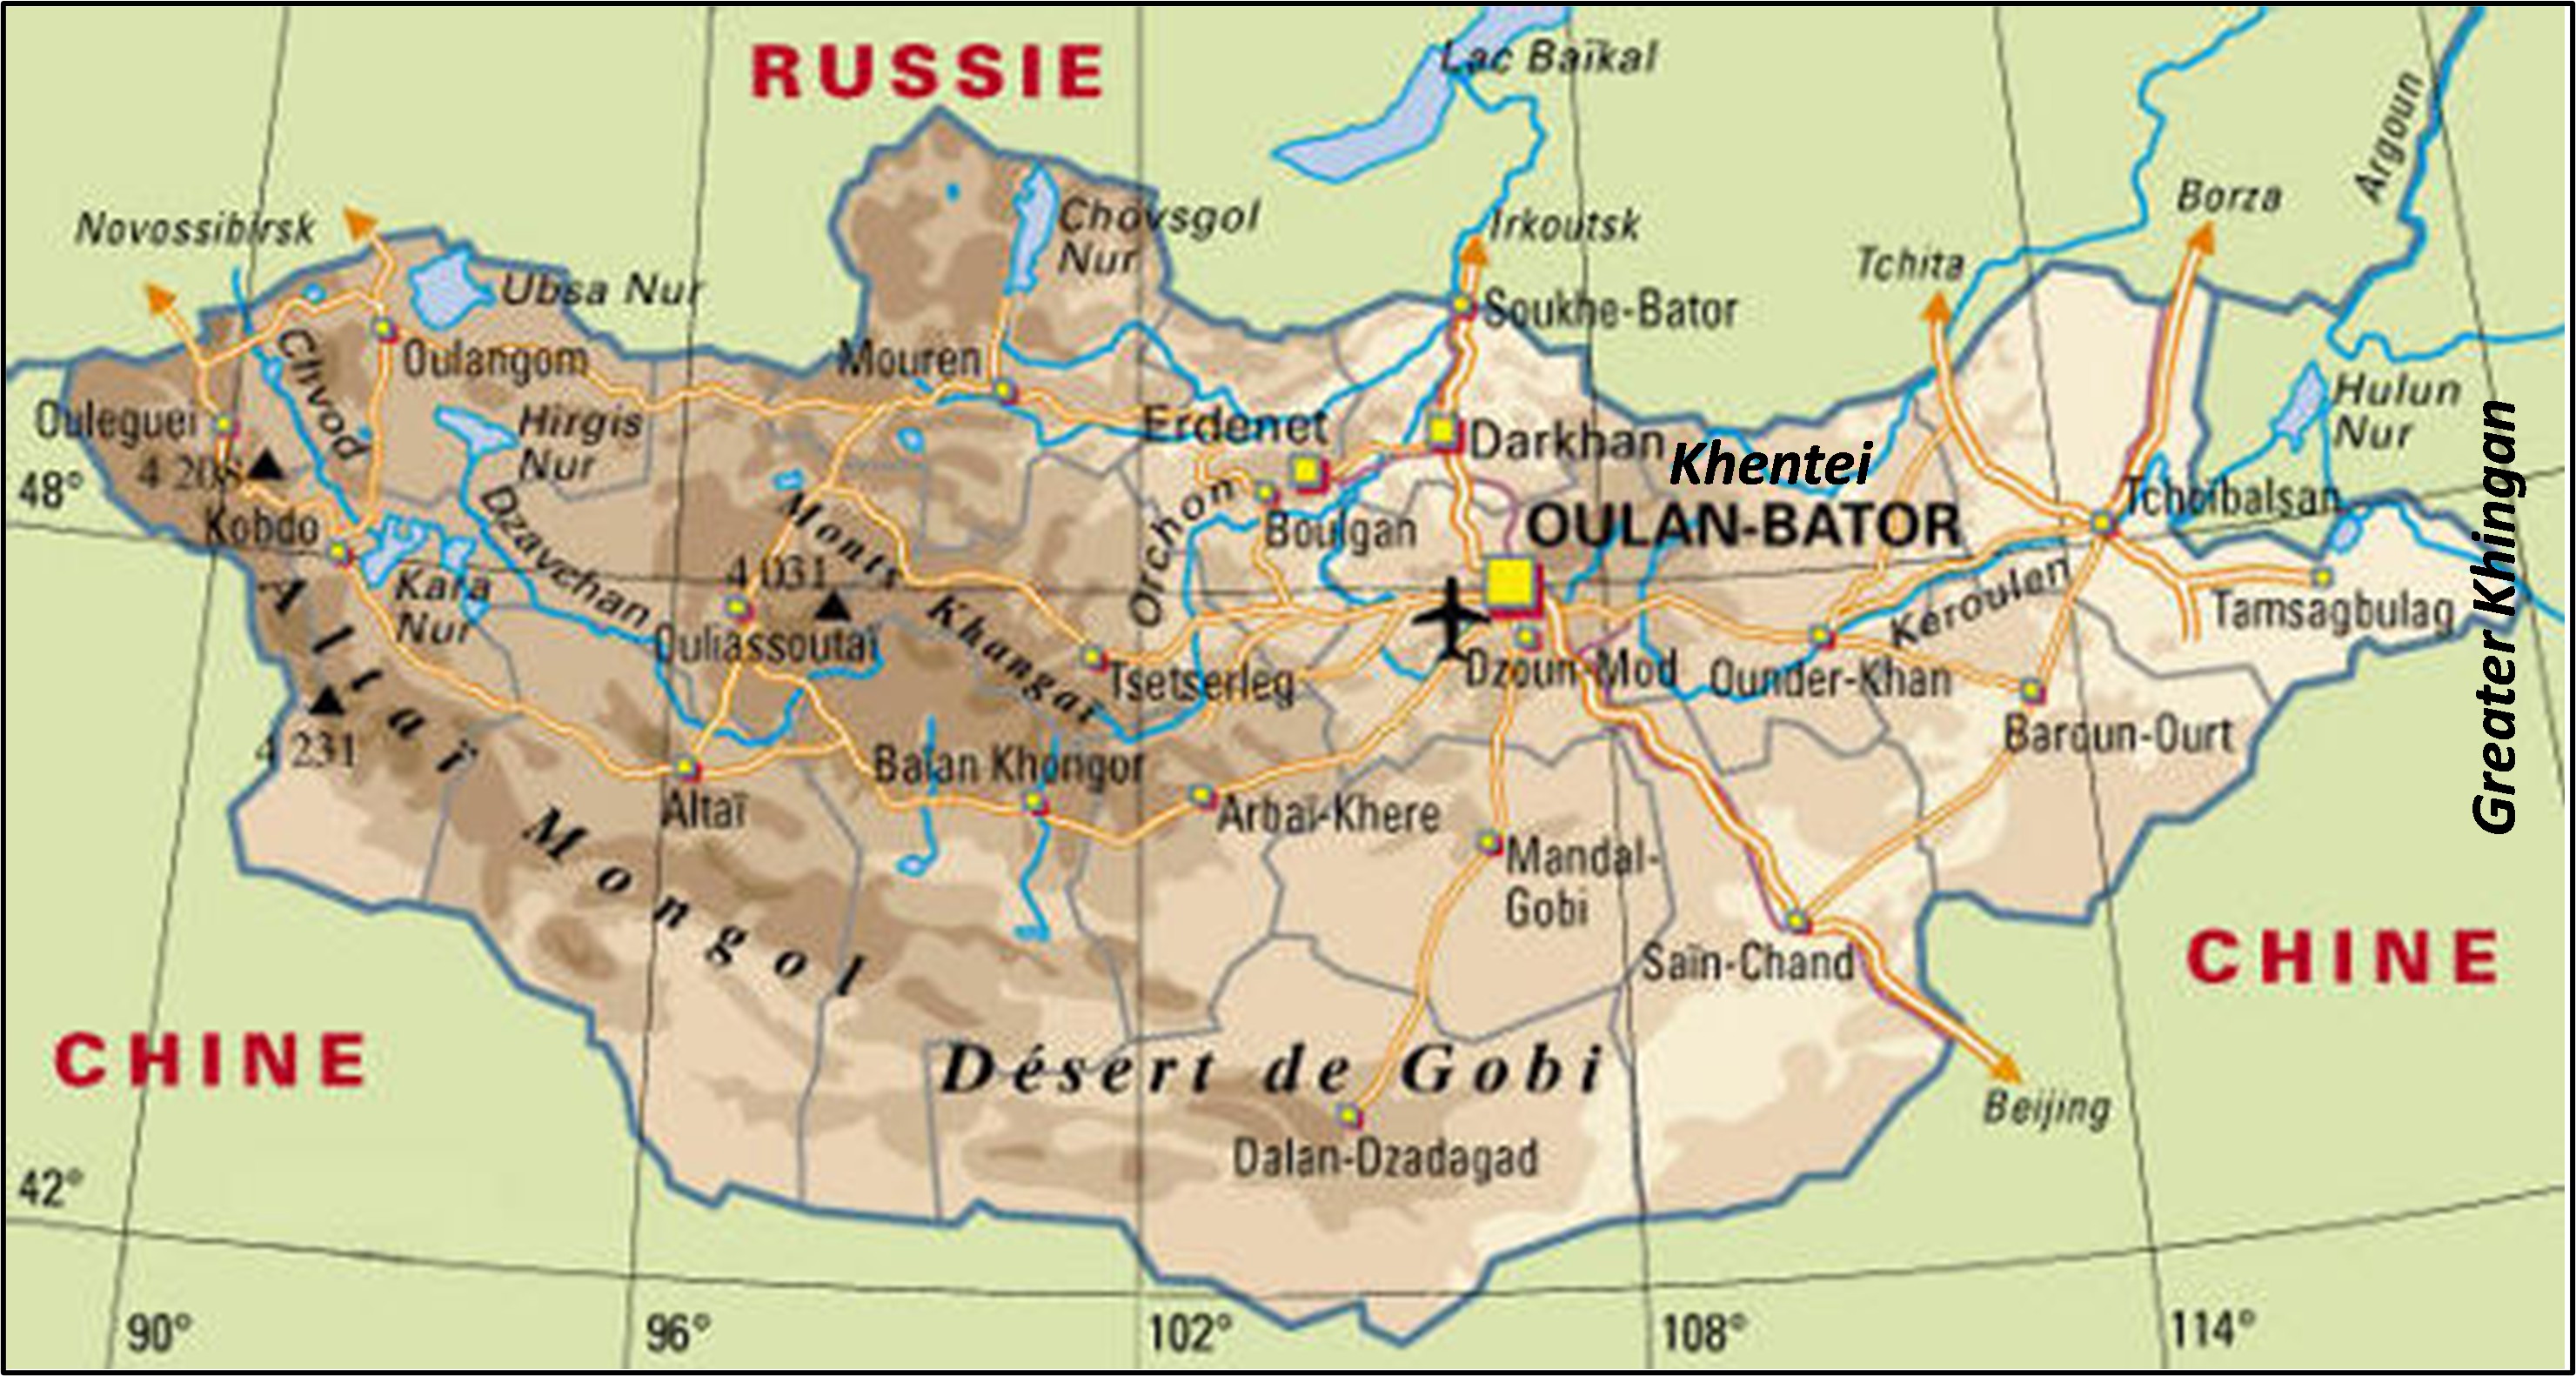
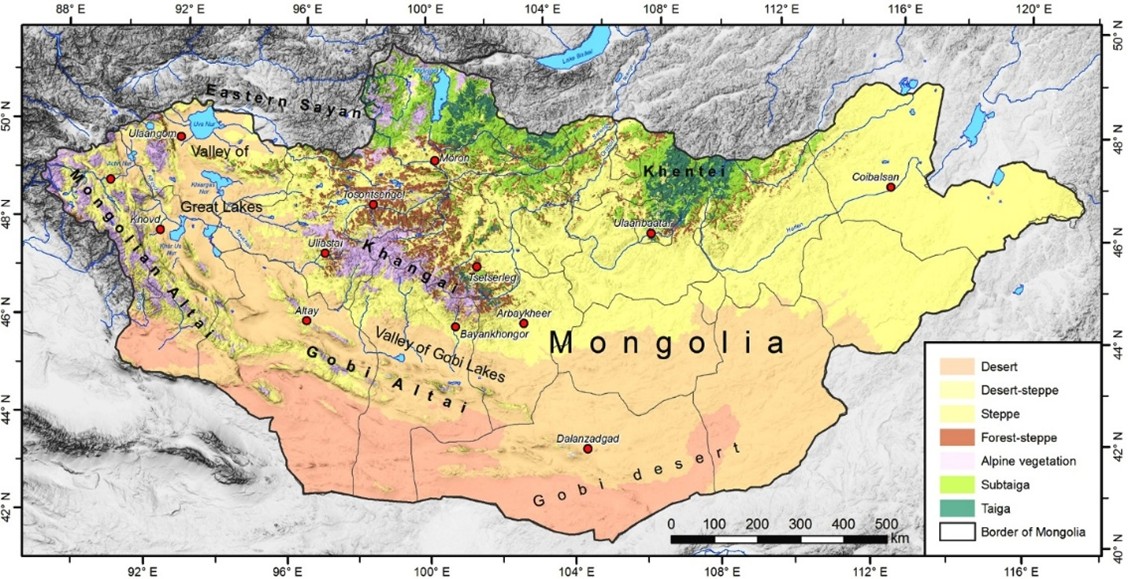
Entre la Sibérie russe au nord (3 485 km de frontière commune ; carte 1) et la Chine (4 673 km de frontière commune) pour ses autres frontières, la Mongolie (carte 2) est fondamentalement un pays de steppes (carte 3). C’est seulement dans sa partie septentrionale qu’y débordent significativement les forêts sibériennes méridionales, se rattachant à des taïgas. D’un point de vue phytogéographique, Takhtajan (1986) place ces régions dans l’empire holarctique, le sous-empire boréal, la région circumboréale (avec les provinces Altaï-Sayan et sibérienne moyenne) et la région irano-touranienne (avec la province mongole). Divers travaux ont apporté des données importantes sur la végétation mongole. On propose ici de synthétiser certaines d’entre elles, en ajoutant quelques données de Sibérie plus septentrionale.
La flore sibérienne et mongole a été abordée notamment par le botaniste allemand Peter Simon Pallas (1741-1811 ; photo 1). Il est d’abord instruit par des précepteurs et montre très tôt un penchant pour l’histoire naturelle et, dès l’âge de treize ans, il parle couramment le latin et le grec, ainsi que le français et l’anglais, en plus de l’allemand, sa langue natale. Le jeune Pallas suit d’abord les cours du collège médico-chirurgical en anatomie, physiologie, chirurgie, ainsi qu’en botanique et en zoologie. Il fréquente ensuite les universités de Halle et de Göttingen, où il apprend notamment la botanique selon le système de Linné. Après 1762, il s’installe à La Haye pour y trouver une situation, mais il est finalement trop occupé par ses travaux de recherche. Il y fait la connaissance de Samuel Gottlieb Gmelin. Il fait part de son système de classification des animaux à Cuvier qui l’approuve. Sa notoriété est déjà si grande qu’il devient membre, à l’âge de vingt-trois ans, de la Royal Society de Londres en 1764, ainsi que de l’Académie de Rome. Il commence à organiser un voyage en Afrique du Sud et en Asie, mais il doit y renoncer, son père le rappelant à Berlin en 1766. Il commence alors à travailler sur son Spicilegia zoologica (paru à Berlin en 1767-1804, en deux tomes).
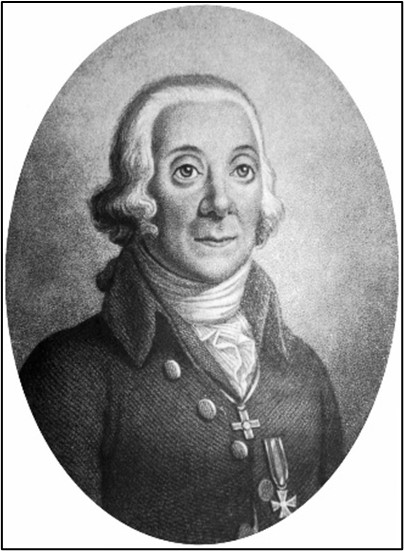
Le 22 décembre 1766, Pallas est nommé par Catherine II de Russie professeur d’histoire naturelle à l’Académie impériale des sciences de Saint-Pétersbourg. Il est élu membre de cette Académie le 23 avril et arrive en Russie fin juillet 1767.La Grande Catherine s’intéresse à l’étude des ressources naturelles de son empire et, après sa propre expédition de 1767 de Saint-Pétersbourg jusqu’à Simbirsk, décide de favoriser les travaux des savants dans ce sens. Pallas est choisi pour diriger une expédition en Sibérie dans la région d’Orenbourg pour y collecter des spécimens d’histoire naturelle. Elle part de Saint-Pétersbourg le 21 juin 1768 en étant dirigée du point de vue militaire par le capitaine Nikolaï Rytchkov et composée de plusieurs groupes. Le premier, outre Pallas, comprend trois jeunes étudiants, Nikita de Sokolov et Vassili Zouïev (futurs académiciens), ainsi que d’Anton Weber, d’un dessinateur, Nikolaï Dmitriev, et d’un taxidermiste, Pavel Choumski. L’expédition se rend dans les gouvernements de Russie centrale, puis dans la région de la Volga, vers la Caspienne, ensuite vers l’Oural, la Sibérie occidentale, l’Altaï, la région du lac Baïkal et la Transbaïkalie. L’expédition prend fin le 30 juin 1774.
Les résultats de l’expédition dépassent toutes les espérances. Des spécimens précieux sont collectés dans le domaine de la zoologie, de la botanique, de la paléontologie, de la géologie, de la géographie physique, ainsi que des informations et des pièces d’histoire ou d’économie, d’ethnographie, etc. Toutes les collections sont rassemblées à Saint-Pétersbourg, surtout à la Kunstkamera. Beaucoup sont recueillies aujourd’hui dans différents musées dépendant de l’Académie des sciences de Russie et une partie est acquise par l’université de Berlin. Toutes les collections sont ensuite étudiées par Pallas pendant les longues années de sa carrière.
La résonance est fort importante auprès des milieux scientifiques de l’époque, car l’expédition a permis de découvrir des spécimens inconnus dans des régions méconnues, comme l’Altaï ou la Sibérie orientale, et de décrire d’un point de vue géographique et géologique des régions inhabitées et intouchées par l’homme. Certaines espèces décrites par Pallas disparaissent quelques dizaines d’années plus tard, comme le tarpan (Equus ferus ferus). Toutes ces découvertes donnent lieu à de nombreuses publications de Pallas parues à Saint-Pétersbourg, en latin et en allemand, ainsi qu’en russe ou en français, et traduites plus tard à Londres ou à Paris.
Après 1774, Pallas est nommé membre du département topographique impérial, puis historiographe du Collège de l’amirauté. Il poursuit ses études scientifiques. Il fait paraître en 1778-1779 son Novae species quadrupedum, e glirium ordine… qui décrit de nombreuses nouvelles espèces de vertébrés de Sibérie. Il devient l’ami de l’impératrice Catherine II. Celle-ci ordonne que tous les herbiers rassemblés par d’autres naturalistes lui soient accessibles, ce qui permet à Pallas de faire paraître sa Flora Rossica (1784-1788 ; photo 2) qui décrit plus de trois cents espèces de plantes. Pallas est démis de ses fonctions en 1792, pour une raison inconnue.
Entre 1793 et 1794, il dirige une seconde expédition financée sur ses fonds propres dans le sud de la Russie, visitant la Volga, Astrakhan, la Caspienne, le nord du Caucase, l’actuelle Crimée (gouvernement de Tauride) et la mer Noire. En 1796, Pallas est envoyé à Simféropol, petite ville à côté de laquelle l’impératrice lui fait don d’un petit domaine (dont il fera un domaine viticole). En chemin vers la Crimée, Pallas s’arrête à Toula, Koursk et Ekaterinoslav.
Une fois installé en Crimée, Pallas visite toute la péninsule. Il y entreprend dans la solitude sa grande œuvre, Zoographia rosso-asiatica, qui l’occupera le reste de sa vie et qui paraît en quatre volumes, le dernier paraissant après sa mort (1811) sous la direction de Wilhelm Gottlieb von Tilesius von Tilenau.
Son œuvre botanique a été poursuivie par Carl Friederich von Ledebour (1785-1851) et Alexander Andrejewitsch von Bunge (1803-1890).
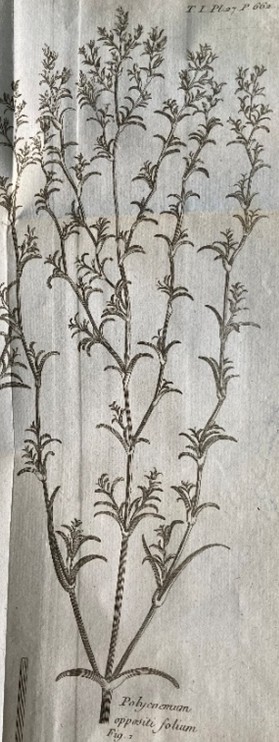
Plusieurs genres botaniques Pallasia homonymes lui ont été dédiés, mais inclus aujourd’hui dans d’autres genres (Calligonum, Encelia, Sporobolus, Wittmackanthus). Seul celui formé à partir de son double prénom reste accepté, Petrosimonia Bunge, famille des Amaranthaceae, rassemblant onze espèces annuelles plus ou moins halophiles du sud-est de l’Europe et d’Asie (voir les Petrosimonio oppositifoliae-Suaedetum splendentis, Salsolo stenopterae-Petrosimonietum nigdeensis, Atriplici calothecae-Petrosimonietum brachiatae ; de Foucault & Guitton, 2021 ; de Foucault, 2022a). Ce genre Petrosimonia est aussi cité par Golub & Tchorbadze (1995) dans leurs tableaux 2 à 4, 6 et 7, cette végétation relevant du Suaedion salsae V. Golub & Tchorbadze 1995 (Phytocoenologia 25 (4) : 458, validé en p. 460, ce qui permet de résoudre l’interrogation sur cette alliance posée par de Foucault & Guitton, 2021 : 7).
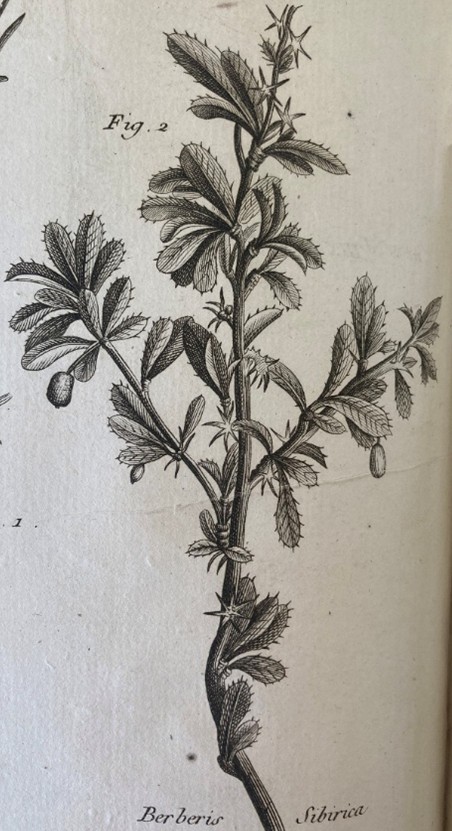
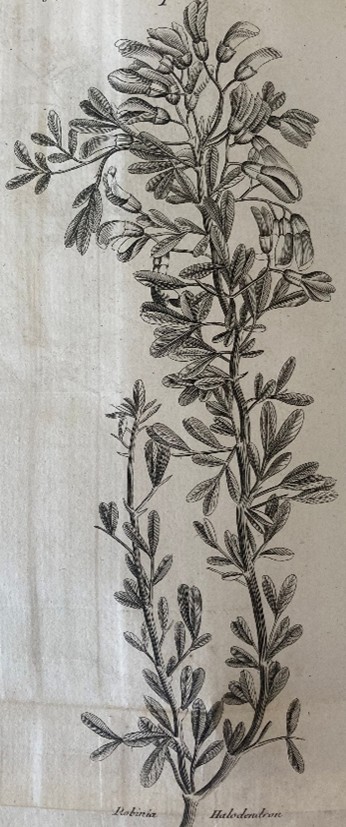
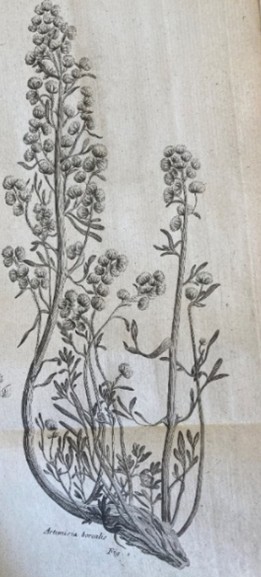
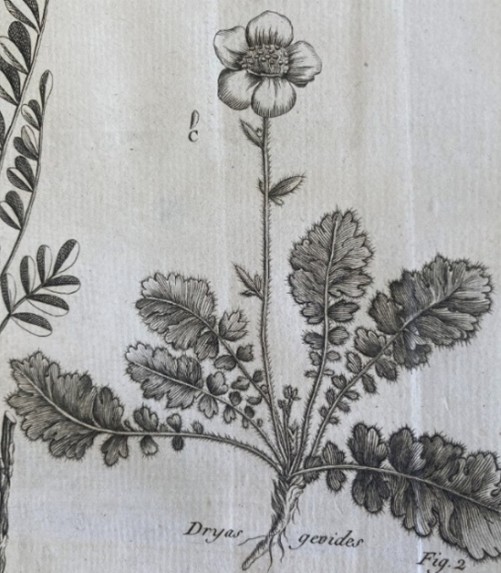
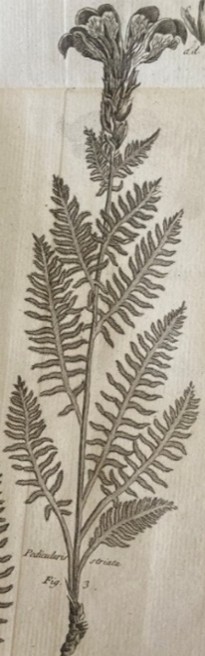
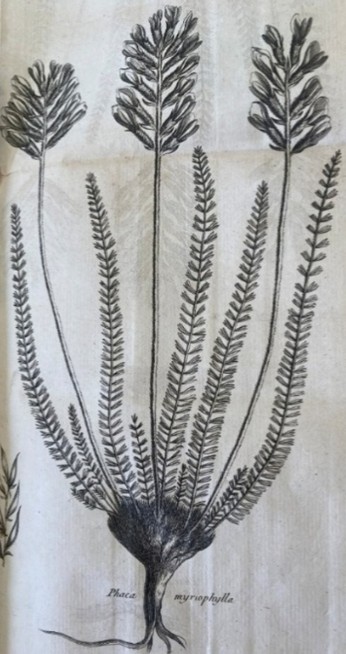
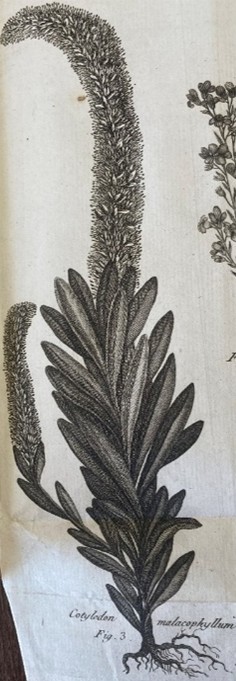
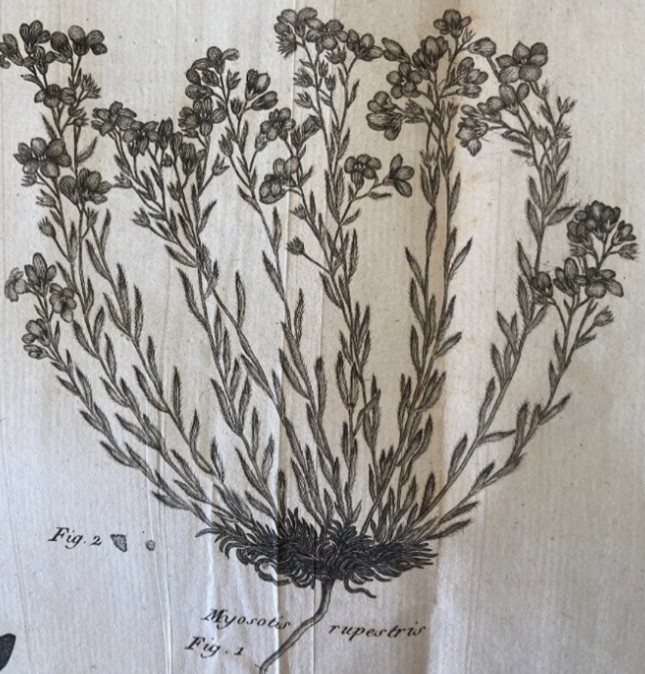
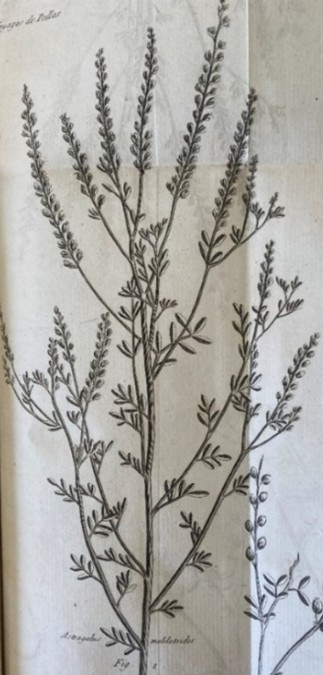
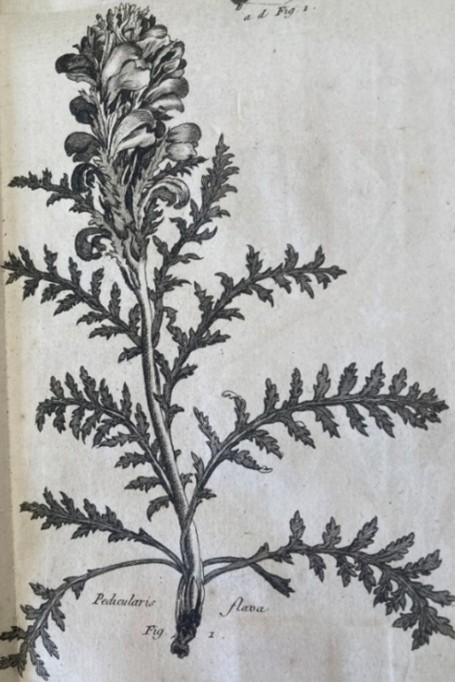
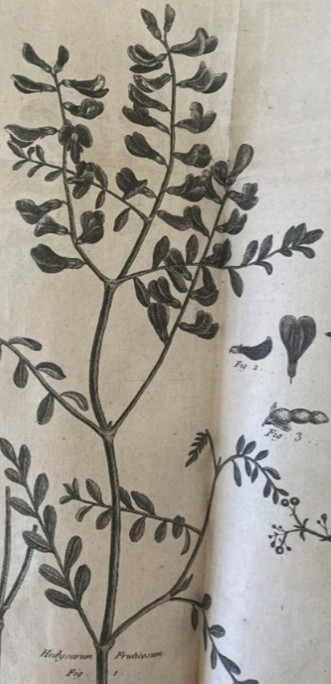
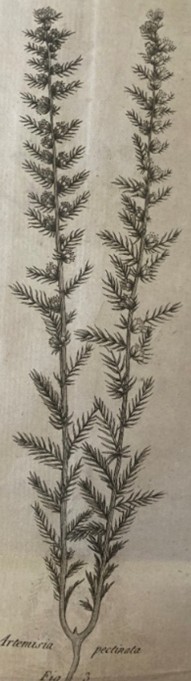
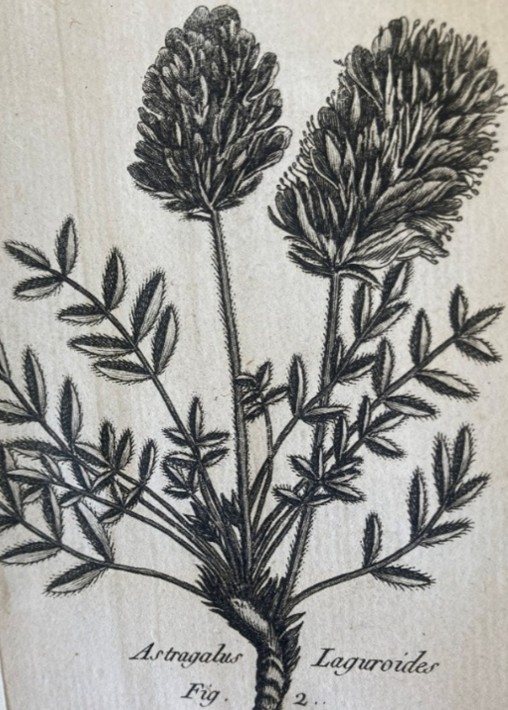
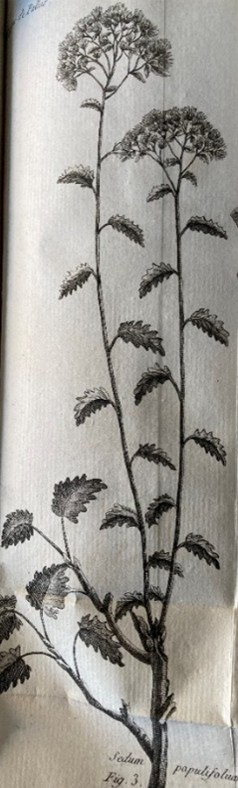
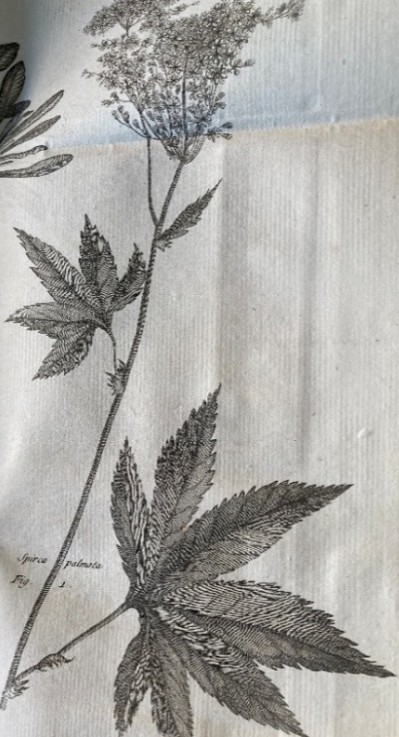
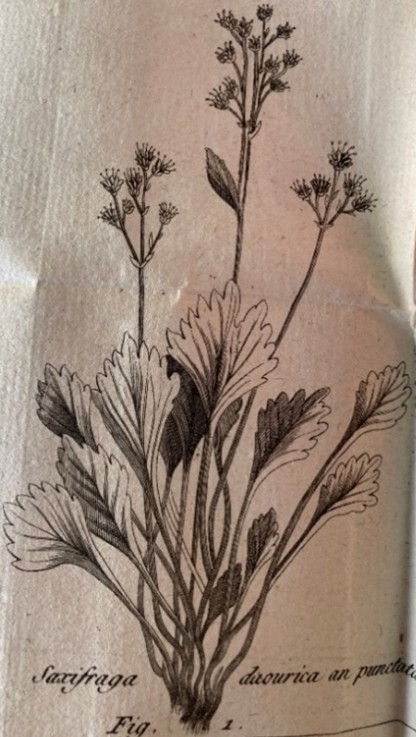
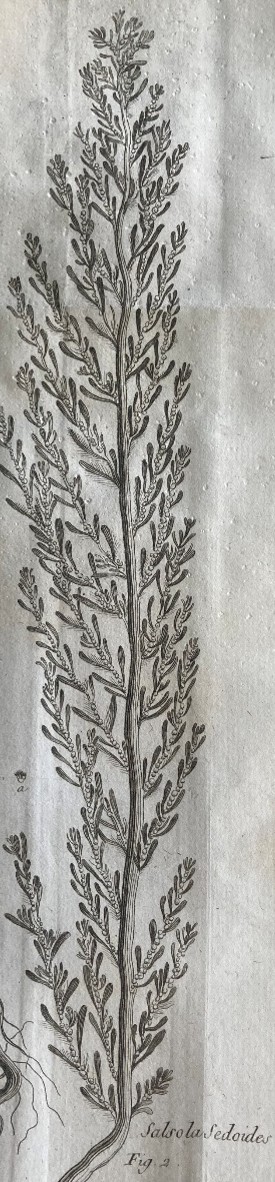
Personnellement, je possède un volume de cent treize planches (photo 3 ; Gaulthier de La Peyronie, 1793 ; Gaulthier est-il son prénom ou fait-il partie de son nom ?) divisé en parties ou tomes d’illustrations cartographiques, zoologiques, ethnographiques… et soixante-dix-sept planches botaniques, dont certaines seront utilisées dans la suite de cet article pour présenter quelques taxons présents en Mongolie, avec souvent la mention du basionyme (exemple photo 4 concernant le genre cité juste au-dessus).
2. Matériel et méthodes
Dans la suite, je vais présenter divers aspects de la végétation décrite dans ces régions. On insistera surtout sur la végétation steppique arbustive et herbacée. Le référentiel nomenclatural suivi ici est Plants of the World Online (POWO). En l’absence de citation des auteurs des binômes linnéens apparaissant dans les tableaux utilisés, il est parfois impossible de rattacher un binôme non accepté par POWO à un binôme accepté ; par exemple « Astragalus galactites » recouvre A. galactites Pall. et A. brevifolius Ledeb. (= A. galactites Ledeb. nom. illeg.), tous les deux présents en Mongolie. Dans cette situation, les deux taxons acceptés seront cités séparés par un / (Astragalus brevifolius / galactites). Pour gagner de la place dans les tableaux, le signe * remplace ‘subsp.’ ou ‘var.’.
Au niveau phytosociologique, j’ai choisi le paradigme synusial. Pour présenter simplement l’interprétation des tableaux joints à ce texte, j’ai utilisé le concept de groupe sociologique (GS), ensemble de taxons ayant des affinités sociologiques et apparaissant dans la structuration des dits tableaux, dénommé à partir d’un taxon représentatif (exemple GS à Stipa krylovii).
On doit à Hilbig (2000) un synsystème de la végétation mongole. Malheureusement les associations qu’il définit ne sont décrites que par leur holotype, de sorte qu’il est difficile d’apprécier le contenu des unités supérieures qui en découlent. Souvent, dans la validation de ses associations, cet auteur fait référence à l’année 1987, qu’on ne retiendra pas ici puisque la publication correspondante est une thèse inédite.
3. La végétation arborescente
Peu de données sont disponibles sur la végétation arborescente de la Sibérie méridionale, laquelle réapparaît en altitude dans certains massifs mongols, taïgas caractérisées surtout par les Gymnospermes Larix sibirica et Pinus sibirica (Karamysheva & Khramtsov, 1995, figure 18 ; Ermakov, 2003, tableau 1 : Tree species). Guinochet (1982, tableau I) en a publié quatre relevés : Larix sibirica 4, Pinus sibirica 4, Betula pubescens 4, Sorbus aucuparia s. l. 3, Picea obovata 1, Abies sibirica 1, décrivant le Larici sibiricae-Pinetum sibiricae Guin. ex ass. nov. hoc loco [syn. : Rhododendro-Pinetum sibiricae Guin. 1982 (Doc. Phytosoc., n. s., VI : 296), Piceo-Abietetum sibiricae Guin. 1982 (Doc. Phytosoc., n. s., VI : 296) nomina inval.], typus nominis hoc loco : composante arborescente du relevé 3 du tableau I in Guinochet (1982, Doc. Phytosoc., n. s., VI hors texte). On retrouve cette association dans le tableau 11 de Chytrý et al. (1993 : relevés 10 à 19) et le tableau 1 de Ermakov & Polyakova (2022, t1).
Dans Hilbig & Knapp (1983, tableau 3), on perçoit une association à Betula pendula subsp. mandshurica et Larix sibirica (sur 25 relevés) : L. sibirica V, B. pendula *mandshurica III, Populus tremula II, Pinus sibirica II, Salix taraikensis I, Picea obovata I, Pinus sylvestris r, le Betulo mandshuricae-Laricetum sibiricae ass. nov. hoc loco, vicariant du Betulo mandshuricae-Laricetum olgensis B. Foucault 2023 coréen (de Foucault, 2023), typus nominis hoc loco : composante arborescente (Baumschicht) du relevé 1 du tableau 3 in Hilbig & Knapp (1983, Flora 174 : 16-21). Leur tableau 5 montre un boisement à Picea obovata (8 relevés) : P. obovata V, Pinus sibirica IV, Betula pendula *mandshurica II, Pinus sylvestris I, Populus tremula I, Larix sibirica I, soit le Pino sibiricae-Piceetum obovatae ass. nov. hoc loco, typus nominis hoc loco : composante arborescente (Baumschicht) du relevé 2 du tableau 5 in Hilbig & Knapp (1983, Flora 174 : 26-27). À partir de ce matériel, on peut reconnaître l’alliance du Pino sibiricae-Laricion sibiricae Ermakov in Ermakov & Alsynbayev 2004, caractérisée par Larix sibirica, Pinus sibirica, Betula pendula subsp. mandshurica, Abies sibirica, Picea obovata, typus nominis hoc loco : le Larici sibiricae-Pinetum sibiricae Guin. ex nov.
Sur la base de près de cent relevés réalisés en république de Komi (nord-est de Moscou, donc bien au nord de notre aire principale d’investigation), avec une nomenclature invalide, Degteva (2001) décrit plutôt le boisement suivant : Picea obovata V, Betula pubescens + B. pendula V, Populus tremula III, Alnus sibirica III, A. incana II Salix caprea II, Pinus sylvestris II, P. sibirica I, Salix pentandra I, S. jenisseensis +, correspondant à l’Abieti sibiricae-Piceetum obovatae ass. nov. hoc loco, typus nominis hoc loco : composante arborescente du relevé 16 du tableau 4 in Degteva (2001, Veg. Russia 2 : 10-13). La même association se retrouve aussi chez Likhanova et al. (2023, tableau 2 : relevés 1 à 8).
Le tableau 7 de Hilbig & Knapp (1983) montre un boisement à Ulmus pumila (sur 10 relevés) : U. pumila V, Prunus padus *p. II, Populus tremula +, soit le Pruno padi-Ulmetum pumilae ass. nov. hoc loco, typus nominis hoc loco : composante arborescente (Baumschicht) du relevé 7 du tableau 7 in Hilbig & Knapp (1983, Flora 174 : 38-39). Enfin leur tableau 8 rapporte une peupleraie (2 relevés) : Populus laurifolia 2, Salix rorida 2, Prunus padus *p. 2, Salici roridae-Populetum laurifoliae ass. nov. hoc loco, typus nominis hoc loco : composante arborescente (Baumschicht) du relevé 1 du tableau 8 in Hilbig & Knapp (1983, Flora 174 : 42).
La végétation forestière abordée par Lashchinskyi & Lashchinskaya (2012) est structurellement dominée par une forêt pionnière à Betula pendula et Populus tremula, qui peut se rattacher au Salici capreae-Betuletum pendulae B. Foucault 2020.
4. La végétation arbustive
La végétation arbustive telle que rapportée par Karamysheva et Khramtsov (1995) est assez pauvre (tableau 1 : colonnes 1 à 8). On peut définir :
- pour les colonnes 1 à 4 (sur 11 relevés) le Caraganetum pygmaeo-bungei ass. nov. hoc loco, typus nominis hoc loco: composante arbustive (Shrubs) du relevé 2 du tableau XI in Karamysheva & Khramtsov (1995, Braun-Blanquetia 17 : 65-66) ;
- pour les colonnes 5 à 8 (sur 17 relevés) le Caraganetum stenophyllo-microphyllae ass. nov. hoc loco, typus nominis hoc loco: composante arbustive (Shrubs) du relevé 9 du tableau X in Karamysheva & Khramtsov (1995, Braun-Blanquetia 17 : 63-64).
Le colonnes 9 et 10 sont originales par Spiraea aquilegiifolia, mais sont d’origine synthétique, donc non validables pour l’instant. Tout cet ensemble a la valeur d’une alliance caractérisée par divers Caragana (C. bungei, C. microphylla, C. stenophylla, C. pygmaea, Fabaceae), ainsi que Dasiphora fruticosa (photo 5), Atraphaxis frutescens, Spiraea hypercifolia subsp. h. (photo 6) : Caraganion microphyllo-pygmaeae all. nov. hoc loco, typus nominis hoc loco : le Caraganetum stenophyllo-microphyllae nov.
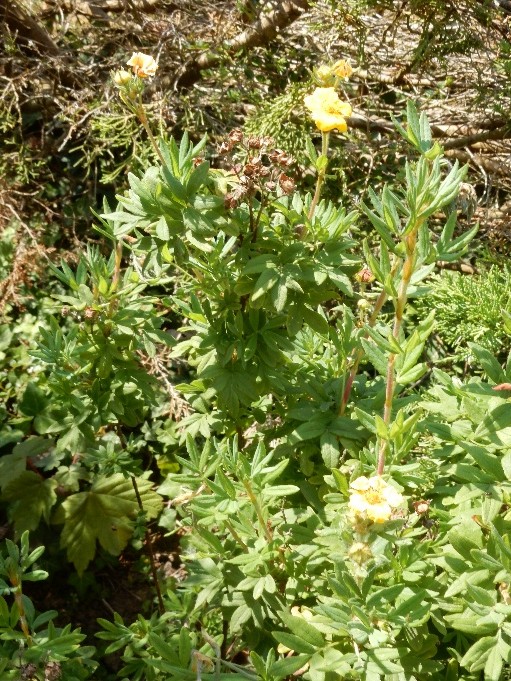
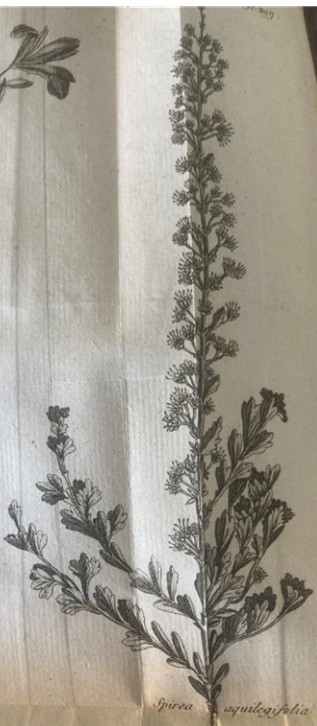
Les données apportées par Ermakov et al. (2006) sont plus conséquentes, elles sont synthétisées dans les colonnes 13 à 25 du tableau 1. La colonne 15 (14 relevés) correspond à l’Atraphaxio pungentis–Artemisietum rutifoliae [‘Atraphaxido…’, art. 41b] des auteurs. Les colonnes 16 à 21 (53 relevés) correspondent à des communautés non séparées des steppes plus basses : Spiraeo mediae-Caraganetum pygmaeae ass. nov. hoc loco, typus nominis hoc loco : composante arbustive du relevé 35 du tableau 1 in Ermakov et al. (2006, Phytocoenologia 36 (4) : 517-520). La colonne 22 est plutôt le Rubio cordifoliae-Spiraeetum hypericifoliae ass. nov. hoc loco, typus nominis hoc loco : composante arbustive du relevé 21 du tableau 4 in Korolyuk (2017, Vegetation of Russia 31 : 18-21), illustré par la photo 9 du même article (p. 22). Ces trois associations sont rapprochées dans l’Artemision rutifoliae Ermakov, Chytrý & Valachovič 2006 (Phytocoenologia 36 (4) : 515), si le taxon éponyme peut être considéré comme un nanophanérophyte (Flora of China indique « Subschrubs or schrubs, caespitose, 20-80 cm tall… »).
Le large ensemble formé des colonnes 23 à 45 est caractérisé par le GS à Spiraea chamaedryfolia. La colonne 21 (10 relevés) décrit le Grossulario acicularis-Spiraeetum trilobatae Ermakov, Chytrý & Valachovič 2006, muté en Ribeso acicularis-Spiraeetum trilobatae Ermakov, Chytrý & Valachovič 2006 nom. mut. hoc loco. La colonne 24 (8 relevés) est le Rhododendro daurici-Caraganetum arborescentis ass. nov. hoc loco, typus nominis hoc loco : composante arbustive du relevé 104 du tableau 1 in Ermakov et al. (2006, Phytocoenologia 36 (4) : 517-520). La colonne 25, bien que connue par seulement quatre relevés, est originale par Sambucus sibirica et Humulus lupulus, rappelant ainsi l’Humulo lupuli-Sambucetum nigrae B. Foucault 1991 ouest-européen, on propose d’en faire l’Humulo lupuli-Sambucetum sibiricae ass. nov. hoc loco, typus nominis hoc loco : composante arbustive du relevé 54 du tableau 1 in Ermakov et al. (2006, Phytocoenologia 36 (4) : 517-520). Les colonnes 26 et 27, empruntées à Ermakov (1995), peuvent être interprétées comme deux variations d’un unique Cotoneastro laxiflori-Caraganetum arborescentis ass. nov. hoc loco, typus nominis hoc loco : composante arbustive du relevé 40 du tableau 2 in Ermakov (1995, Colloq. Phytosoc. XXIII : 274-276). Les colonnes 28 et 29 (54 relevés) se rattachent au Roso cinnamomeae-Caraganetum arborescentis ass. nov. hoc loco, typus nominis hoc loco : composante arbustive du relevé 7 du tableau 1 in Lashchinskiy & Lashchinskaya (2012, Veg. Russia 21 : 82-83, en changeant Rosa majalis en R. cinnamomea). Les colonnes 30 et 31 (20 relevés) décrivent un fourré plus hygrophile (Viburnum opulus, Salix cinerea, Ribes nigrum, parfois Humulus lupulus, Frangula alnus), le Ribeso nigri-Caraganetum arborescentis ass. nov. hoc loco, typus nominis hoc loco : composante arbustive du relevé 20 du tableau 3 in Lashchinskiy & Lashchinskaya (2012, Veg. Russia 21 : 89-91). Les colonnes 33 à 35 sont dues à Hilbig & Knapp (1983) : la 33 est le Ribeso petraei-Berberidetum sibiricae ass. nov. hoc loco, typus nominis hoc loco : composante arbustive (Strauchschicht) du relevé 8 du tableau 2 in Hilbig & Knapp (1983, Flora 174 : 14, en remplaçant Ribes altissimum par R. petraeum), la 34 est le Clematido sibiricae-Rosetum acicularis ass. nov. hoc loco, typus nominis hoc loco : composante arbustive (Strauchschicht) du relevé 19 du tableau 3 in Hilbig & Knapp (1983, Flora 174 : 16-21, en remplaçant Atragene sibirica par Clematis alpina subsp. sibirica), présentant une variation notable à Rhododendron dauricum ; avec Ribes diacantha et Rhamnus erythroxylum (photos 7 et 8), la 35 est le Ribeso diacanthae-Spiraeetum hypericifoliae ass. nov. hoc loco, typus nominis hoc loco : composante arbustive (Strauchschicht) du relevé 1 du tableau 7 in Hilbig & Knapp (1983, Flora 174 : 38-39, en remplaçant Spiraea aquilegifolia par S. hypericifolia subsp. h.). La colonne 36 est le Ribeso hispiduli-Loniceretum altaicae ass. nov. hoc loco, typus nominis hoc loco : composante arbustive (s1) du relevé 31 du tableau 7 in Ermakov & Polyakova (2022, Turczaninowia 25 (2) : 9-13).
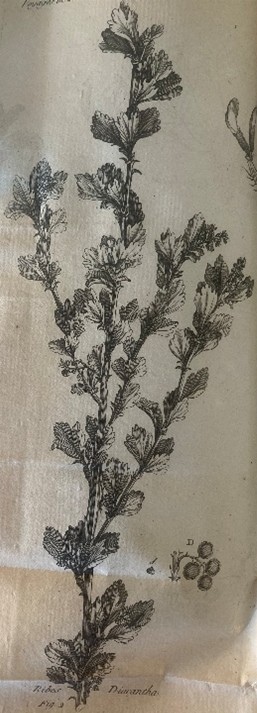
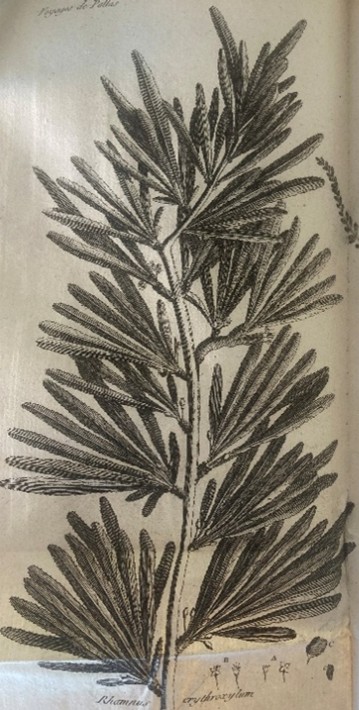
Les colonnes 39 à 45 le sont à partir des données de Ermakov (2003) :
– les colonnes 39 à 41 peuvent être rattachées à un groupement à Spiraea chamaedryfolia-Lonicera caerulea subsp. altaica qui ne peut toutefois être validé faute de relevé adéquat ;
– les colonnes 43 à 45 forment le Rubo idaei-Loniceretum altaicae ass. nov. hoc loco, typus nominis hoc loco : composante arbustive du relevé 38 publié in Ermakov (2003, Ann. Bot., n. s., III : 28).
Caractérisé par Caragana arborescens (Fabaceae), Rhododendron dauricum, Spiraea chamaedryfolia, S. trilobata…, l’ensemble 23-45 correspond à une troisième alliance, le Grossulario acicularis-Berberidion sibiricae Ermakov, Chytrý & Valachovič 2006 (Phytocoenologia 36 (4) : 525), muté en Ribeso acicularis-Berberidion sibiricae Ermakov, Chytrý & Valachovič 2006 nom. mut. hoc loco, typifiée par le Ribeso acicularis-Spiraeetum trilobatae Ermakov, Chytrý & Valachovič 2006 (Phytocoenologia 36 (4) : 526), colonne 21 du tableau 1 hoc loco. Il faudra peut-être en séparer à l’avenir l’ensemble 39-45 surtout caractérisé par Lonicera caerulea subsp. altaica.
Ces alliances se placeraient dans les « Artemisio santolinifoliae-Berberidetalia sibiricae Ermakov, Chytrý & Valachovič 2006 » (Phytocoenologia 36 (4) : 514) ; si on adopte une position plus moderne, on peut y substituer les Berberido sibiricae-Caraganetalia pygmaeae ord. nov. hoc loco, caractérisés par Berberis sibirica (photo 9), Caragana pygmaea et quelques taxons communs à deux alliances sur les trois connues (Spiraea media, Cotoneaster laxiflorus), typus nominis hoc loco : le Ribeso acicularis-Berberidion sibiricae Ermakov, Chytrý & Valachovič 2006 (Phytocoenologia 36 (4) : 525).
Achevons la présentation de ces fourrés sibéro-mongols en remarquant la bonne représentation du genre arbustif asiatique Caragana, riche globalement de cent cinq espèces, que Pallas rattachait aux Robinia, genre aujourd’hui réduit à seulement quatre espèces américaines (photo 10).
En lien avec l’Abieti sibiricae-Piceetum obovatae du nord de la Sibérie, on note plutôt le fourré suivant (d’après Degteva, 2001, tableaux 5 à 7, sur 135 relevés) : Rosa acicularis IV, Sorbus aucuparia *a. j IV, Lonicera caerulea *pallasii III, Daphne mezereum II, Juniperus communis *c. II, Rubus idaeus s. l. II, Ribes nigrum I, Rosa cinnamomea I, Clematis alpina *sibirica I et des taxons de présence + et r : Lonicero pallasii-Rosetum acicularis ass. nov. hoc loco, typus nominis hoc loco : composante arbustive du relevé 54 du tableau 6 in Degteva (2001, Veg. Russia 2 : 19-24), association que l’on retrouve aussi chez Likhanova et al. (2023, tableau 2 : relevés 1 à 8).
Il existe par ailleurs une classe de fourrés subalpins vicariante des Betulo pubescentis-Alnetea alnobetulae Rejmánek in Huml et al. 1979, les Betuletea rotundifoliae (Mirkin et al. 1983) Mirkin et al. 1986, le taxon éponyme se partageant selon POWO en B. divaricata Ledeb. (pour B. r. Regel & Tiling) et B. glandulosa Michx. (pour B. r. Spach), tous les deux présents en Mongolie. Dans ces conditions, il est difficile d’actualiser cette classe, caractérisée aussi par Lonicera caerulea subsp. altaica, Dasiphora fruticosa, Salix divaricata, Spiraea alpina. D’après Hilbig & Knapp (1983, tableau 1), on peut définir dans cette classe le Lonicero altaicae-Rosetum acicularis ass. nov. hoc loco, typus nominis hoc loco : composante arbustive (Strauchschicht) du relevé 3 du tableau 1 in Hilbig & Knapp (1983, Flora 174 : 12). De son côté, en lien avec un boisement de Larix sibirica, Telyatnikov (2013, tableau 5 : colonnes 1 à 4) décrit le fourré suivant (sur 4 relevés) : Lonicera caerulea *altaica 4, Spiraea media 3, Betula divaricata / glandulosa 1, B. humilis 1, Clematis alpina *sibirica 1, Rosa acicularis 1, décrivant le Spiraeo mediae-Loniceretum altaicae ass. nov. hoc loco, typus nominis hoc loco : composante arbustive du relevé 1 du tableau 5 in Telyatnikov (2013, Turczaninowia 16 (3) : 146-148). Dans le même ordre d’idées, ajoutons que Zibzeev et al. (2018, tableaux 3 et 4) décrivent des fourrés à Betula rotundifolia s. l., Caragana jubata, Spiraea alpina, Juniperus pseudosibirica.
Dans son tableau II, Guinochet (1982) décrit un vicariant de l’Alnetum alnobetulae Braun-Blanq. ex Beger 1922 centre-européen, le Betulo-Alnetum fruticosae Guin. 1982 (Doc. Phytosoc., n. s., VI : 297) nom. inval., validé ici comme Clematido sibiricae-Alnetum fruticosae Guin. ex ass. nov. hoc loco, typus nominis hoc loco : relevé 2 du tableau II in Guinochet (1982, Doc. Phytosoc., n. s., VI hors texte, en remplaçant Alnus viridis var. sibirica par A. alnobetula subsp. fruticosa). Comme l’association centre-européenne lors de sa création, ce Clematido-Alnetum était initialement placé dans une classe de mégaphorbiaies, mais actuellement on sépare celles-ci dans une classe herbacée (cf. infra, § 7).
Du tableau 1 de la publication de Zibzeev & Nedovesova (2014), associé au Vaccinio uliginosi-Dryadetum oxyodontae des auteurs, on peut retirer le fourré suivant (sur 26 relevés) : Rhododendron aureum V, Betula divaricata / glandulosa V, Pinus sibirica j V, Salix glauca III, que l’on peut dénommer Salici glaucae-Rhododendretum aurei ass. nov. hoc loco, typus nominis hoc loco : composante arbustive (s1) du relevé 1 du tableau 1 in Zibzeev & Nedovesova (2014, Turczaninowia 17 (3) : 43-44).
On peut rapprocher de telles végétations des saulaies arbustives arctiques relevées par Lavrinenko & Kochergina (2022, Europe du Nord-Est), Sekretareva (2001, 2003), Likhanova et al. (2023) et Neshataeva et al. (2025, au Kamchatka) ; Sekretareva en a dénommées certaines de manière invalide (notamment parce qu’il utilisa trois taxons éponymes, au lieu d’un maximum de deux). Elles sont reprises dans le tableau 2 et on peut y définir un premier ensemble réunissant les colonnes 1 à 8 :
- en colonne 1, le Dasiphoro fruticosae-Salicetum alaxensis ass. nov. hoc loco, typus nominis hoc loco: composante arbustive du relevé 6 du tableau in Sekretareva (2001, Russia 1 : 38-40, en remplaçant Pentaphylloides fruticosa par Dasiphora f.) ;
- en colonne 3, le Dasiphoro fruticosae-Salicetum richardsonii ass. nov. hoc loco, typus nominis hoc loco: composante arbustive du relevé 12 du tableau in Sekretareva (2001, Russia 1 : 38-40, en remplaçant Pentaphylloides fruticosa par Dasiphora f.) ;
- en colonne 4, le Betulo glandulosae–Salicetum richardsonii ass. nov. hoc loco, typus nominis hoc loco: composante arbustive du relevé 3 du tableau 1 in Sekretareva (2003, Russia 5 : 44-45, en remplaçant Betula exilis par B. glandulosa) ;
- en colonnes 5 et 6, le Salicetum pulchro-krylovii ass. nov. hoc loco, typus nominis hoc loco: composante arbustive du relevé 22 du tableau in Sekretareva (2001, Russia 1 : 38-40) ;
- en colonne 7, le Betulo divaricatae-Salicetum krylovii ass. nov. hoc loco, typus nominis hoc loco: composante arbustive du relevé 7 du tableau 3 in Neshataeva et al. (2005, Russia 50 : 127-128, en remplaçant Betula middendorffii par B. divaricata) ;
- en colonne 8, le Betulo divaricatae-Salicetum pulchrae ass. nov. hoc loco, typus nominis hoc loco: composante arbustive du relevé 18 du tableau 1 in Neshataeva et al. (2005, Russia 50 : 113-116, en remplaçant Betula middendorffii par B. divaricata).
On peut considérer que cette végétation se rattache à une alliance caractérisée par Salix hastata, S. saxatilis, S. lanata subsp. richardsonii, S. pulchra, S. krylovii, Betula glandulosa, Spiraea betulifolia var. aemiliana, Dasiphora fruticosa, le Dasiphoro fruticosae-Salicion krylovii all. nov. hoc loco, typus nominis hoc loco : le Salicetum pulchro-krylovii nov.
Le deuxième ensemble est formé par les colonnes 9 à 14 (la 15 réduite à Salix gmelinii) :
- les colonnes 9 à 13 constituent le Salicetum glauco-lanatae ass. nov. hoc loco, typus nominis hoc loco: composante arbustive du relevé 19 du tableau 5 in Lavrinenko & Kochergina (2022, Russia 44 : 125-127) ;
- la colonne 14 forme le Salicetum lanato-viminalis ass. nov. hoc loco, typus nominis hoc loco: composante arbustive du relevé 29 du tableau 2 in Lavrinenko & Kochergina (2022, Russia 44 : 106-109).
Lui aussi a la valeur d’une alliance, surtout caractérisée par Salix lanata et S. phylicifolia, le Salicion phylicifolio-lanatae all. nov. hoc loco, typus nominis hoc loco : le Salicetum glauco-lanatae nov. Le Salicetum lanato-viminalis se place mieux ici que dans les Salicetalia purpureae Moor 1958 auxquels les rattachent Lavrinenko & Kochergina (2022), ordre seulement rappelé ici par le second taxon éponyme d’association. Au voisinage du Salicetum glauco-lanatae, chez Lavrinenko & Kochergina (2022, tableaux 1 : relevés 18 à 43, et 2 : relevés 1 à 18), on perçoit aussi une microphorbiaie à Chrysosplenium serreanum (V sur 44 relevés), Viola epipsila (III), V. biflora (III), Myosotis scorpioides (III), que l’on peut isoler comme Violo biflorae-Chrysosplenietum serreani ass. nov. hoc loco, typus nominis hoc loco : composante à plantes basses du relevé 21 in Lavrinenko & Kochergina (2022, Veg. Russia 44 : 100-103).
Enfin, l’ensemble 16 et 17 décrit des saulaies à Salix myrsinifolia. Ainsi la colonne 17 forme le Salicetum viminali-myrsinifoliae ass. nov. hoc loco, typus nominis hoc loco : composante arbustive (B) du relevé 9 in Likhanova et al. (2023, Turczaninowia 26 (1) hors texte). Cette association peut être le typus nominis hoc loco du Salicion pentandro-myrsinifoliae all. nov. hoc loco, alliance caractérisée par Salix myrsinifolia, S. pentandra, S. phylicifolia, S. pyrolifolia et des taxons transgressant des Salicetea purpureae (S. viminalis, S. triandra).
4. La végétation des steppes vivaces
Le tableau 3 synthétise en cinquante-quatre colonnes la végétation steppique issue des inventaires publiés notamment par Guinochet (1982), Karamysheva & Khramtsov (1995), Ermakov (1995), Ermakov et al. (2006)… Des données de Degteva (2001), on n’a pu utiliser que celles du tableau 8 car celles des tableaux 5 et 6 montrent des relevés certainement floristiquement hétérogènes (mélange de flore eutrophile et de flore oligotrophile). Ce large tableau montre déjà que cette végétation est caractérisée par six genres bien représentés : Artemisia (32 taxons cités), Allium (15), Oxytropis (15), Astragalus (14), Stipa (12) et Pulsatilla (7), ce qui correspond bien à l’image des steppes d’autres régions phytogéographiques de l’hémisphère nord, comme par exemple celles du Changthang tibétain (Dodinet et al., 2020), la puszta hongroise (Stipa capillata, S. lessingiana, S. pennata, Astragalus albicaulis, A. exscapus… ; Polunin & Walters, 1985), les pelouses intra-alpines (Stipa capillata, S. pennata, Astragalus vesicarius, A. onobrychis, Artemisia campestris, A. alba… ; Braun-Blanquet, 1961).
Dans ce tableau, deux césures majeures passent entre les colonnes 6 et 7, puis 40 et 41.
L’ensemble formé par les colonnes 1 à 30 est donc consacré aux données de Guinochet (1982), Hilbig & Knapp (1983), Chytrý et al. (1993) et Karamysheva & Khramtsov (1995) sur plusieurs sites de Sibérie méridionale et de Mongolie proprement dite.
Statistiquement trop mal définies (seulement deux relevés dans chacune d’elles), les colonnes 1 et 2 partagent Ranunculus pedatifidus, Sabulina verna, Thalictrum alpinum, Festuca kryloviana, Artemisia borealis (photo 11), au-dessus de 2 300 m d’altitude, végétation rappelant celle des Carici myosuroidis-Seslerietea caeruleae des montagnes d’Europe. Si on en rapproche les colonnes 3 à 6 (Rhytidio rugosi-Oxytropidetum alpinae Telyatnikov 2013 en 3 et 4, Carici rupestris-Festucetum krylovianae Korolyuk & Namzalov 1994 en 5, Poo attenuatae-Festucetum tschujensis Korolyuk & Namzalov 1994 en 6), on peut définir un ensemble assez bien structuré, qui se partage pourtant sur deux classes distinctes selon les auteurs russes, Carici rupestris-Kobresietea myosuroidis Ohba 1974 (et Kobresion myosuroidis Mirkin et al. 1983) pour la première, Cleistogenetea squarrosae Mirkin et al. ex Korotkov et al. 1991 (et Festucion tschujensis Korolyuk & Namzalov 1994) pour les deux autres ; il y a là un problème de synsystématique à revoir.
Mieux définies sont les colonnes 7 à 22 qui forment un ensemble hautement caractérisé par le GS à Stipa krylovii. La colonne 7 (10 relevés) peut être interprétée comme Helictochloo hookeri-Caricetum pediformis ass. nov. hoc loco, notamment caractérisée par Coluria geoides (Rosaceae, photo 12), typus nominis hoc loco : composante herbacée et chaméphytique du relevé 3 du tableau III in Karamysheva & Khramtsov (1995, Braun-Blanquetia 17 : 47-49), en remplaçant Helictotrichon schellianum par Helictochloa hookeri. Avec huit relevés, Pedicularis striata (photo 13) et Oxytropis myriophylla (photo 14), la colonne 9 décrit le Rhapontico uniflori-Oxytropidetum myriophyllae ass. nov. hoc loco, typus nominis hoc loco : composante cryptophyto-chaméphytique du relevé 3 du tableau IV in Karamysheva & Khramtsov (1995, Braun-Blanquetia 17 : 50-52), en remplaçant Leuzea uniflora par Rhaponticum u. (cité et illustré de Corée du Sud dans ma publication de 2023, photo 34, sub Stemmacantha u.). Du tableau V des auteurs, on a isolé en colonne 13 le relevé 2 effectué à plus de 2 100 m, alors que les six autres de ce même tableau sont localisés à moins de 1 450 m, mais on ne les fixera pas ici comme association. La colonne 14 est définie comme Ferulopsio hystricis-Potentilletum sericeae ass. nov. hoc loco, typus nominis hoc loco : composante cryptophyto-chaméphytique du relevé 4 du tableau VI in Karamysheva & Khramtsov (1995, Braun-Blanquetia 17 : 56-57), en remplaçant Peucedanum histrix par Ferulopsis h. La colonne 15 est l’Androsaco incanae-Potentilletum sericeae ass. nov. hoc loco, typus nominis hoc loco : composante cryptophyto-chaméphytique du relevé 6 du tableau VII in Karamysheva & Khramtsov (1995, Braun-Blanquetia 17 : 58-59). Laissant de côté les colonnes 16 à 18 pour insuffisance statistique, la colonne 19 est le Stipo grandis-Cleistogenetum squarrosae ass. nov. hoc loco, typus nominis hoc loco : composante herbacée et chaméphytique du relevé 4 du tableau X in Karamysheva & Khramtsov (1995, Braun-Blanquetia 17 : 63-64). La colonne 20 est l’Artemisio adamsii-Stipetum krylovii Hilbig & Knapp ex ass. nov. hoc loco [syn. : Artemisia adamsii-Stipa krylovii-Steppe Hilbig & Knapp 1983 (Flora 174 : 32) nom. inval. (art. 3c)], typus nominis hoc loco : relevé 5 du tableau 6 in Hilbig & Knapp 1983 (Flora 174 : 32-37), la colonne 21 est le Ptilotricho canescentis-Artemisietum frigidae Hilbig & Knapp ex ass. nov. hoc loco [syn. : Ptilotrichum canescens-Ausbildung Hilbig & Knapp 1983 (Flora 174 : 33) nom. inval. (art. 3c)], typus nominis hoc loco : relevé 12 du tableau 6 in Hilbig & Knapp 1983 (Flora 174 : 32-37), la colonne 18 le Sileno repentis-Agropyretum cristati ass. nov. hoc loco, typus nominis hoc loco : composante cryptophyto-chaméphytique du relevé 4 du tableau 7 in Hilbig & Knapp 1983 (Flora 174 : 38-39), relié au Pruno padi-Ulmetum pumilae arborescent et au Ribeso diacanthae-Spiraeetum hypericifoliae arbustif. Tout cet ensemble de syntaxons 7 à 22 a la valeur d’une alliance fortement caractérisée par Carex korshinskyi, Stipa krylovii, S. baicalensis, S. grandis, Leymus chinensis, Cymbaria daurica (Orobanchaceae), Medicago ruthenica, Alyssum lenense, Allium bidentatum, A. anisopodium, Orostachys spinosa (Crassulaceae), O. malacophylla (photo 15), Klasea centauroides, Silene jeniseensis, Koenigia angustifolia, Amblynotus rupestris (Boraginaceae ; photo 16), Astragalus laxmannii subsp. l., A. melilotoides (photo 17), Saposhnikovia divaricata (Apiaceae), Stellera chamaejasme (Thymelaeaceae), Pedicularis gr. flava (photo 18), P. striata, Saussurea salicifolia, Haplophyllum dauricum (Rutaceae)… semblant correspondre au Stipion krylovii Kononov, Gogoleva & Mironova 1985 selon Hilbig (2000), mais je n’ai pu vérifier cette attribution, qui reste donc hypothétique. Korolyuk (2017) y cite encore les Cymbario dahuricae-Stipetum krylovii Hilbig 1990 et Cleistogeno squarrosae-Festucetum dahuricae Dulepova & Koroyuk 2015 absents du tableau 2. Cette alliance pourrait être trop large et une subdivision sera sans doute inévitable, il faudra donc placer l’holotype du Stipion krylovii dans ce tableau 2 pour préciser à quel syntaxon s’applique ce nom.
Dans l’ensemble 23 à 25 décrit par Chytrý et al. (1993), caractérisé par le GS à Thymus baicalensis, la colonne 23 est un groupement provisoire à Delphinium grandiflorum, la colonne 24 le Potentillo acaulis-Thymetum baicalensis Chytrý, Pešout & Anenchonov 1993, la colonne 25 le Saxifrago bronchialis-Phlojodicarpetum baicalensis Chytrý, Pešout & Anenchonov 1993. Cet ensemble paraît avoir la valeur d’une alliance distincte du Stipion krylovii, le Poo versicoloris-Thymion baicalensis all. nov. hoc loco, caractérisée par Thymus baicalensis, Poa versicolor, Allium splendens, Pulsatilla patens subsp. flavescens, Oreomecon nudicaulis, Phlojodicarpus sibirica (Apiaceae)…, partageant avec le Stipion krylovii le GS à Carex korshinskyi, typus nominis hoc loco : le Potentillo acaulis-Thymetum baicalensis Chytrý, Pešout & Anenchonov 1993 (Folia Geobot. Phytotax. 28 : 377).
Dans l’ensemble 26 à 30 décrit par Guinochet (1982) et caractérisé par le GS à Potentilla tergemina, les colonnes 26 à 28 correspondent au Veronico spicatae-Agrostietum trinii Guin. 1982 (Doc. Phytosoc., n. s., VI : 299) nom. inval., les colonnes 29 et 30 à l’Oxytropido–Aneurolepidietum pseudoagropyri Guin. 1982 nom. inval. (Doc. Phytosoc., n. s., VI : 299), validées ici respectivement en Veronico incanae-Festucetum lenensis Guin. ex ass. nov. hoc loco, typus nominis hoc loco : relevé 2 du tableau IV in Guinochet (1982, Doc. Phytosoc., n. s., VI hors texte), et Oxytropido grandiflorae-Caricetum duriusculae Guin. ex ass. nov. hoc loco, typus nominis hoc loco : relevé 5 du tableau IV in Guinochet (1982, Doc. Phytosoc., n. s., VI hors texte), le second taxon éponyme étant changé dans les deux cas pour tenir compte de la dominance (ICPN, art. 3k, 10b). Guinochet rattachait ces deux syntaxons à l’Agrostio trinii-Poion botryoidis Guin. 1982 (Doc. Phytosoc., n. s., VI : 299) nom. inval., repris ici comme Agrostio vinealis-Poion attenuatae Guin. ex all. nov. hoc loco, alliance caractérisée surtout par Agrostis vinealis, Potentilla tergemina, P. longifolia, Taraxacum collinum, typus nominis hoc loco : le Veronico incanae-Festucetum lenensis Guin. ex nov.
L’ensemble 31 à 40 est caractérisé par le GS à Stipa glareosa. Le syntaxon 31 forme une transition avec le Stipion krylovii. Le syntaxon 32 peut être interprété comme Stipo sareptanae-Agropyretum cristati ass. nov. hoc loco, typus nominis hoc loco : composante cryptophyto-chaméphytique du relevé 6 du tableau XII in Karamysheva & Khramtsov (1995, Braun-Blanquetia 17 : 67-68). Selon Hilbig et al. (1999), le syntaxon 35 est l’Artemisio pectinatae-Nanophytetum erinacei Hilbig 1990, le syntaxon 36 est le Nanophyto erinacei-Stipetum krylovii Hilbig 1990, le syntaxon 37 est une steppe à Stipa krylovii-Cleistogenes squarrosa floristiquement mal définie malgré ses 73 relevés, le syntaxon 38 est l’« Artemisio pectinatae–Vincetoxicetum sibirici Hilbig 1990 », le second taxon éponyme, grimpant, aujourd’hui nommé Cynanchum thesioides, est plutôt associé aux arbustes et placé dans le tableau 1. Le syntaxon 39 est l’Hedysaro fruticosi-Stipetum krylovii (autorité non précisée par Hilbig et al., 1999), caractérisé par Corethrodendron fruticosum, nom actuel du premier taxon éponyme (photo 19). Enfin, le syntaxon 40 est la composante cryptophyto-chaméphytique du Caragano bungei-Spiraeetum hypericifoliae Hilbig 1995 qu’on ne peut valider ici en tant que steppe.
Globalement, cet ensemble a la valeur d’une alliance caractérisée par Stipa glareosa, S. tianschanica (= S. gobica), Krascheninikovia ceratoides (Amaranthaceae), Aster hispidus, Allium mongolicum, A. polyrhizum, Iris tenuifolia, Artemisia caespitosa, A. pectinata (photo 20), Oxytropis aciphylla, Astragalus laguroides (photo 21), Lipschitzia divaricata (Asteraceae), Lagochilus ilicifolius (Lamiaceae), Cleistogenes songarica (Poaceae), Reaumuria songarica (Tamaricaceae), qui semble bien correspondre à l’Allion polyrhizi Hilbig 2000 (sub A. polyrrhizi).
Les quatre alliances du Stipion krylovii, du Poo versicoloris-Thymion baicalensis, de l’Agrostio vinealis-Poion attenuatae et de l’Allion polyrhizi partagent significativement le GS à Agropyron cristatum et devraient donc intégrer un même ordre, celui des Carici duriusculae-Agropyretalia cristati Guin.1982 (Doc. Phytosoc., n. s., VI : 299) nom. inval., et une même classe, celle des Potentillo-Artemisietea Guin. 1982 (Doc. Phytosoc., n. s., VI : 299) nom. inval. Cependant, pour deux d’entre elles, Hilbig (2000) propose le système hiérarchique suivant :
Cleistogenetea squarrosae Mirkin et al. ex Korotkov et al. 1991 [syn. : Agropyretea cristati Hilbing & Koroljuk 2000 nom. illeg.]
Stipetalia krylovii Kononov, Gogoleva & Mironova 1985
Stipion krylovii Kononov, Gogoleva & Mironova 1985
Helictotrichetalia schelliani Hilbig 2000
Helictotrichion schelliani Hilbig 2000
Stipetea glareoso-gobicae Hilbig 2000 [… glareosae-…, art. 41b]
Allietalia polyrrhizi Hilbig 2000
Allion polyrrhizi Hilbig 2000
Caraganion leucophloeae Hilbig 2000
Reaumurio songaricae-Salsoletalia passerinae (Mirkin in Kasapov et al. 1998) Mirkin et al. 1988
Reaumurio songaricae-Salsolion passerinae (Kasapov et al. 1998) Mirkin et al. 1988
Zygophyllo xanthoxyli-Brachanthemetalia gobici (Mirkin in Kasapov et al. 1998) Mirkin et al. 1988
Zygophyllo xanthoxyli-Brachanthemion gobici (Mirkin in Kasapov et al. 1998) Mirkin et al. 1988
où Stipion krylovii et Allion polyrhizi sont séparés dans des unités supérieures bien distinctes. Pour elles uniquement on peut substituer à ce schéma le suivant basé sur les priorités nomenclaturales
Cleistogenetea squarrosae Mirkin et al. ex Korotkov et al. 1991
Stipetalia krylovii Kononov, Gogoleva & Mironova 1985
Stipion krylovii Kononov, Gogoleva & Mironova 1985
Poo versicoloris-Thymion baicalensis nov.
Agrostio vinealis-Poion attenuatae Guin. ex nov.
Allion polyrhizi Hilbig 2000
les autres unités citées restant à placer.
Les colonnes 41 à 54 rassemblent les données de Ermakov (1995) et Ermakov et al. (2006), deux sous-ensembles s’y séparent assez bien. Les syntaxons 41 à 46 sont caractérisés par le GS à Artemisia stechmanniana et se séparent ainsi :
- les colonnes 41 à 43 correspondent à des variations de l’« Atraphaxo pungentis-Artemisietum rutifoliae» déjà rencontré plus haut dans le § La végétation arbustive ; il faut renommer l’association basse : Panzerino canescentis-Vicietum costatae ass. nov. hoc loco, typus nominis hoc loco : composante cryptophyto-chaméphytique du relevé 11 du tableau 1 in Ermakov et al. (2006, Phytocoenologia 36 (4) : 517-520) ;
- la colonne 46 est le l’Elytrigio geniculatae-Artemisetum santolinifoliae des auteurs, muté ici comme Pseudoroegnerio geniculatae–Artemisietum stechmannianae mut. hoc loco.
Cet ensemble de six syntaxons correspond à une alliance originale, le Vicio costatae-Artemision stechmannianae all. nov. hoc loco, caractérisée par Artemisia stechmanniana, A. rutifolia, A. obtusiloba, A. dracunculus subsp. d., Vicia costata, Achnatherum sibiricum, Panzerina canescens (Lamiaceae), Scutellaria grandiflora, Euphorbia tshuiensis, typus nominis hoc loco : Pseudoroegnerio geniculatae–Artemisietum stechmannianae Ermakov, Chytrý & Valachovič 2006 (Phytocoenologia 36 (4) : 514, sub Elytrigio geniculatae-Artemisetum santolinifoliae).
Les colonnes 47 et 48 sont différenciées plutôt négativement et interprétées par les auteurs comme végétation arbustive. On peut au moins distinguer la colonne 48 (10 relevés) comme Thalictro foetidi-Galietum paniculati ass. nov. hoc loco, typus nominis hoc loco : composante cryptophyto-chaméphytique du relevé 44 du tableau 1 in Ermakov et al. (2006, Phytocoenologia 36 (4) : 517-520).
Les colonnes 49 à 53 sont caractérisées par le GS à Kitagawia baicalensis, la 49 étant le Kitagawio baicalensis-Sedetum hybridi Ermakov, Chytrý & Valachovič 2006, muté en Kitagawio baicalensis-Phedimetum hybridi Ermakov, Chytrý & Valachovič 2006 nom. mut. hoc loco, la 50 le Spiraeo trilobatae-Phedimetum hybridi Ermakov, Chytrý & Valachovič 2006 nom. mut. hoc loco, la 51 le Galio coriacei-Selaginelletum sanguinolentae Ermakov, Chytrý & Valachovič 2006, les 52 et 53 restant comme communautés non définies. Les deux premières sont rattachées au Phedimion hybridi Ermakov, Chytrý & Valachovič 2006 nom. mut. hoc loco, la troisième à l’Eritrichio pectinati–Selaginellion sanguinolentae Ermakov, Chytrý & Valachovič 2006, avec Hylotelephium populifolium (photo 22), sans doute à inclure dans le Selaginellion sanguinolentae Hilbig 2000 où sont placées les deux communautés indéfinies, le tout réparti dans deux classes distinctes par ces mêmes auteurs, alors que le tableau 2 hoc loco révèle une véritable proximité synsystématique. Korolyuk (2017) décrit une autre association à Selaginella sanguinolenta, le Selaginelletum rupestri-sanguinolentae (‘… rupestris-…’, art. 41b) non reprise ici.
La colonne 54 est véritablement originale, avec vingt-huit taxons qui lui sont inféodés en propre. Ermakov (1995) la décrit comme « Anemono sylvestris-Laricetum sibiricae », sa composante herbacée pouvant alors redéfinie comme Carici amgunensis-Anemonetum sylvestris ass. nov. hoc loco, typus nominis hoc loco : composante herbacée du relevé du tableau 2 in Ermakov (1995, Colloq. Phytosoc. XXIII : 274-276), reliée au Cotoneastro laxiflori-Caraganetum arborescentis définie supra (§ La végétation arbustive). Cette belle association est sans doute à rattacher à une alliance encore non définie.
5. La végétation thérophytique des steppes
Il existe parfois des thérophytes au sein des steppes vivaces, dont le tableau 4 synthétise quelques données issues des inventaires publiés de Guinochet (1982), Hilbig & Knapp (1983), Karamysheva & Khramtsov (1995), Hilbig et al. (1999)… Les plus significatives sont représentées par les colonnes 3 à 19 de ce tableau, surtout les 3 à 17 (249 relevés) : Chamaerhodo erectae-Dontostemonetum integrifolii ass. nov. hoc loco, typus nominis hoc loco : composante thérophytique du relevé 5 du tableau VIII in Karamysheva & Khramtsov (1995, Braun-Blanquetia 17 : 60-61). Les colonnes 18 et 19 sont fort originales : Androsacetum septentrionali-gmelinii ass. nov. hoc loco pour la 18, typifié (typus nominis hoc loco) par ce relevé.
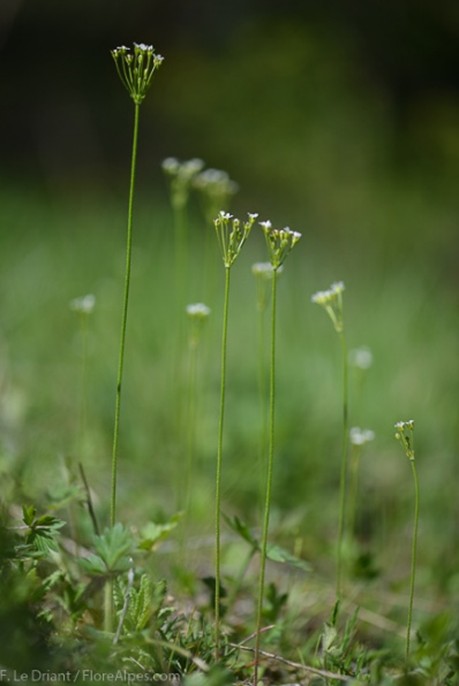
Parmi ces thérophytes, on peut mettre en exergue Androsace septentrionalis (photo 23), vu dans des habitats comparables dans le Ladakh (nord-ouest de l’Inde), mais dans des combinaisons floristiques différentes, avec Lignariella hobsonii (Brassicaceae, aujourd’hui Aphragmus hobsonii), Elsholtzia eriostachya (Lamiaceae), Ianhedgea minutiflora (Brassicaceae), Polygonum paronychioides, Koelpinia linearis (Asteraceae) (Dodinet et al., 2020).
Les colonnes 20 à 29 sont caractérisées par le GS à Salsola tragus, avec une part très significative de représentants de la famille des Amaranthaceae. Les colonnes 22 à 29 (212 relevés), extraites pour une grande partie de tableaux synthétiques, paraissent décrire une unique association, le Salsolo tragi-Chenopodietum acuminati ass. nov. hoc loco, typus nominis hoc loco : composante thérophytique du relevé 6 du tableau 3 in Hilbig et al. (1999, Feddes Repert. 110 (7-8) : 596). Cet ensemble de dix colonnes paraît avoir la valeur d’une alliance de tonsures thérophytiques plus ou moins halophiles du nord-ouest de la Mongolie caractérisées par Salsola tragus, Ceratocarpus arenarius, Teloxys aristata, Corispermum mongolicum, Chenopodium acuminatum, Artemisia macrocephala, A. palustris, Alyssum turkestanicum var. desertorum, Nepeta annua, le Ceratocarpo arenarii-Salsolion tragi all. nov. hoc loco, typus nominis hoc loco : le Salsolo tragi-Chenopodietum acuminati nov.
La colonne 30 est le Chenopodiastro hybridi-Axyrietum amaranthoidis ass. nov. hoc loco, typus nominis hoc loco : composante thérophytique du relevé 7 du tableau 7 in Hilbig & Knapp (1983, Flora 174 : 38-39).
On peut encore préciser qu’il existe des pelouses psammophiles continentales. Ainsi Dulepova (2016) puis Dulepova et Korolyuk (2021) étudient des communautés sur sable dans la région du lac Baïkal et les rangent dans les Brometea korotkyi Hilbig & Koroluyk 2000. Comme on pouvait s’y attendre, les thérophytes y sont rares et ont peu à voir avec nos communautés ouest-européennes : ce sont surtout des Corispermum (C. sibiricum, C. ulopterum ; ce dernier est illustré par Dulepova, 2016 : photo 6 en p. 57), Lappula anisacantha, L. redowskii, Salsola collina, Crepis tectorum, Androsace septentrionalis. On propose d’élargir le Corispermetum sibirici Gogoleva ex Taran 1995 cité par Dulepova & Korolyuk (2021), réduit initialement au taxon éponyme, à un groupement où apparaît significativement en plus Corispermum ulopterum (Dulepova, 2016, tableau 3 : relevés 6, 8 à 10, 16, 19, 41, 45 ; tableau 4 : relevés 26 à 29). Des relevés 6 à 27 (soit 22 relevés) du tableau 3 in Dulepova & Korolyuk (2015), on peut extraire l’association thérophytique suivante : Corispermum sibiricum V, Dontostemon integrifolius IV, Lappula anisacantha II, Chamaerhodos erecta r, que l’on peut valider comme Dontostemono integrifolii-Corispermetum sibirici ass. nov. hoc loco, typus nominis hoc loco : composante thérophytique du relevé 21 du tableau 3 in Dulepova & Korolyuk (2015, Veg. Russia 27 : 86-87). Le tableau 5 des mêmes auteurs montre encore un groupement à Corispermum macrocarpum, mais associé à nul autre thérophyte.
6. Quelques landes turficoles
Dans la publication de Ermakov & Polyakova (2022), les trois premiers syntaxons élémentaires de leur tableau 1 illustrent des landes turficoles à Ericaceae, probablement issues d’une tourbière à sphaignes initiale sous l’effet d’un assèchement édaphique. La colonne 2 du tableau 5 hoc loco est le Calamagrostio obtusatae-Rhododendretum tomentosi ass. nov. hoc loco, typus nominis hoc loco : composante cryptophyto-chaméphytique du relevé 32 du tableau 1 in Ermakov & Polyakova (2022, Turczaninowia 25 (2) : 9-13, en remplaçant Ledum palustre par Rhododendron tomentosum). La colonne 3 correspond à une lande un peu différente, accueillant des taxons hygrophiles des mégaphorbiaies, le Diplazio sibirici-Vaccinetum vitis-idaeae ass. nov. hoc loco, typus nominis hoc loco : composante cryptophyto-chaméphytique du relevé 40 du tableau 1 in Ermakov & Polyakova (2022, Turczaninowia 25 (2) : 9-13).
7. Les mégaphorbiaies et ourlets mésohygrophiles
Le tableau 6 synthétise trente-cinq colonnes ; pour les colonnes 1 à 3 et 6 à 13, Ermakov (2003) indique vers le bas de son tableau 1 Others species with high constancy values, donc les cortèges floristiques sont incomplets.
Les colonnes 1 à 3 relèvent du Cacalio hastatae-Aconition septentrionalis Ermakov 2003 (Ann. Bot.,
n. s., III : 25), incluant les Calamagrostio obtusatae-Aconitetum septentrionalis Ermakov 2003 (colonne 1 ; type de l’alliance), Aegopodio podagrariae-Cirsietum heterophylli Ermakov 2003 (colonne 2) et Athyrio filicis-feminae-Aconitetum septentrionalis Ermakov 2003 (colonne 3, ‘…filix-feminae-…’ art. 41b). Les colonnes 6 à 9 sont incluses dans le Triseto sibiricae-Aconition septentrionalis Ermakov 2003 (Ann. Bot.,
n. s., III : 27) nom. prov. inval., avec une unique association selon l’auteur, le Triseto sibiricae-Aconitetum septentrionalis Ermakov 2003 (Ann. Bot., n. s., III : 27) nom. prov. inval. Il semble que la colonne 7 puisse s’isoler de ce dernier, mais le syntaxon correspondant ne peut être validé ici.
Les deux colonnes intermédiaires 4 et 5 se séparent assez fortement de ces deux alliances, paraissant plutôt correspondre à des ourlets mésohygrophiles en nappe sous pinède ou mélézin partageant Viola mirabilis : la colonne 4 est l’Anemono caeruleae-Violetum mirabilis ass. nov. hoc loco, typus nominis hoc loco : relevé 30 du tableau 1 in Ermakov (1995, Colloq. Phytosoc. XXIII : 270-273) en changeant Anemonoides caerulea en Anemone c. ; la colonne 5 est encore plus fortement différenciée : Potentillo chrysanthae-Violetum mirabilis ass. nov. hoc loco, typus nominis hoc loco : relevé 16 du tableau 1 in Ermakov & Maltseva (1999, Ann. Bot. LVII : 67-69). On peut définir une alliance pour inclure ces deux associations, caractérisée par Viola mirabilis, Iris ruthenica, Polygonatum odoratum, Brachypodium pinnatum, Rubus saxatilis, Actaea cimicifuga, Agrimonia pilosa, Lathyrus pisiformis, Serratula coronata subsp. c., Fragaria vesca, Cypripedium macranthos, Filipendula ulmaria, Calamagrostis arundinacea, Trifolium lupinaster, Vicia unijuga, le Violo mirabilis-Actaeion cimicifugae all. nov. hoc loco, typus nominis hoc loco : le Potentillo chrysanthae-Violetum mirabilis nov.
Les colonnes 10 à 13, extraites de la publication de Ermakov (2003), sont caractérisées par le GS à Rhaponticum carthamoides et relèveraient selon cet auteur du Rhaponticion carthamoidis Zhitlukhina & Onishchenko 1987, ce sont en 10 le Cirsio heterophylli-Rhaponticetum carthamoidis Zhitlukhina 1988 et en 11 à 13 trois variations de l’« Abieti sibiricae-Athyrietum distentifolii Ermakov 2003 » (Abieteto…, art. 41b), qu’on peut reconsidérer comme Adenophoro lamarckii-Athyrietum distentifolii ass. nov. hoc loco, typus nominis hoc loco : composante cryptophytique du relevé N27 in Ermakov (2003, Ann. Bot., n. s., III : 28-29), avec un typicum en colonne 13 et un vaccinietosum myrtilli subass. nov. hoc loco (colonnes 11 et 12), sur substrat plus acide, différencié par le taxon éponyme, Cerastium lithospermifolium, Phegopteris connectilis, typus nominis hoc loco : composante cryptophyto-chaméphytique du relevé 38 in Ermakov (2003, Ann. Bot., n. s., III : 28).
Les colonnes 14 à 18 ont été extraites des publications de Hilbig & Knapp (1983, tableau 3), dans laquelle aucune association n’est définie, et Ermakov & Polyakova (2022, tableau 1 en partie). Alors que la colonne 14 combine des taxons hygro-eutrophiles et quelques taxons plus oligotophiles (Pyrola asarifolia, Vaccinium vitis-idaea), la colonne 15 peut être décrite comme Anemonastro criniti-Aconitetum barbati ass. nov. hoc loco, typus nominis hoc loco : composante cryptophyto-chaméphytique du relevé 13 du tableau 3 in Hilbig & Knapp (1983, Flora 174 : 16-21). La colonne 18 est hautement différenciée : Hedysaro neglecti-Saussureetum controversae ass. nov. hoc loco, typus nominis hoc loco : composante cryptophyto-chaméphytique du relevé 15 du tableau 3 in Ermakov & Polyakova (2022, Turczaninowia 25 (2) : 9-13). Cet ensemble de cinq syntaxons caractérisé par Chrysanthemum zawadzkyii, Bromus pumpellianus, Equisetum pratense, Pyrola asarifolia subsp. a., Fragaria orientalis, Aconitum baicalense / turczaninowii, Conioselinum tataricum, Vicia venosa, Campanula turczaninovii, Artemisia sericea a la valeur d’une autre alliance, le Conioselino tatarici-Chrysanthemion zawadzkyii all. nov. hoc loco, typus nominis hoc loco : l’Anemonastro criniti-Aconitetum barbati nov.
Avec ses 21 relevés, la colonne 19 est une mégaphorbiaie intraforestière plus septentrionale, ne se rattachant d’ailleurs bien à aucune des alliances précédentes : Aconito septentrionalis-Valerianetum wolgensis ass. nov. hoc loco, typus nominis hoc loco : composante cryptophytique du relevé 127 du tableau 8 in Degteva (2001, Veg. Russia 2 : 28-31). Elle devrait se rattacher à une alliance localement caractérisée par Trollius europaeus qui y remplacerait T. asiaticus et T. kitmanovii caractérisant des alliances plus méridionales (cf. infra).
L’ensemble formé par les colonnes 20 à 27, emprunté à Lashchinskiy & Lashchinskaya (2012), est bien caractérisé, mais participe aussi assez largement des alliances déjà évoquées, ce qui ne facilite pas la structuration du tableau 6. La colonne 22 peut être isolée comme Eryngio plani-Filipenduletum picbaueri ass. nov. hoc loco, typus nominis hoc loco : composante cryptophytique du relevé 22 du tableau 1 in Lashchinskiy & Lashchinskaya (2012, Veg. Russia 21 : 82-83, en changeant Filipendula stepposa en F. ulmaria subsp. picbaueri). La colonne 23 sera l’Artemisio macranthae-Violetum hirtae ass. nov. hoc loco, typus nominis hoc loco : composante cryptophytique du relevé 27 du tableau 2 in Lashchinskiy & Lashchinskaya (2012, Veg. Russia 21 : 86-88). La colonne 25 peut être nommée Potentillo canescentis-Caricetum supinae ass. nov. hoc loco, typus nominis hoc loco : composante cryptophytique du relevé 4 du tableau 3 in Lashchinskiy & Lashchinskaya (2012, Veg. Russia 21 : 89-91). La colonne 26 le sera comme Parasenecioni hastati-Vicietum sylvaticae ass. nov. hoc loco, typus nominis hoc loco : composante cryptophytique du relevé 12 du tableau 3 in Lashchinskiy & Lashchinskaya (2012, Veg. Russia 21 : 89-91). On a l’impression que cette grande unité 20 à 27 est un point de convergence des alliances précédentes, tout en étant hautement caractérisée par une forte représentation de Calamagrostis epigejos, Poa angustifolia, Phlomoides tuberosa (Lamiaceae), Kadenia dubia, Cirsium serratuloides, Koenigia alpina, Adenophora liliifolia (Campanulaceae), Fragaria viridis, Viola hirta, V. rupestris, V. canina, Ranunculus polyanthemos, Thalictrum simplex, Heracleum sibiricum, Hylotelephium telephium, Geranium pratense, Galatella biflora, Medicago platycarpos, Vicia tenuifolia, Geum aleppicum, Artemisia macrantha, A. pontica, A. latifolia, Anemone sylvestris, Peucedanum morisonii, Silene nutans subsp. n., Plantago urvillei, Carex supina, Filipendula ulmaria subsp. picbaueri, F. vulgaris (on reconnaît dans cette liste plusieurs taxons inféodés aux ourlets thermophiles des Trifolio medii-Geranietea sanguinei T. Müll. 1962) ; on lui attribue le rang d’alliance originale comme Cirsio serratuloidis-Phlomoidion tuberosae all. nov. hoc loco, typus nominis hoc loco : l’Artemisio macranthae-Violetum hirtae nov.
Les colonnes 28 à 31 correspondent à quatre relevés publiés par Guinochet (1982, tableau II) : en 28 et 29 le « Betulo-Alnetum sibiricae Guin. 1982 prov. » repris supra (§ 4, La végétation arbustive) comme Clematido sibiricae-Alnetum fruticosae Guin. ex B. Foucault, en 30 le Spiraeo flexuosae-Saussureetum parviflorae Guin. 1982 prov. et en 31 le Rubo arctici-Cardaminetum macrophyllae Guin. 1982 prov. Ces relevés sont évidemment en nombre insuffisant pour valider définitivement ces syntaxons.
Ces derniers ont été placés provisoirement par le phytosociologue français dans le Trollio asiatici-Crepidion sibiricae et les Trollio asiatici-Crepidetalia sibiricae. Ces unités semblaient avoir été validées par Chytrý et al. (1993, Folia Geobot. Phytotax. 28 : 349 et 350) en considérant que le Rubo arctici-Cardaminetum macrophyllae Guin. 1982 serait valide, ce qu’il n’est pas. Il faut donc reprendre ici ces validations :
- Rubo arctici-Cardaminetum macrophyllae ex ass. nov. hoc loco, typus nominis hoc loco: relevé 4 du tableau II in Guinochet (1982, Doc. Phytosoc., n. s., VI hors texte) ;
- Trollio asiatici-Crepidion sibiricae ex all. nov hoc loco [syn. : Trollio asiatici-Crepidion sibiricae Guin. 1982 (Doc. Phytosoc., n. s., VI : titre du tableau II) nom. inval., Trollio asiatici-Crepidion sibiricae Guin. « ex » Chytrý, Pešout & Anenchonov 1993 (Folia Geobot. Phytotax. 28 : 350) nom. inval.], alliance hautement caractérisée par Crepis sibirica, Trollius asiaticus, Aconitum septentrionale, Heracleum dissectum, Lilium martagon subsp. pilosiusculum, Pulmonaria mollis subsp. m., Sanguisorba officinalis, Trifolium lupinaster, Calamagrostis obtusata, Polemonium caeruleum, ainsi que la plupart des taxons des GS à Aconitum volubile et à Euphorbia pilosa (voir tableau 6 hoc loco), typus nominis hoc loco: le Rubo arctici-Cardaminetum macrophyllae Guin. ex nov. ;
- Trollio asiatici-Crepidetelia sibiricae ex ord. nov hoc loco [syn. : Trollio asiatici-Crepidetalia sibiricae Guin. 1982 (Doc. Phytosoc., n. s., VI : 297 et titre du tableau II) nom. inval., Trollio asiatici-Crepidetalia sibiricae Guin. « ex » Chytrý, Pešout & Anenchonov 1993 (Folia Geobot. Phytotax. 28 : 349) nom. inval.], ordre caractérisé par les mêmes taxons que le Trollio asiatici-Crepidion sibiricae Guin. ex B. Foucault, qui en est le typus nominis hoc loco.
Comme le montre le tableau 6 hoc loco, les colonnes 32 à 35 ne se rattachent pas aux alliances et ordre précédents. Elles décrivent des associations étudiées par Chytrý et al. (1995). La colonne 32 (un unique relevé à Cardamine macrophylla) est rattachée par ces auteurs au Rubo arctici-Cardaminetum macrophyllae, mais dans le contexte actuel ce rattachement est inadéquat. La colonne 33 est rattachée au Cacalio hastatae-Caricetum langsdorffii Mirkin in Mirkin et al. 1992, la 25 au Geranio albiflori-Pedicularietum uncinatae Chytrý et al. 1995 (incluant l’« Aconito rubicundi-Salicetum krylovii Chytrý et al. 1995 »), la 35 à l’Aquilegio glandulosae-Geranietum albiflori Chytrý et al. 1995. Les auteurs rattachent ces associations aux Trollio asiatici-Crepidetalia sibiricae, position qu’on ne peut retenir pas ici ; on préfère reconnaître l’alliance nouvelle du Trollio kitmanovii-Geranion albiflori all. nov hoc loco, caractérisée par Trollius kytmanovii, Lactuca sibirica, Polemonium villosum, Agrostis clavata, Filipendula digitata (photo 24), Carex utriculata, C. nigra subsp. juncea, Doronicum altaicum, Dichodon cerastoides, Luzula multiflora subsp. sibirica, Pedicularis incarnata, Solidago dahurica, typus nominis hoc loco : le Geranio albiflori-Pedicularietum uncinatae Chytrý, Pešout & Anenchonov 1993 (Folia Geobot. Phytotax. 28 : 410).
Les Trollio sibiricae-Crepidetalia sibiricae et Trollio kitmanovii-Geranion albiflori (ce dernier dans quel ordre ?) partagent suffisamment de taxons (Geranium albiflorum, Pleurospermum uralense, Poa sibirica, Veratrum lobelianum) pour considérer qu’ils se rattachent à la même classe, distincte des Mulgedio-Aconietea variegati Hadač & Klika ex Klika 1948, qui pourrait être les Aconito paskoi-Geranietea albiflori Zhitlukhina & Onishchenko 1987, peut-être inédite (art. 1 ?).
En regardant de près les tableaux de mégaphorbiaies publiés, on peut dégager en outre des communautés associées. En premier lieu, il semble exister une microphorbiaie à Micranthes punctata (photo 25, où Pallas hésite avec M. davurica), Epilobium anagallidifolium, Chrysosplenium alternifolium, Viola suecica, dont le tableau 7 rapporte les quelques relevés connus (surtout relevés 1 à 5, le 6 paraissant à part) ; cette petite association est intéressante à dégager quand on connaît les relations spatiales entre mégaphorbiaies et microphorbiaies (de Foucault, 1984 : 423, 2011, 2018) : Epilobio anagallidifolii-Micranthetum punctatae ass. nov. hoc loco, typus nominis hoc loco : composante à petits taxons hygrophiles du relevé 11 du tableau 2 in Chytrý et al. (1995, Phytocoenologia 25 (3) : 411-413) repris dans la colonne 3 du tableau 7 hoc loco. En lien avec l’Aconito septentrionalis-Valerianetum wolgensis subboréal, dans le même tableau 8 de Degteva (relevés 120, 127 et 128), on remarque l’existence d’une microphorbaie associée et caractérisée par Micranthes nelsoniana subsp. aestivalis (= Saxifraga aestivalis) (présence 3), Viola biflora (2), V. epipsila (2), Myosotis scorpioides (2), Oxalis acetosella (2), montrant une vicariance avec le Saxifrago rotundifoliae-Violetum biflorae des Alpes (de Foucault & Delpech, 1985) : Violo biflorae-Micranthetum aestivalis ass. nov. hoc loco, typus nominis hoc loco : composante à petits taxons hygrophiles du relevé 127 du tableau 8 in Degteva (2001, Veg. Russia 2 : 28-31).
Par ailleurs, on peut aussi reconnaître une communauté thérophytique hygrophile relevant des Bidentetea tripartitae dans les relevés 1 à 4 du tableau 12 in Chytrý et al. (1993) : Persicaria sagittata 4, Rorippa palustris 4, Persicaria hydropiper 1, Bidens cernua 1, B. radiata 1, soit le Rorippo palustris-Persicarietum sagittatae ass. nov. hoc loco, typus nominis hoc loco : composante thérophytique du relevé 1 du tableau 12 in Chytrý et al. (1993, Folia Geobot. Phytotax. 28 : 370) en changeant Truellum sieboldii en Persicaria sagittata.
8. Quelques prairies halophiles
8.1. La végétation vivace
Dans une synthèse précédente des Juncetea maritimi Tüxen & Oberd. 1958 (de Foucault, 2021a), incl. les Asteretea tripolii V. Westh. & Beeftink in Beeftink 1962, on avait retenu sept ordres, mais il y manquait une composante importante, notamment décrite par Golub (1994), qui inclut la Sibérie centro-méridionale et la Mongolie.
Le tableau 8 reprend les données de Golub (1994) et Hilbig et al. (1999), avec soixante-huit colonnes. Les colonnes 1 à 3 sont rattachées par Golub au Scorzonero parviflorae-Juncion gerardii Wendelberger ex Vicherek 1973 et Scorzonero parviflorae-Juncetalia gerardii Vicherek 1973.
Le large ensemble formé par les colonnes 4 à 35, caractérisé par les GS à Carex diluta et à Cirsium esculentum, constituerait l’ordre des Cirsietalia esculentae Mirkin & Golub in Golub 1994, typifié par le Cirsion esculenti Golub 1994 et incluant quatre alliances :
- le Geranion collini Golub & Saveljeva in Golub 1994 typifié par le Plantago cornuti-Festucetum arundinaceae Golub & Saveljeva in Golub 1994 [avec trois sous-alliances : le Beckmannio eruciformis-Puccinellenion bilykianae Golub 1994 (colonnes 4 et 5), le Peucedanenion latifolii Golub 1994 (colonnes 6 et 7), l’Eu–Geranienion collini (incluant le type, colonnes 8 à 12) ;
- le Cirsio esculenti-Hordeion brevisubulati Mirkin in Karpov et al. ex Golub 1994 (colonnes 13 à 22, plus sans doute 23 et 24, donc incluant le Cirsion esculenti Golub 1994 typifié par le Cnidio-Poetum angustifoliae Golub 1994 en colonne 21) ;
- le Puccinellion tenuiflorae Kononov in Kononov et al. 1986 (colonnes 25 à 28) ;
- l’Halerpestion salsuginosae Mirkin et al. ex Golub 1994 (colonnes 29 à 35) ;
ces deux dernières alliances sont rapprochées par Golub dans les Halerpestetalia salsuginosae Golub 1994, ordre non séparable des Cirsietalia esculenti d’après le tableau de synthèse.
L’ensemble des colonnes 36 à 63 constitue l’ordre des Artemisio santonicae-Limonietalia gmelinii Golub & Solomakha 1988, avec cinq alliances, plusieurs faiblement caractérisées et qu’on peut alors réduire à deux :
- les Limonion gmelinii Golub 1994, Limonion sareptani Golub 1994 et Limonion tomentelli Agafonov & Golub in Golub 1994 (colonnes 36 à 44) devraient être inclus dans l’Artemision santonicae Shelyag-Sosonko & Solomakha 1987 (colonnes 45 à 54) ; il doit en être de même des colonnes 55 à 58 correspondant à l’« Alhagion pseudoalhagi Golub & Tchorbadze in Golub 1994 » qu’on ne retient pas ici, le taxon éponyme étant potentiellement un arbuste, caractérisant donc plutôt un fourré halophile, malheureusement seul de son type biologique dans les tableaux utilisés (avec ce taxon, du bassin de l’Amu Darya, Korolyuk et al., 2025, citent des Tamarix, Caragana halodendron, Halostachys caspica, Elaeagnus angustifolia, Cynanchum acutum ; voir l’Elaeagno angustifoliae-Tamaricetum ramosissimae in de Foucault, 2026 : 10) ;
- le Puccinellion fominii Shelyag-Sosonko & Solomakha ex Golub 1994 (colonnes 59 à 63) ; cette alliance s’appauvrit en taxons caractéristiques des unités supérieures, mais se rattache par enchaînement à l’ordre.
L’appauvrissement floristique des colonnes 64 à 68 est encore plus extrême : il ne reste plus guère que Triglochin maritima, Limonium gmelinii et Plantago salsa, parfois Puccinellia tenuiflora, ce qui peut suffire pour rattacher cet ensemble aux Juncetea maritimi en irradiation extrême pour ne pas multiplier les classes à contenu trop réduit. Les trois colonnes 64 à 66 peuvent être interprétées comme des variations du Plantagini salsae-Limonietum gmelinii prov., la colonne 67 est le Sphaerophyso salsulae-Leymetum paboani prov., deux syntaxons non typifiables sur les données consultées. La colonne 68 est le Glycyrrhizo uralensis-Achnatheretum splendentis Hilbig 1990. Cette dernière association peut être retenue comme typus nominis hoc loco du Lepidio crassifolii-Plantaginion salsae all. nov. hoc loco, caractérisé par Limonium gmelinii, Plantago salsa, Lepidium crassifolium, Leymus paboanus, Camphorosma monspeliaca, Saussurea salsa, Koenigia sibirica, Puccinellia tenuiflora, alliance pouvant caractériser l’ordre des Lepidio crassifolii-Plantaginetalia salsae ord. nov. hoc loco, dont les taxons caractéristiques coïncident avec ceux de l’alliance.
Faiblement reliées au Lepidio crassifolii-Plantaginion salsae par Koenigia sibirica, les colonnes 1 à 4 du tableau 9 correspondent à quatre associations partageant Nitraria sibirica (Nitrariaceae), des Kalidium (Amaranthaceae) et Reaumuria songarica (Tamaricaceae), la 2 étant le Nitrario sibiricae-Kalidietum gracilis Hilbig 2000, la 3 le Reaumurio songaricae-Kalidietum foliati Koroluyk & Namzalov 2024 (illustré in Koroluyk & Namzalov, 2024 : photo 6) et la 4 le Reaumurio songaricae-Achnatheretum splendentis Koroluyk & Namzalov 2024 (illustré in Koroluyk & Namzalov, 2024 : photo 7), de transition vers les steppes de l’Allion polyrhizi. Selon Hilbig & Narantuya (2016), la première serait à rattacher au Reaumurio songaricae-Salsolion passerinae (Mirkin in Kašapov et al. 1988) Mirkin et al. 1988, aux Reaumurio songaricae-Salsoletalia passerinae (Mirkin in Kašapov et al. 1988) Mirkin et al. 1988 (respectivement prioritaires sur les Kalidion gracilis Mirkin in Golub, Rukhlenko & Sokoloff 2001 et Kalidietalia gracilis Mirkin in Golub, Rukhlenko & Sokoloff 2001 retenus par Koroluyk & Namzalov, 2024 ?) et aux Kalidietea foliati Mirkin et al. ex Rukhlenko 2012.
La colonne 5 décrit l’Halerpesto salsuginosae-Hordeetum brevisubulati Hilbig 1990 (‘Halerpestidi…’, art. 41b) montrant des affinités avec l’Halerpestion salsuginosae, mais quasiment dépourvu des halophytes caractérisant les Juncetea maritimi.
8.2. La végétation thérophytique halophile
Il existe des communautés thérophytiques halophiles associées à cette végétation des Juncetea maritimi, les taxons les plus représentés étant Salicornia perennans, Suaeda prostrata, S. corniculata, S. salsa, S. altissima, Polygonum arenarium subsp. a., Halimione pedunculata, Atriplex tatarica, A. patens, A. sibirica, Petrosimonia oppositifolia (photo 4), Sedobassia sedoides (photo 26), Camphorosma annua. L’ordination du tableau résultant n’a pas été concluante, ce tableau ne sera donc pas présenté ici, mais on peut au moins isoler à partir des colonnes 11 à 14 du tableau 6 in Golub (1994) le groupement suivant (sur 31 relevés) : Salicornia perennans III, Suaeda salsa III, S. altissima II, S. acuminata II, Eremopyrum triticeum (Poaceae) II, Atriplex tatarica II, Petrosimonia oppositifolia II, plus quelques taxons de présence r, qui ne peut être validé faute de relevé détaillé ; il semble floristiquement plus riche en thérophytes que le Salicornio perennantis-Suaedetum salsae décrit par Freitag et al. (2001, tableau 2) qui ne comporte que les deux taxons éponymes et est voisin du Suaedetum eltonicae décrit par les mêmes auteurs (leur tableau 3).
Autre classe thérophytique, les Crypsietea aculeatae Vicherek 1973 (muté en Sporoboletea aculeati Vicherek 1973 nom. mut. hoc loco) ont fait l’objet d’une synthèse assez récente (de Foucault, 2021b). Des données provenant de Sibérie occidentale ont été publiées postérieurement par Korolyuk & Chupina (2025) et sont venues compléter le tableau 3 de 2021b pour former le tableau 10 hoc loco (à propos de cette classe on pourra aussi consulter Iemelianova et al., 2025). Sur les huit associations nouvellement incluses, deux sont rattachées au Cypero-Spergularion marinae (Sc-Ca pour le Suaedo corniculatae-Sporoboletum aculeati Korolyuk & Chupina 2025 nom. mut. hoc loco, Ps-Ca pour le Polygono salsugini-Sporoboletum aculeati Korzh. & Klukin 1990 nom. mut. hoc loco). Les six autres peuvent être rapprochées dans une alliance originale caractérisée par Salicornia perennans subsp. p., Suaeda salsa, S. acuminata, Polygonum arenarium, Atriplex littoralis et l’absence significative de Polypogon monspeliensis et Oxybasis glauca, le Salicornio perennantis-Sporobolion aculeati all. nov. hoc loco, typus nominis hoc loco : le Sporobolo aculeati-Sodetum inermis Golub, Chuvashov, Bondareva & Nikolaichuk 2017 (Arid Ecosyst. 7 (1) : 27 sub Crypsido aculeatae-Salsoletum sodae) nom. mut. hoc loco en colonne 24 du tableau 10. Les autres associations sont en 25 l’« Alismato graminei-Salicornietum perennantis Golub 1985 », en 26 le Salicornio perennantis-Oxybasietum rubrae Golub & Yuritsyna 2001 nom. mut. hoc loco, en 27 le « Spergulario salinae-Eleocharitetum parvulae Golub & Yuritsyna 2001 », en 28 le « Bolboschoeno maritimi-Salicornietum perennantis Golub & Yuritsyna 2001 » et en 29 l’« Argusio sibiricae-Phragmitetum Golub & Mirkin 1986 » ; les noms entre guillemets sont biologiquement hétérogènes et devraient être redéfinis.
9. Conclusion
Illustré par plus d’une vingtaine d’illustrations végétales extraites d’un volume de 1793 consacré aux voyages du naturaliste allemand Peter Simon Pallas, le présent travail a donc apporté une nouvelle vision de la végétation de Sibérie centro-méridionale et de Mongolie en abordant les boisements de Larix sibirica, des fourrés accueillant divers Caragana, des steppes vivaces à Artemisia, des mégaphorbiaies et ourlets mésohygrophiles, la végétation halophile tant vivace que thérophytique. Trois ordres et douze alliances nouveaux ont été définis ou validés.
Mais tous les problèmes n’ont pas été résolus ici, notamment parce que la littérature russe n’est pas aisément accessible ni facilement lisible, parce que divers syntaxons ne sont connus que par des colonnes synthétiques qui n’autorisent pas leur validation définitive. Il faudrait vérifier si toutes les unités synsystématiques citées sont validement publiées selon la version 4 de l’ICPN, rechercher les noms valides prioritaires, ce qui ne pourra être fait que par les phytosociologues russes qui ont accès plus aisément à leur littérature scientifique.
Bibliographie
Braun-Blanquet J., 1961. Die Inneralpine Trrockenvegetation. Geobotanica Selecta I : 1-273.
Chytrý M., Pešout P. & Anenchonov O.A., 1993. Syntaxonomy of vegetation of Sjatoj Nos Peninsula, lake Baikal; 1 – Non forest communities. Folia Geobotanica et Phytotaxonomica 28 : 337-383, https://doi.org/10.1007/BF02853303.
Chytrý M., Anenchonov O.A. & Danihelka J., 1995. Plant communities of the Bol’šoj Čivyrkuj River Valley, Barguzinskij Range, East Siberia. Phytocoenologia 25 (3) : 399-434, https://doi.org/10.1127/phyto/25/1995/399.
Degteva S.V., 2001. Classification of birch forests of southern and middle taïga of the Komi Republic ; I – Betuleta herbosa. Vegetation of Russia 2 : 3-37 (en russe), https://doi.org/10.31111/vegrus/2001.02.3.
Dodinet E., Mollet A.-M. & de Foucault B., 2020. Compte-rendu floristique et phytosociologique du voyage de la Société botanique de France au Ladakh (Inde du Nord), juillet-août 2016. Journal de botanique de la Société botanique de France 92 : 3-94 (compte-rendu phytosociologique : 78-93), https://doi.org/10.3406/jobot.2020.2302.
Dulepova N.A., 2016. Vegetation of sandy coasts of Lake Baikal. Vegetation of Russia 29 : 46-66 (en russe), https://doi.org/10.31111/vegrus/2016.29.46.
Dulepova N.A. & Korolyuk, 2015. Psammophyte vegetation of the Selenga river basin (Republic of Buryatia). Vegetation of Russia 27 : 78-95 (en russe), https://doi.org/10.31111/vegrus/2015.27.78.
Dulepova N.A. & Korolyuk, 2021. Psammophyte vegetation of the Bargusin depression (Republic of Buryatia). Vegetation of Russia 40 : 137-155 (en russe), https://doi.org/10.31111/vegrus/2021.40.137.
Ermakov N.B., 1995. Grass forest classification of southern Siberia and Mongolia. Colloques phytosociologiques XXIII, Large area vegetation surveys : 259-276.
Ermakov N.B., 2003. Tall-forb communities in the North Altai. Annali di Botanica, n. s., III : 23-34, https://doi.org/10.4462/annbotrm-9193.
Ermakov N.B. & Maltseva T., 1999. Phytosociological peculiarities of south Siberian rest meadows. Annali di Botanica LVII : 63-72, https://doi.org/10.4462/annbotrm-9048.
Ermakov N.B., Chytrý M. & Valachovič M., 2006. Vegetation of the rock outcrops and screes in the fores-steppe and steppe belts of the Altai and Western Sayan Mts., southern Siberia. Phytocoenologia 36 (4) : 509-545, https://doi.org/10.1127/0340-269X/2006/0036-0509.
Ermakov N. & Polyakova M.A., 2022 Syntaxonomy and geography of light-coniferous and mixed (Pinus sibirica, Larix sibirica) forests of the Bolshoy Agul River basin (Eastern Sayan, Southern Siberia). Turczaninowia 25 (2) : 5-18, https://doi.org/10.14258/turczaninowia.25.2.1.
Foucault B. (de), 1984. Systémique, structuralisme et synsystématique des prairies hygrophiles des plaines atlantiques françaises. Thèse de doctorat d’État, Rouen, 675 p. et tableaux.
Foucault B. (de), 2011. Contribution au prodrome des végétations de France : les Filipendulo ulmariae-Convolvuletea sepium Géhu & Géhu-Franck 1987. Journal de botanique de la Société botanique de France 53 : 73-137.
Foucault B. (de), 2018. Contribution au prodrome des végétations de France : les Montio-Cardaminetea amarae Braun-Blanq. & Tüxen ex Klika & Hadač 1944. Documents phytosociologiques, 3e série, 7 : 1-86.
Foucault B. (de), 2021a. Contribution à une synthèse des Juncetea maritimi. Carnets botaniques 68 : 1-30 + 22 tableaux, https://doi.org/10.34971/nbat-mh09.
Foucault B. (de), 2021b. Contribution à la connaissance de la végétation des étangs asséchés et des canaux du Narbonnais. Carnets botaniques 38 : 1-15 + 3 tableaux, https://doi.org/10.34971/387K-6576.
Foucault B. (de), 2022a. Compléments aux synthèses des Thero-Suaedetea splendentis, Sarcocornietea fruticosae et Juncetea maritimi. Carnets botaniques 115 : 1-13 + 13 tableaux, https://doi.org/10.34971/5qd1-vt09.
Foucault B. (de), 2022b. Compléments aux synthèses des Juncetea bufonii et Crypsietea aculeatae ; essai sur les Oryzetea sativae. Carnets botaniques 107 : 1-27 + 5 tableaux, https://doi.org/10.34971/vgyx-k502.
Foucault B. (de), 2023. Un printemps botanique et phytosociologique au pays du Matin calme (fin mars et avril 2023). Carnets botaniques 156 : 1-34 + 15 tableaux, https://doi.org/10.34971/spy7-vw87.
Foucault B. (de), 2026. Miscellanées phytosociologiques XI : syntaxons nouveaux, validés ou complétés. Carnets botaniques 323 : 1-14 + 7 tableaux, https://doi.org/10.34971/VUQD-H2QU.
Foucault B. (de) & Delpech R., 1985. Quelques données sur les « microphorbiaies » à Viola biflora de haute-Maurienne. Colloques phytosociologiques XII, séminaire Mégaphorbiaies : 67-73.
Foucault B. (de) & Guitton H., 2021. Une déclinaison moderne des Thero-Suaedetea splendentis. Carnets botaniques 76 : 1-9 + 2 tableaux, https://doi.org/10.34971/3XK3-N640.
Gaulthier de La Peyronie, 1793. Voyages de M. P.S. Pallas en différentes provinces de l’empire de Russie et dans l’Asie septentrionale, VI (planches). Librairie Maradan, Paris.
Golub V.B., 1994. Class Asteretea tripolium on the territory of the former USSR and Mongolia. Folia Geobotanica et Phytotaxonomica 29 : 15-54, https://10.1007/BF02807774.
Golub V.B. & Tchorbadze N.B., 1995. Vegetation communities of western substeppe ilmens of the Volga delta. Phytocoenologia 25 (4) : 449-466, https://10.1127/phyto/25/1995/449.
Golub V.B., Chuvashov A.V., Bondareva V.V. & Nikolaichuk L.F., 2017. Plant communities of the lower reaches of the Volga river on soils with strongly seasonal dynamics of salinization. Arid Ecosystems 7 (1) : 23-30, https://doi.org/10.1134/S207909611701005X.
Guinochet M., 1982. Notes de phytosociologie sigmatiste en Sibérie méridionale. Documents phytosociologiques, n. s., VI : 295-301.
Hilbig W., 2000. Kommentierte Übersicht über die Pflanzengesellschaften und ihre höheren Syntaxa in der Mongolei. Feddes Repertorium 111 : 75-120, https://doi.org/10.1002/fedr.20001110108.
Hilbig W. & Knapp H.D., 1983. Vegetationsmosaik und Florenelemente an der Wald-Steppen-Grenze im Chentej-Gebirge (Mongolei). Flora 174 : 1-89, https://doi.org/10.1016/S0367-2530(17)31370-1.
Hilbig W., Bastian O., Jäger E.J. & Bujan-Oršich Ch., 1999. Die Vegetation des Uvs-nuur-Beckens (Uvs Aimak, Nordwestmongolei) (Ergebnisse der Mongolisch-Deutschen Biologischen Expeditionen seit 1962, Nr. 234). Feddes Repertorium 110 (7-8) : 569-625, https://doi.org/10.1002/fedr.19991100718.
Hilbig W. & Narantuya N., 2016. Plant communities in eastern Mongolia. Erforschung biologischer Ressourcen der Mongolei, Halle-Wittenberg, 36 p., ISSN 0440-1298.
Iemelianova S., Ditĕ D. et onze autres auteurs, 2025. Annual vegetation of saline seasonal wetlands (Crypsietea aculeatae) in Europe. Applied Vegetation Science 28 : e70044, https://doi.org/101111/avsc.70044.
Karamysheva Z.V. & Khramtsov W.N., 1995. The steppes of Mongolia. Braun-Blanquetia 17 : 1-79.
Korolyuk A.Yu., 2017. Syntaxonomy of steppe vegetation of the Republic of Buryatia. Vegetation of Russia 31 : 3-32 (en russe), https://doi.org/10.31111/vegrus/2017.31.3.
Korolyuk A.Yu., 2019. Steppes of the class Cleistogenetea squarrosae Mirkin et al. ex Korotkov et al. 1991 in Eastern Transbaikalia. Vegetation of Russia 35 : 28-60 (en russe), https://doi.org/10.31111/vegrus/2019.35.28.
Korolyuk A.Yu. & Namzalov B.B., 2024. On nomenclatural problems of syntaxonomy of Siberian steppes, diversity and some general vegetation feaures of Chuya depression (Republic of Altai). Vegetation of Russia 49 : 52-74 (en russe), https://doi.org/10.31111/vegrus/2024.49.52.
Korolyuk A.Yu. & Chupina I.S., 2025. Crypsietea aculeatae Vicherek 1973, the new class for Asian Russia. Turczaninowia 28 (1) : 46-54 (en russe), https://doi.org/10.14258/turczaninowia.28.1.5.
Korolyuk A.Yu., Shomurodov H.F. & Khabibullaev B.S., 2025. Syntaxonomy of riparian forests of the lower reaches of the Amudarya river. Turczaninowia 28 (2) : 51-61, https://doi.org/10.14258/turczaninowia.28.2.4.
Lashchinskiy N.N. & Lashchinskaya N.V., 2012. Small-leaved herbaceous forests in galley and ravine systems of Priobskoe plateau. Vegetation of Russia 21 : 78-95 (en russe), https://doi.org/10.31111/vegrus/2012.21.78.
Lavrinenko O.B. & Kochergina A.G., 2022. New associations and higher syntaxa of willow scrubs in the East European sector of the Arctic. Vegetation of Russia 44 : 97-135 (en russe), https://doi.org/10.31111/vegrus/2022.44.97.
Likhanova I.A., Zheleznova G.V. & Shushpannikova G.S., 2023. Willow communities at technogenic habitats in the middle-taiga subzone of north-east of the European part of Russia. Turczaninowia 26 (1) : 95-111 (en russe), https://doi.org/10.14258/turczaninowia.26.1.10.
Mirkin B.M., Gogoleva P.A. & Kononov K.E., 1985. The vegetation of central Yacutian Alases. Folia Geobotanica et Phytotaxonomica 20 : 345-395, https://doi.org/10.1007/BF02853283.
Neshataeva V.Yu., Neshataev V.Yu., Skvortsov K.I. & Kuzmina E.Yu., 2025. Willow shrub communities in the North of the Koryak Okrug (Kamchatka Territory). Vegetation of Russia 50 : 107-139 (en russe).
Polunin O. & Walters M., 1985. A guide to the vegetation of Britain and Europe. Oxford University Press, 238 p., ISBN 9192177133, 9780192177131.
Sekretareva H.A., 2001. Shrubby willow communities in the upper reaches of the Dlinnaya river (northern Koryakia, of northeastern Asia). Vegetation of Russia 1 : 36-42 (en russe), https://doi.org/10.31111/vegrus/2001.01.36.
Sekretareva H.A., 2003. Eutrophic shrub willow communities in the middle reaches of the Palyavaam river (the western part of Chukotka plateau, northeastern Asia). Vegetation of Russia 5 : 41-49 (en russe), https://doi.org/10.31111/vegrus/2003.05.41.
Takhtajan A., 1986. Floristic regions of the world. University of California Press, 522 p., ISBN 0520040279, http://rs.tdwg.org/frw/doc/book/.
Telyatnikov M.Yu., 2013. Syntaxonomy of tundra, cryophytic steppe, nival and alpine meadows in the highlands of the southeast Altai. Turczaninowia 16 (3) : 116-151 (en russe), https://doi.org/10.14258/turczaninowia.16.3.19.
Wehrden H. (von), Wesche K. & Miehe G., 2009. Plant communities of the southern Mongolian Gobi. Phytocoenologia 39 (3) : 331-376, https://10.1127/0340&U8211;269X/2009/0039&U8211;0331.
Zibzeev E.G. & Nedovesova T.A., 2014. Syntaxa of Dryas tundra of West Sayan mountains. Turczaninowia 17 (3) : 38-59 (en russe), https://doi.org/10.14258/turczaninowia.17.3.6.
Zibzeev E.G., Igay N.V. & Basargin E.A., 2018. High-mountain vegetation of the Sangilen Plateau: Cobresia grasslands, shrub and dwarf shrub tundra. Turczaninowia 21 (1) : 81-112 (en russe), https://doi.org/10.14258/turczaninowia.21.1.9.
Remerciements
Mes remerciements vont à ceux qui m’ont aidé à acquérir certaines publications : le centre de documentation du Conservatoire botanique national des Hauts-de-France et Vincent Gaudillat, coordinateur de la cellule Habitats / Milieux au centre d’expertise et de données sur le patrimoine naturel PatriNat du Muséum national d’histoire naturelle. Merci aussi à Franck Le Driant qui m’a autorisé à utiliser une photo de sa base photographique FloreAlpes (www.florealpes.com).