Miscellanées phytosociologiques XI : syntaxons nouveaux, validés ou complétés
Title
Phytosociological miscellanées XI: new, validated or completed syntaxa
Résumé
Ce onzième numéro de Miscellanées phytosociologiques apporte de nouvelles données sur des pelouses halophiles, thérophytiques amphibies et xérophiles, des ourlets et surtout diverses forêts de l’hémisphère Nord.
Abstract
This eleventh issue of Miscellanées phytosociologiques presents new data on halophilous, amphibious therophytic and xerophilous grasslands, forest edges and, in particular, various forests of the Northern Hemisphere.
On présente ici le résultat d’investigations phytosociologiques menées tant sur le terrain qu’à partir de la bibliographie. Le référentiel nomenclatural suivi est celui de Plants of the World Online (https://powo.science.kew.org).
1. Des pelouses aérohalophiles vivaces est-méditerranéennes
Dans une publication récente (de Foucault, 2023a), j’avais tenté une synthèse des classes des Crithmo maritimi-Limonietea Braun-Blanq. in Braun-Blanq. et al. 1952 et des Armerio maritimae-Festucetea pruinosae Bioret & Géhu 2008 (à noter l’erreur en p. 15 qui a fait dénommer cette classe comme … –Festucetea maritimae). Dans la première, deux ordres (Crithmo-Limonietalia Molin. 1934 et Cichorietalia spinosi B. Foucault 2023) et dix-huit alliances avaient été mis en évidence, le second ordre étant alors nouvellement décrit pour la Méditerranée orientale. À l’époque, la publication de Mayer (1995) n’avait pas été consultée. Maintenant acquise à l’occasion d’une autre synthèse, elle a confirmé plusieurs associations sardes dans les Crithmo-Limonietalia et surtout défini et cartographié cinq associations sur le littoral crétois, l’Anthemido rigidae-Limonietum graeci Mayer 1995, le Crithmo maritimi-Limonietum virgati Mayer 1995, le Limonio graeci-Arthrocnemetum macrostachyi Mayer 1995 muté en Limonio graeci-Arthrocauletum macrostachyi nom. mut. hoc loco, le Salsolo aegaeae-Limonietum ocymifolii Mayer 1995 muté en Caroxylo aegaei-Limonietum ocymifolii Mayer 1995 nom. mut. hoc loco et le Centaureo spinosae-Limonietum sinuati Mayer 1995. Le tableau 1 hoc loco synthétise les données sur ces cinq associations (respectivement syntaxons 1 à 5). Le premier syntaxon est biologiquement hétérogène (la composante thérophytique à Anthemis rigida, avec en outre Parapholis incurva, Catapodium marinum, Hordeum marinum, Malcolmia flexuosa, Silene sedoides, relève des Saginetea maritimae) et peut être renommé Cichorio spinosi-Limonietum graeci ass. nov. hoc loco, typus nominis hoc loco : composante vivace du current number 32 du tableau 13 in Mayer (1995, Libri bot. 15 hors texte). Le deuxième syntaxon est un homonyme illégitime du Crithmo maritimi-Limonietum virgati (Rioux, J. Roux & Pignatti 1955) Géhu & Géhu-Franck 1986 (de Foucault, 2023a : 4) des Crithmo-Limonietalia ; il peut être renommé Cichorio spinosi-Limonietum virgati (Mayer 1995) ass. nov. hoc loco, typus nominis hoc loco : le même que l’holotype du basionyme illégitime qu’il remplace, soit le current number 95 du tableau 13 in Mayer (1995, Libri bot. 15 hors texte). L’auteur allemand place ces cinq syntaxons dans le Crithmo maritimi-Frankenion hirsutae Mayer 1995 (Libri bot. 15 : 112), alliance typifiée par l’Anthemido rigidae-Limonietum graeci Mayer 1995 (Libri bot. 15 : 112), caractérisée par Limonium graecum, Frankenia hirsuta, Lotus cytisoides, Juncus heldreichianus, à dispersion circum-crétoise (Mayer, 1995, fig. 27 p. 112). Si on injecte le présent tableau 1 dans le tableau synthétique 1 de la publication de 2023a, on voit que cette alliance confirme bien la valeur des Cichorietalia spinosi et, par ailleurs, qu’elle ne se réduit à aucune des six alliances qui y sont déjà connues.
2. La végétation de pelouses thérophytiques amphibies
Dans des publications antérieures (de Foucault, 2013), j’ai notamment confirmé la classe des Juncetea bufonii B. Foucault 1988, incluant l’alliance de l’Elatino triandrae-Damasonion alismatis B. Foucault 1988. Dans cette alliance, j’avais distingué un groupe d’associations à Damasonium polyspermum, opposé à un groupe à Ranunculus lateriflorus. Dans le premier groupe, n’avait alors pas été évoqué le Damasonio polyspermi-Crypsietum aculeatae Brullo & Minissale 1998 décrit à partir d’un tableau de Chevassut & Quézel (1958) d’Afrique du Nord. Laribi et al. (2016) rapportent d’Algérie six relevés d’un groupement qu’ils rattachent à ce Damasonio–Crypsietum aculeatae, lequel s’avère donc une association de passage entre Juncetea bufonii et Crypsietea aculeatae (de Foucault, 2022a).
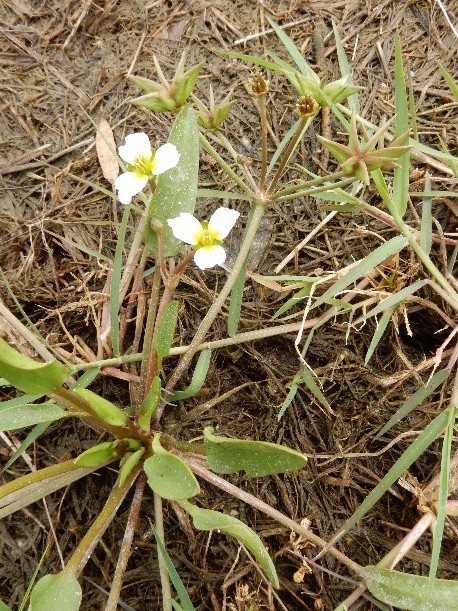
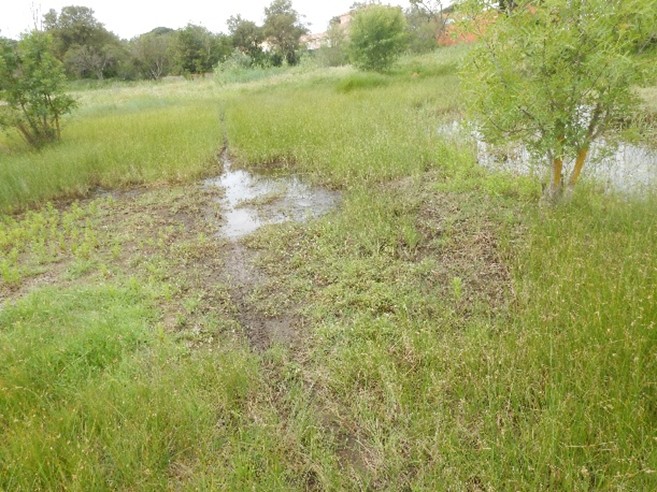
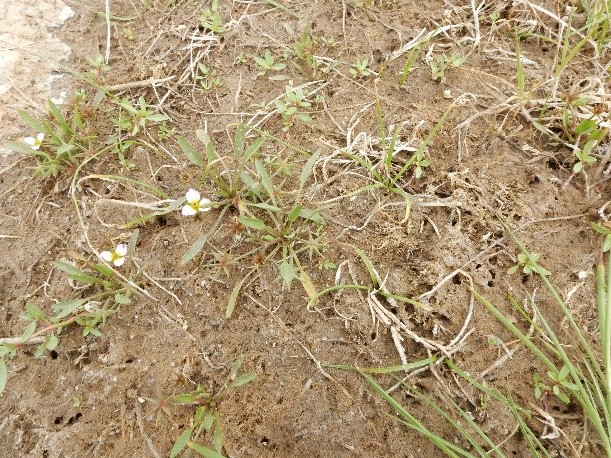
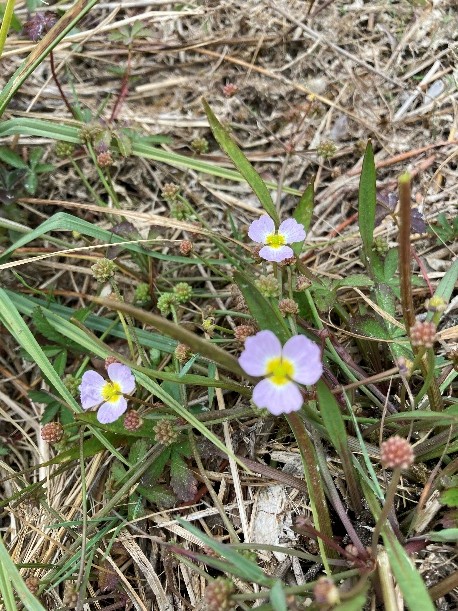
Un passage sur les mares temporaires du cap d’Agde (Hérault ; propriété du Conservatoire du littoral et des rivages lacustres), au lieu-dit les mares de Baluffe (N 43° 17’ 32,2’’, E 3° 27’ 45,6’’), au printemps 2026, a permis de confirmer la bonne santé de la population de Damasonium polyspermum (photo 1) dans cette station inscrite au réseau Natura 2000 sous le code FR9101416 (Carrières de Notre-Dame de l’Agenouillade), d’une surface de 4,6 ha. À une altitude moyenne comprise entre 3 et 7 m, ce site se situe sur les anciennes coulées basaltiques du volcan du mont Saint-Loup, aujourd’hui éteint. Il est caractérisé par la présence d’une vingtaine de mares temporaires creusées par l’homme dans le substrat basaltique (photo 2). Nées d’une ancienne activité humaine datant vraisemblablement de l’Antiquité, ces dépressions ont une forme de cuvette à pentes faibles. Les autres végétaux notables associés au Damasonium sont Pulicaria vulgaris, Lythrum tribracteatum et Elatine macropoda, mais ils n’ont pas été observés fleuris lors de ce passage de 2026. Globalement cet habitat correspond bien à l’Elatinetum macropodae Braun-Blanq. 1936 (Braun-Blanquet, 1936 ; de Foucault, 2013 ; photo 3). Il faudrait caractériser l’habitat vivace associé à cette pelouse amphibie thérophytique, qui héberge notamment Baldellia ranunculoides (photo 4) et quelquefois Carex divisa dont l’optimum se situe cependant dans les niveaux topographiques légèrement supérieurs ; Braun-Blanquet (op. cit.) cite aussi Mentha pulegium, Polygonum romanum subsp. gallicum, Cynodon dactylon et Eleocharis uniglumis.
Du lit mineur de la moyenne vallée de l’Ob, en Russie, Taran (2001) a décrit une forme originale du Cypero fusci-Limoselletum aquaticae Oberd. ex Korneck 1960 sur la base de soixante-et-un relevés répartis en trois tableaux selon la liste synsystématique globale suivante :
- Juncetea bufonii: Limosella aquatica V, Gnaphalium pilularis V, Callitriche palustris V, Coleanthus subtilis IV, Rumex ucranicus III, Eleocharis acicularis annua III, Persicaria tomentosa III, Polygonum volchovense II, Juncus bufonius II, Oxybasis rubra *humilis II, O. glauca I, Potentilla supina *paradoxa I, Juncus ranarius I, Cyperus michelianus +, Carex bohemica r, Elatine hydropiper r,
- Bidentetea tripartitae: Rorippa palustris V, Bidens radiata III, Rumex maritimus I, Bidens tripartita r, Ranunculus sceleratus r, Persicaria hydropiper r,
- autres taxons : Poa annua I, Spergularia rubra
Les huit taxons soulignés différencient nettement cette forme du Cypero-Limoselletum de celle d’Europe moyenne et cette différenciation est suffisante pour autoriser la description d’une association vicariante à affinités plus boréales, le Gnaphalio pilularis-Limoselletum aquaticae (Taran 1994) ass. nov. hoc loco [syn. : Cypero-Limoselletum aquaticae sensu Taran 2001 (Veg. Russia 1 : 42), où est citée la référence à Taran 1994 qui n’a pu être consultée], typus nominis hoc loco : relevé 5 du tableau 1 in Taran (2001, Veg. Russia 1 : 46-47). Il est clair que, sous l’effet d’une eutrophisation, cette association doit dériver vers une association relevant des Bidentetea tripartitae qu’il serait d’ailleurs intéressant de préciser aussi. On retrouve encore ce Gnaphalio-Limoselletum aquaticae chez Taran (1999, tableau 1, surtout relevés 6 à 11) en contact avec le Salicetum triandrae Malcuit ex Noirfalise 1955 (incl. Salicetum triandro-viminalis W. Lohmeyer ex Moor 1958). Ajoutons que, chez l’auteur russe (1999, tableau 1 : relevés 6 à 14 et 18, soit 10 relevés), on peut isoler la prairie vivace inondable suivante : Eleocharis palustris V, Agrostis stolonifera V, Equisetum arvense V, Rorippa amphibia V, Mentha arvensis IV, Carex acuta IV°, Plantago major III, Ranunculus repens II, Equisetum fluviatile II, Lysimachia thyrsiflora II, qui se rattache clairement à l’alliance du Mentho arvensis-Eleocharition palustris B. Foucault in B. Foucault & Catteau 2012 à répartition montagnarde et boréale (de Foucault & Catteau, 2012).
D’une autre région de Russie, Sinelnikova et Taran (2006, tableau 3) décrivent une association voisine du Gnaphalio pilularis-Limoselletum aquaticae (sur 23 relevés) :
- Juncetea bufonii: Rorippa hispida V, Elatine hydropiper III, Eleocharis acicularis annua III, Limosella aquatica II, Juncus bufonius II, Polygonum humifusum I, Gnaphalium uliginosum I,
- autre taxon : Androsace filiformis II,
qu’ils valident comme Eleocharito acicularis-Rorippetum hispidae Sinelnikova & Taran 2006. Dans les taxons compagnes de cette association, mais aussi de roselières vivaces (tableaux 1 et 2 des auteurs), des formes juvéniles de divers Salix permettent d’envisager la définition future d’une ripisylve originale à Salix schwerinii, S. udensis, S. boganidensis, S. rorida, S. arbutifolia qui reste à décrire et à valider.
De Californie, Keeley et Zedler (1998, figure 2) publient une zonation végétale de mares temporaires que l’on peut aussi présenter ainsi :
- bas niveau topographique, végétation vivace à Eleocharis macrostachya, Eryngium aristulatum, Isoetes orcuttii, howellii, Pilularia americana, Brodiaea orcuttii (Asparagaceae), homologue de celle de l’Antinorio agrostideae-Isoetion longissimae B. Foucault 1988 ouest-européen ; végétation thérophytique à Lysimachia minima, Deschampsia danthonioides, Myosurus minimus, Pogogyne abramsii (Lamiaceae), Psilocarphus brevissimus (Asteraceae), Crassula aquatica, Elatine brachysperma, Downingia cuspidata (Campanulaceae), Triglochin scilloides, homologue de la végétation du Crassulo vaillantii-Lythrion borysthenici B. Foucault 1988 ;
- niveau topographique moyen, végétation thérophytique à Plantago erecta, elongata, Psilocarphus tenellus (Asteraceae), Trifolium depauperatum, Lythrum hyssopifolia, Juncus bufonius, Zeltnera venusta (Gentianaceae), Agrostis microphylla, Navarettia hamata (Polemoniaceae), Deinandra fasciculata (Asteraceae) et des taxons naturalisés d’Europe (Logfia gallica, Erodium moschatum, E. botrys, Festuca muyros, Hypochaeris glabra, Gastridium ventricosum), homologue de celle des Nanocyperetalia flavescentis Klika 1935 ; végétation vivace à Ophioglossum californicum homologue de celle de l’Ophioglosso lusitanici-Isoetion histricis B. Foucault 1988.
3. La végétation de pelouses thérophytiques xérophiles
En présentant le résultat de mes observations phytosociologiques sur la commune de Grabels, aux environs de Montpellier (Hérault), j’ai publié un tableau de cinq relevés d’une pelouse à Sideritis romana sans statuer sur son interprétation (de Foucault, 2025, tableau 9). Le tableau 2 en présente trois nouveaux (tous proviennent de Grabels, sous les Hauts de Fontcaude), ce qui confirme la répétitivité de sa composition floristique ; la colonne A synthétise ces trois nouveaux relevés, la colonne B synthétise les cinq relevés publiés en 2025, la colonne C donne la présence de ces huit relevés. On propose le statut d’association à ce groupement : Medicagini minimae–Sideritidetum romanae ass. nov. hoc loco, typus nominis hoc loco : relevé 3 du tableau 2 hoc loco publié ici :
Grabels (Hérault), sous les Hauts de Fontcaude, N 43° 38’ 09,9’’, E 3° 47’ 59,5’’, 113 m, 14/05/2026, 40 %, 4 m², 25 taxons
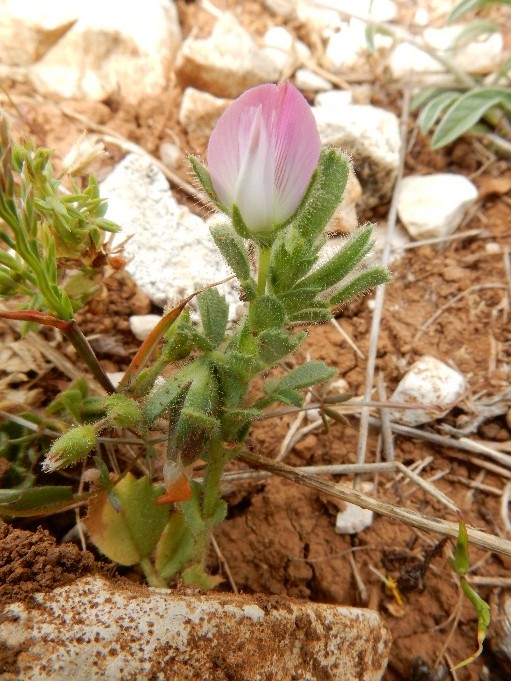
- Stipellulo capensis-Brachypodietea distachyi: Sideritis romana 2, Medicago minima 2, Malva setigera 2, Arenaria leptoclados 2, Galium parisiense 2, Cerastium pumilum 2, Linum strictum 2, Alyssum alyssoides 2, Filago pyramidata 1, Ononis reclinata (photo 5) 1, Lysimachia linum-stellatum 1, Catapodium rigidum 1, Petrorhagia prolifera 1, Campanula erinus 1, Plantago afra 1, Xeranthemum inapertum +, Valerianella discoidea +, Valantia muralis +, Clypeola jonthlaspi +,
- Onopordion illyrici : Carduus pycnocephalus 1,
- autres taxons : Bromus madritensis 2, Avena barbata 1, Erodium cicutarium *c. 1, Urospermum picroides +, Scandix pecten-veneris *p. +.
On complète cette donnée avec celle d’un nouveau relevé du Sileno italicae-Vincetoxicetum nigri décrit dans la même publication de 2025 :
Grabels (Hérault), sous les Hauts de Fontcaude, N 43° 38’ 15,6’’, E 3° 48’ 23,9’’, 62 m, 14/05/2026, 50 %, 2 m², 13 taxons
- Brachypodium retusum 2, Hippocrepis scorpioides 2, Lotus dorycnium 2, Teucrium chamaedrys 1, Vincetoxicum nigrum +, Silene italica +, Stachys recta *r. +, Rubia peregrina +,
- autres taxons : Quercus ilex j 2, Asparagus acutifolius 1, Silene vulgaris *v. 1, Smilax aspera +, Cephalaria leucantha +
et avec celle d’un nouveau relevé du Geranietum columbino-purpurei décrit aussi dans la même publication de 2025 :
Grabels (Hérault), sous les Hauts de Fontcaude, N 43° 38’ 11,6’’, E 3° 47’ 56,1’’, 115 m, 14/05/2026, 30 %, 0,5 m², 6 taxons
- Cardaminetea hirsutae: Geranium columbinum 2, purpureum 1, Crepis micrantha 1,
- autres taxons : Bromus madritensis 2, Carduus pycnocephalus 1, Ervum tetraspermum +.
En 1952 (p. 166-168), Braun-Blanquet et al. publiaient le Phleo-Sedetum anopetalae, association de plaine languedocienne (vers 230 m d’altitude) biologiquement complexe où l’on peut séparer
- une composante vivace (tableau 3 : colonnes 1a, alkannetosum tinctoriae Braun-Blanquet et al. 1952, et 1b, alyssetosum serpyllifolii Braun-Blanquet et al. 1952), qu’on ne peut valider ici comme association nouvelle car les données sources sont synthétiques ;
- une composante thérophytique (tableau 4 : colonnes 1a et 1b), qu’on ne peut pas plus valider ici pour la même raison.
La colonne 2 issue de la même publication est l’Armerietum junceae Braun-Blanq. ex Braun-Blanq. et al. 1952, muté ici en Armerietum girardii.
Les colonnes 3a et 3b ont été décrites par Braun-Blanquet & Braun-Blanquet (1971, tableau 5) à nouveau comme un Armerietum junceae pourtant bien distinct de celui de la colonne 2, avec des taxons endémiques des Causses comme Thymus dolomiticus, Teucrium rouyanum, un Festuca malheureusement non redéterminé entre F. christianii-bernardii et F. fabrei : Fumano viridis–Arrmerietum girardii (Braun-Blanq. & Braun-Blanq. 1971) ass. nov. hoc loco, typus nominis hoc loco : composante cryptophyto-chaméphytique du relevé 7 du tableau 5 in Braun-Blanquet & Braun-Blanquet (1971, Vegetatio 22 (4-5) hors texte, en remplaçant Helianthemum pilosum par Fumana viridis). À côté du typicum (colonne 3a), on peut distinguer (colonne 3b) le petrosedetosum sediformis subass. nov. hoc loco, typus nominis hoc loco : composante cryptophyto-chaméphytique du relevé 28 du tableau 5 in Braun-Blanquet & Braun-Blanquet (1971, Vegetatio 22 (4-5) hors texte). La végétation thérophytique associée (tableau 4 : colonnes 3a et 3b) apparaît intermédiaire entre les colonnes 1 et 4.
Antérieurement à ces publications de Braun-Blanquet, Liou Tchen-Ngo (1929) publiait le résultat de ses recherches (menées entre 700 et 900 m d’altitude) sur les Causses, avec un tableau XI détaillé d’une association dolomiticole à Arenaria aggregata et Armeria juncea valide et que l’on peut renommer Armerio girardii-Arenarietum aggregatae Liou Tchen-Ngo 1929, reprise en colonne 4 du tableau 3 pour montrer sa forte différenciation vis-à-vis de l’association languedocienne ; en particulier, comme en 3a et 3b, un Festuca n’est pas précisément défini entre deux espèces plus ou moins sympatriques. La végétation thérophytique associée à cette association caussenarde est reprise en colonne 4 du tableau 4 et définie ici comme Anthyllido rubriflorae-Cerastietum pumili ass. nov. hoc loco, typus nominis hoc loco : composante thérophytique du relevé X du tableau XI in Liou Tchen-Ngo (1929, Arch. Bot. III, mémoires : 158-159), association que l’on peut inclure dans les Cerastietalia semidecandri Glowacki 1988, au sein des Stipellulo capensis-Brachypodietea distachyi. Des colonnes 1 à la colonne 4, le tableau 3 paraît en définitive décrire un étagement altitudinal depuis la plaine languedocienne (1a, 1b et 2) aux Causses méridionaux (3a et 3b) et au cœur des Causses (4).
On peut rapprocher de telles végétations celles que l’on peut observer dans les interstices de trottoir et autres lieux piétinés et relevant souvent des Polygono-Poetea annuae. En particulier, le Trago racemosi-Euphorbietum prostratae a été décrit initialement de l’Aude (de Foucault, 2018b), puis retrouvé ultérieurement dans l’Hérault (de Foucault, 2024). Malgré diverses recherches, cette association n’avait pas été rencontrée lors de mes investigations sur le territoire de Grabels (de Foucault, 2025) ; c’est maintenant chose faite avec le relevé suivant :
Grabels, rond-point du chemin du Mas-de-Matour ´ chemin du Riviéral ´ rue Alphonse-Daudet, N 43° 39’ 16’’, E 3° 47’ 10,5’’, 61 m, le 26 septembre 2026, 25 %, 5 m², 6 taxons
Euphorbia prostrata 2, Portulaca oleracea 1, Catapodium rigidum 1, Tragus racemosus +, Heliotropium europaeum +, Setaria sp. +.
Un autre a été observé sur la même commune, rue de la Gerbe (cour de la salle de la Gerbe, N 43° 38’ 55,1’’, E 3° 47’ 54,3’’, 65 m, le 12 septembre 2026), mais réduit à quatre taxons, dont les deux taxons éponymes.
4. Un nouvel ourlet à Paeonia officinalis subsp. microcarpa
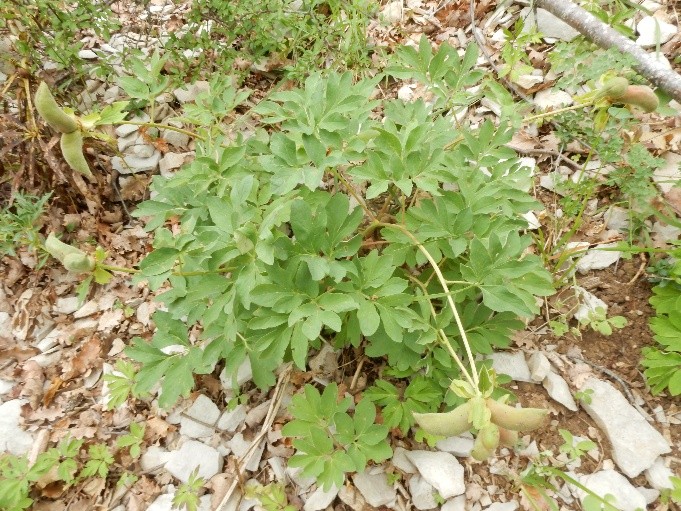
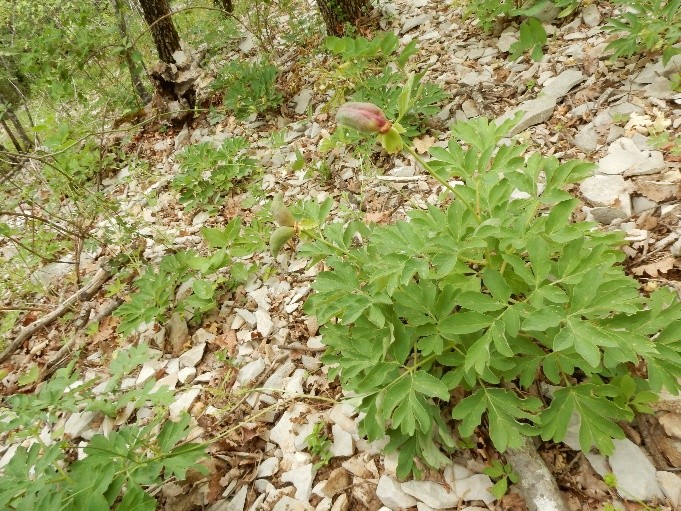
En 2021, je décrivais un ourlet de l’Hérault occidental, en limite du département de l’Aude, à Paeonia officinalis subsp. microcarpa (photo 6), le Polygonato odorati-Paeonietum officinalis B. Foucault 2021, malheureusement sur un unique relevé. En 2026, j’ai eu l’occasion d’étudier une strate herbacée vivace d’une chênaie pubescente ouverte caractérisée par ce même taxon :
Vissec (Gard), bord de la D 113, sur pente calcaire ébouleuse exposée au nord, N 43° 54’ 04,1’’,
E 3° 28’ 08,5’’, 557 m, 02/06/2026, 50 %, 60 m², 25 taxons, photo 7
- Trifolio-Geranietea sanguinei: Paeonia officinalis *microcarpa 3, Polygonatum odoratum 3, Galium album 2, Helleborus foetidus 2, Brachypodium rupestre *r. 2, Melittis melissophyllum *m. 2, Rubia peregrina 2, Thalictrum minus *m. 1, Centaurea pectinata 1, Campanula glomerata 1, Vicia tenuifolia +, Cephalanthera rubra +, Daphne laureola +,
- jeunes ligneux : Sorbus aria j 2, Acer monspessulanum j 1, Quercus pubescens j 1, Cytisophyllum sessilifolium j +,
- autres taxons : Ranunculus bulbosus 2, Anemone nemorosa 2, Hieracium murorum 2, Aristolochia rotunda +, Clematis flammula +, Lotus dorycnium +, Laserpitium gallicum +, Coronilla minima *m. +.
La comparaison avec le Polygonato-Paeonietum microcarpae ouest-héraultais montre une réelle affinité floristique, mais des différences notables empêchent de l’y rattacher. Il faudrait donc poursuivre les investigations sur ces communautés dans l’Hérault pour statuer.
Alors que la végétation arborescente accueille Quercus pubescens, Sorbus aria, Acer monspessulanum, la végétation arbustive du sous-bois correspond au relevé suivant (15 taxons) :
- Rhamno-Prunetea spinosae: Cornus sanguinea *c. 3, Prunus spinosa 2, mahaleb 2, Rosa canina 2, Crataegus monogyna 2, Lonicera etrusca 2, Rubia peregrina 1, Cornus mas (photo 8) 1, Rhamnus saxatilis 1, Cytisophyllum sessilifolium +, Clematis vitalba +,
- jeunes ligneux : Sorbus aria j 3, Acer monspessulanum j 2, Quercus pubescens j 2,
- autre taxon : Clematis flammula
D’une manière générale les ourlets à Pivoines sont fort peu étudiés en France. En Haute-Marne, Royer et al. (2006) évoquent P. mascula dans le « Lithospermo purpurocaerulei-Quercetum petraeae », plus précisément dans une végétation herbacée vivace intraforestière pouvant se rattacher au Seslerio caeruleae-Mercurialion perennis Gillet ex Gillet & B. Foucault in B. Foucault 2020. Ceux de Corse à P. corsica ou P. morisii ne sont pas plus décrits.
5. Un boisement pionnier centre-européen
D’Autriche, Exner et Willner (2004) ont étudié des boisements pionniers à Betula pendula correspondant à la végétation suivante (sur 52 relevés) : Betula pendula V, Picea abies IV, Populus tremula III, Sorbus aucuparia *a. III, Acer pseudoplatanus II, Fraxinus excelsior II, Salix appendiculata II, Larix decidua II. Elle relève du groupe des associations arborescentes pionnières héliophiles associant B. pendula à un Pinus, telles que le Betulo pendulae-Pinetum sylvestris B. Foucault 2018, le Betulo pendulae-Pinetum laricionis (Gamisans 1977) B. Foucault 2020 de Corse, le Pino uncinatae-Betuletum pendulae B. Foucault in B. Foucault et al. 2021 des Pyrénées orientales (de Foucault, 2018a, 2020 ; de Foucault et al., 2021). On peut définir ici le Piceo abietis-Betuletum pendulae ass. nov. hoc loco d’Europe centrale, qui atteint sans doute les Alpes occidentales, typus nominis hoc loco : composante arborescente du relevé 20 du tableau 3 in Exner & Willner (2004, Hacquetia 3 (1) : 40-44), où Picea abies remplace les Pinus.
6. Des forêts du nord-est de l’Ukraine
On doit à Goncharenko (2001) une importante contribution à la connaissance des forêts du nord-est de l’Ukraine, reprise ici selon le paradigme synusial.
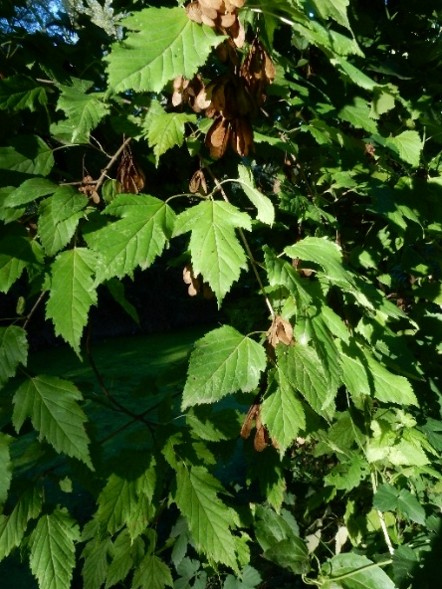
Le tableau 5 en reprend la végétation arborescente. Les colonnes 1 à 4 (25 relevés) décrivent une tillaie-chênaie-érablière, le Tilio cordatae-Quercetum roboris ass. nov. hoc loco, typus nominis hoc loco : composante arborescente du relevé 8 du tableau 1 in Goncharenko (2001, Ukr. Phytosoc. Col. A, 1 (17) : 5-7). Avec Acer tataricum (photo 9), les colonnes 5 et 6 (19 relevés) correspondent à l’Aceri tatarici-Quercetum roboris ass. nov. hoc loco, typus nominis hoc loco : composante arborescente du relevé 31 du tableau 2 in Goncharenko (2001, Ukr. Phytosoc. Col. A, 1 (17) : 8-11). Les colonnes 7 à 9 décrivent des pinèdes pionnières riches en bouleaux, affines des Betulo pubescentis-Pinetum sylvestris B. Foucault 2018 et Betulo pendulae-Pinetum sylvestris B. Foucault 2018 (de Foucault, 2018a).
On ne s’appesantira pas sur la végétation arbustive intraforestière qui est assez fragmentaire ; potentiellement, il doit y exister des fourrés à Euonymus verrucosus (surtout tableau 2 de l’auteur russe) et d’autres à Frangula alnus (tableaux 2 et 3).
En revanche, la végétation herbacée vivace (tableau 6) paraît d’un grand intérêt. Une césure majeure passe entre les colonnes 5 et 6.
Le premier grand ensemble est caractérisé par le GS à Asarum europaeum et on y trouve quelques géophytes vernales, dont des Gagea, Scilla siberica, Anemone ranunculoides…, ce qui le rend homologue de la végétation du Scillion bifoliae Gillet ex Gillet & B. Foucault in B. Foucault 2020 décrit d’Europe occidentale (de Foucault, 2020). La colonne 1 présente quelques taxons des Cardamino amarae-Chrysosplenietalia alternifolii Hinterlang ex B. Foucault 2018, dont les deux taxons éponymes de l’ordre ; il pourrait donc y avoir là une mégaphorbiaie à Filpendula ulmaria, Athyrium filix-femina, Dipsacus pilosus, Carex elongata, Geum rivale, Chaerophyllum bulbosum… côtoyant une microphorbiaie à Chrysosplenium alternifolium. La colonne 2 peut être définie comme Gageo minimae-Dryopteridetum filicis-maris ass. nov. hoc loco, typus nominis hoc loco : composante herbacée vivace du relevé 7 du tableau 1 in Goncharenko (2001, Ukr. Phytosoc. Col. A, 1 (17) : 5-7). La colonne 3 est identifiée comme Corydalido solidae-Caricetum pilosae ass. nov. hoc loco, typus nominis hoc loco : composante herbacée vivace du relevé 23 du tableau 1 in Goncharenko (2001, Ukr. Phytosoc. Col. A, 1 (17) : 5-7). Tout cet ensemble formé par les colonnes 1 à 5, caractérisé par Scilla siberica, Asarum europaeum, Glechoma hirsuta, Pulmonaria obscura, Mercurialis perennis, Lamium maculatum, Aegopodium podagraria, Allium ursinum, Gagea minima, G. lutea, Corydalis solida, Anemone ranunculoides, possède la valeur d’une alliance originale homologue du Scillion bifoliae, le Glechomo hirsutae-Scillion sibericae all. nov. hoc loco, typus nominis hoc loco : le Gageo minimae-Dryopteridetum filicis-maris nov.
Le second grand ensemble rassemble les colonnes 6 à 9 du tableau 5, les colonnes 6 et 7 partageant le GS à Oreoselinum nigrum. La colonne 6 peut être isolée comme l’ourlet de l’Asperulo tinctoriae-Oreoselinetum nigri ass. nov. hoc loco, typus nominis hoc loco : composante herbacée vivace du relevé 38 du tableau 2 in Goncharenko (2001, Ukr. Phytosoc. Col. A, 1 (17) : 8-11). On peut mettre aussi en exergue la colonne 8, avec Carex ericetorum : Chamaecytiso ruthenici-Caricetum ericetorum ass. nov. hoc loco, typus nominis hoc loco : composante herbacée vivace du relevé 64 du tableau 3 in Goncharenko (2001, Ukr. Phytosoc. Col. A, 1 (17) : 12-15). La colonne 9 est une végétation herbacée vivace oligotrophile mésohygrophile paraissant homologue du Carici pallescentis-Agrostietum caninae B. Foucault 2023 ouest-européen (de Foucault, 2023c) : Carici pallescentis-Juncetum effusi ass. nov. hoc loco, typus nominis hoc loco : composante herbacée vivace du relevé 46 du tableau 3 in Goncharenko (2001, Ukr. Phytosoc. Col. A, 1 (17) : 12-15). Provisoirement, on peut rapprocher cette association centre-est-européeene du Junco conglomerati-Molinienion caeruleae (V. Westh. 1969) B. Foucault 2023.
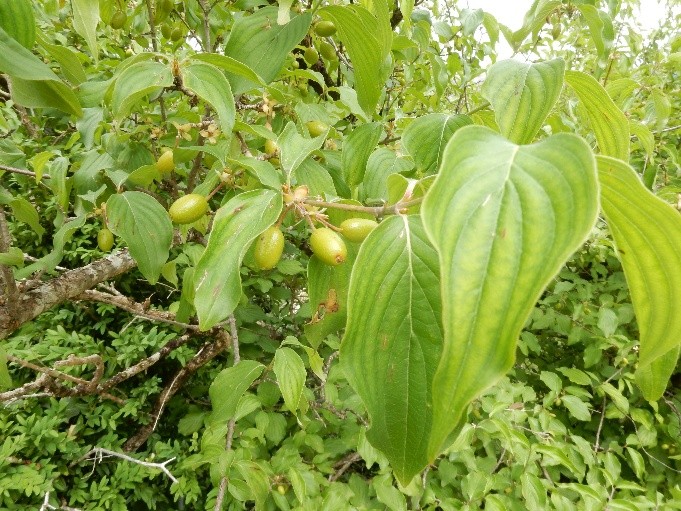
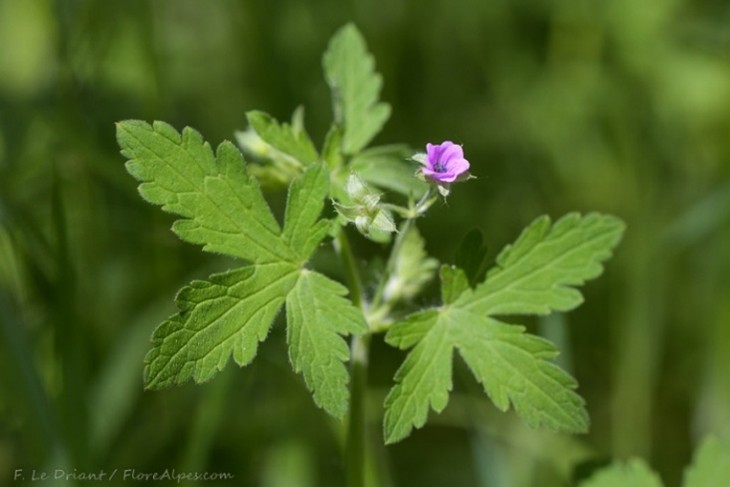
Parfois, il existe enfin une végétation thérophytique (tableau 7), dont une à Impatiens noli-tangere (colonnes 1 à 3 ; Geranio robertiani-Impatientetum noli-tangere B. Foucault 2023 ?, Galio aparines-Impatiention noli-tangere B. Foucault 2026). La colonne 4 est originale avec Geranium divaricatum (photo 10) et Myosotis sparsiflora, la 5 l’étant avec Viola tricolor subsp. matutina et Moehringia trinervia.
À propos de végétations du Molinion caeruleae, on peut revenir sur le Trollio europaei-Molinietum caeruleae Guin. in Guin. & G. Lemée 1950 car le nom de Molinio caeruleae-Trollietum europaei a été illégitimement repris par Kopeina & Koroleva (2023 : 96) pour nommer une association décrite de la presqu’île de Kola et offrant la composition floristique suivante (sur 8 relevés) :
- Molinion caeruleae et unités supérieures : Molinia caerulea V, Dianthus superbus V, Bartsia alpina IV,
- taxons de pelouses oligotrophiles (Caricetea curvulae) : Achillea apiculata V, Anthoxanthum nipponicum V, Omalotheca norvegica V, Rubus saxatilis V, Avenella flexuosa *f. V, Euphrasia frigida V, Viola canina *c. V, Campanula rotundifolia V, Hieracium nigrescens IV, Nardus stricta IV, Saussurea alpina IV, Bistorta vivipara III, Juncus trifidus III, Potentilla erecta III, Agrostis mertensii III, Veronica alpina II, Poa alpina II, Epilobium lactiflorum II, hornemannii II, Viola biflora II, Pilosella peleteriana *subpeleteriana II, Antennaria dioica II, Carex bigelowii II, Oxytropis sordida II,
- taxons de mégaphorbiaie : Trollius europaeus V, Geranium sylvaticum V, Cirsium heterophyllum IV, Angelica sylvestris *s. IV,
- taxons de lande boréale : Vaccinium myrtillus V, uliginosum s. l. IV, V. vitis-idaea II, Calluna vulgaris II, Betula nana II, Juniperus communis *saxatilis II,
- autres taxons : Melica nutans V, Festuca ovina V, Solidago virgaurea *v. V, Chamaenerion angustifolium IV,
et des taxons de présence I. On voit que cette association s’avère plutôt une pelouse boréo-arctique enrichie en quelques taxons hygrophiles, sans doute sous l’effet d’une humidification édaphique, peut-être aussi en lien avec une lande elle-même boréo-arctique à Vaccinium sp. pl. et avec un fourré subarctique à Betula pubescens var. pumila, Cotoneaster cinnabarinus, Salix lanata, S. phylicifolia, S. borealis / myrisinifolia subsp. borealis. Il serait d’un grand intérêt de reprendre l’identification de la fétuque du groupe ovina. Quoi qu’il en soit, avant de renommer ce syntaxon, il conviendrait d’en relever des formes typicum, qui s’opposeraient à celui-ci qui en serait alors une variation molinietosum caeruleae.
7. Un boisement de Chine du Nord-Est
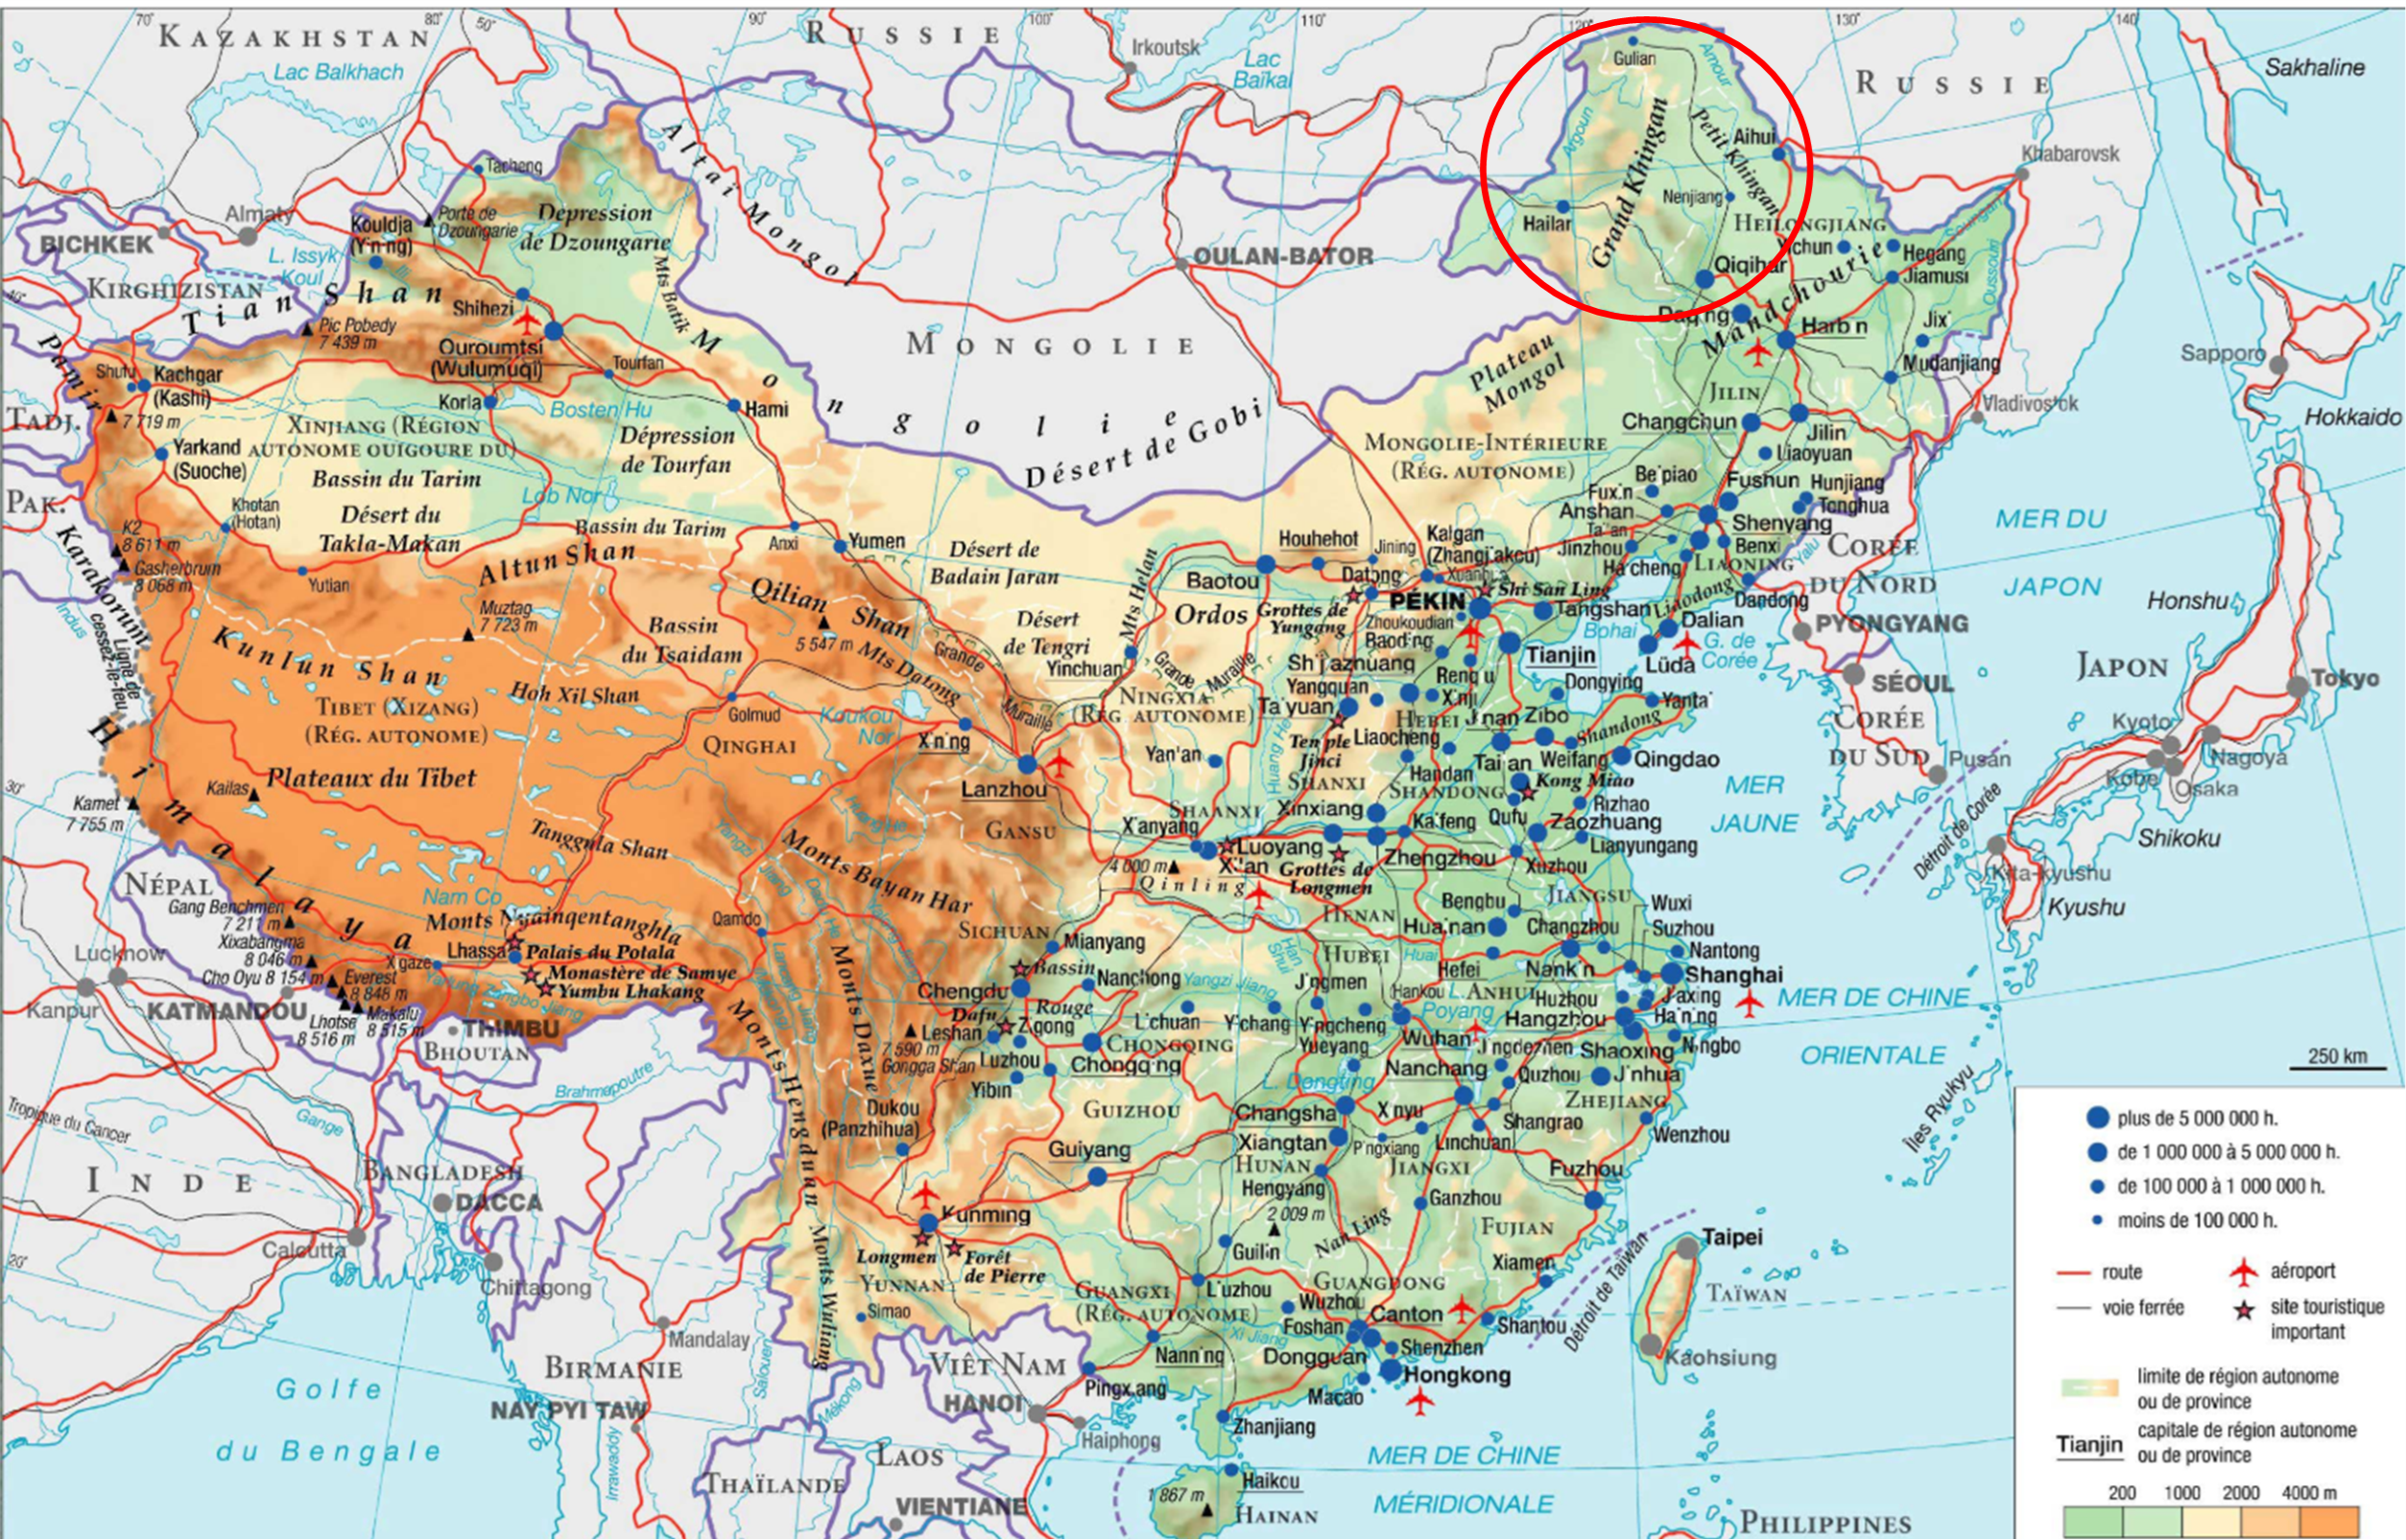
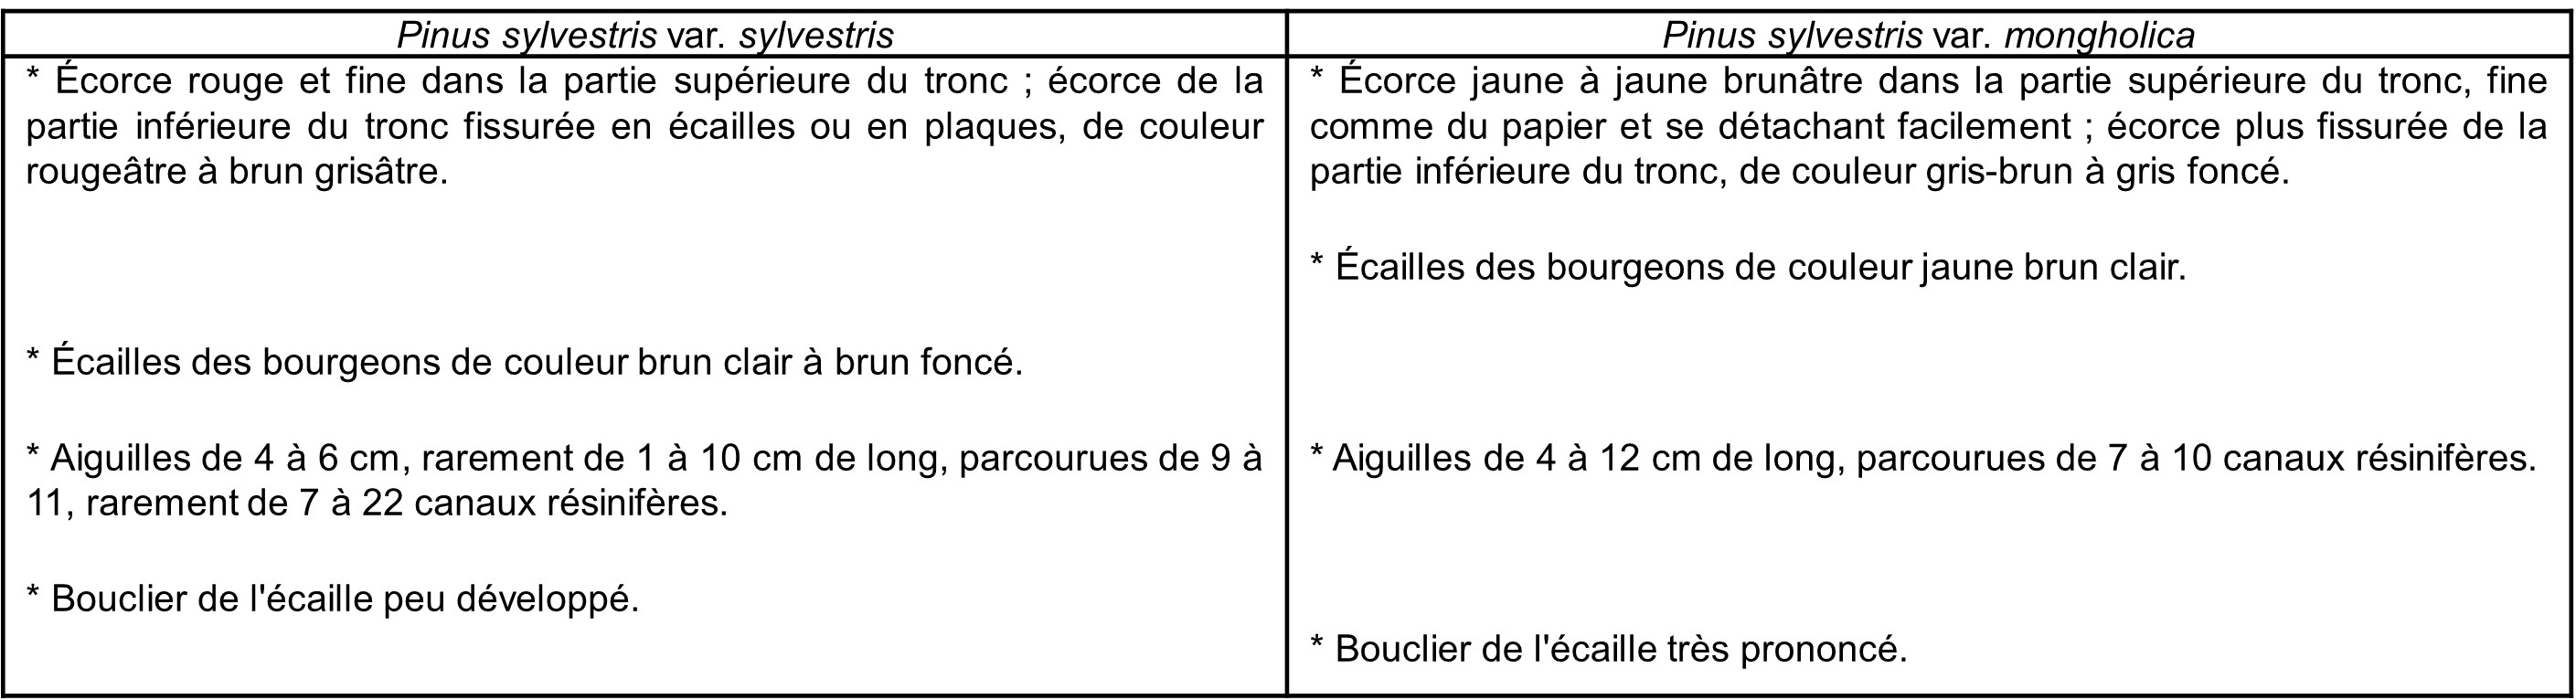
Le long de la frontière avec la Russie, dans l’extrême nord-est de la Chine, en Mongolie-Intérieure, la province de Daxing’anling héberge la chaîne montagneuse du Khingan qui culmine à 2 035 m (carte 1). Zhiqiang Zhou (2000) a soutenu une thèse sur les pinèdes de ce massif, caractérisées par la var. mongholica de Pinus sylvestris, se distinguant de la var. sylvestris par des traits résumés dans le tableau 8.
L’auteur a réuni 188 relevés phytosociologiques dans un tableau placé en annexe 2 de la thèse, malheureusement réparti sur… trente-six pages, ce qui n’a pas facilité son traitement. Quoi qu’il en soit, on peut au moins distinguer :
- une végétation arborescente (B1) : sylvestris *mongholica V, Larix gmelinii IV, Betula pendula *mandshurica II, Populus tremula (incl. P. davidiana) +, décrivant le Larici gmelinii-Pinetum mongholicae ass. nov. hoc loco, typus nominis hoc loco: composante arborescente (B1) du relevé 200 124 (non localisé) du tableau in Zhiqiang Zhou (2000, Kiefernwälder im Daxinganling-Gebirge… annexe 2) retranscrit ici (3 taxons) : Pinus sylvestris * mongholica B, Larix gmelinii B, Betula pendula *mandshurica (sub B. platyphylla) A ;
- une végétation arbustive (B2 + S) : Rhododendron dauricum IV, Betula pendula *mandshurica j III, Pinus sylvestris *mongholica j III, Larix gmelinii j III, Alnus mandshurica j III, Clematis macropetala II, Populus tremula j II, Quercus mongolica j +, Betula dahurica j +, Picea koraiensis j + et des taxons de présence r ; la présence de formes juvéniles de quatre nouveaux arbres permet d’un côté de compléter la définition de la végétation arborescente potentielle ; d’un autre côté, on peut définir ici le Clematido macropetalae-Rhododendretum daurici nov. hoc loco, typus nominis hoc loco: composante arbustive (B2 + S) du relevé 550 115 (non localisé) du tableau in Zhiqiang Zhou (2000, Kiefernwälder im Daxinganling-Gebirge… annexe 2) retranscrit ici (6 taxons) : Rhododendron dauricum R, Clematis macropetala +, Betula pendula *mandshurica j (sub B. platyphylla) A, Larix gmelinii j B, Alnus mandshurica j 1, Picea koraiensis j +, (et hors relevé : Rosa davurica 1, Clematis alpina *sibirica R).
Dans son tableau 12, l’auteur cite les coefficients classiques d’abondance-dominance de Braun-Blanquet, mais n’indique pas la signification des coefficients utilisés dans son annexe et repris ici dans les relevés types.
8. Des peupleraies d’Asie
L’Amu Darya est une rivière d’Asie qui prend sa source dans le Pamir, baigne l’Ouzbekistan et se jette dans la mer d’Aral. Korolyuk et al. (2025, tableaux 2 et 3) ont décrit des peupleraies qui en colonisent le lit majeur :
- en végétation arborescente le Populetum pruinosae Nowak et al. 2017 ;
- en végétation arbustive (sur 48 relevés) : Tamarix ramosissima V, Elaeagnus angustifolia IV, Tamarix hispida III, Cynanchum acutum *a. III, Caragana halodendron (Fabaceae) III, Alhagi psudoalhagi (Fabaceae) III, Clematis orientalis +, Halostachys caspia (Amaranthaceae) II, Tamarix hohenackeri r, Sophora alopecuroides r, décrivant l’Elaeagno angustifoliae-Tamaricetum ramosissimae ass. nov. hoc loco, typus nominis hoc loco: composante arbustive du relevé 10 du tableau 2 in Korolyuk et al. (2025, Turczaninowia 28 (2) : 55-56) ; floristiquement, cette association ne peut se rattacher aux Nerio oleandri-Tamaricetea africanae Braun-Blanq. & O. Bolòs 1958, mais peut être rapprochée des Tamaricetea arceuthoidis Akhani & Mucina 2015 (Akhani & Mucina, 2015) ;
- en végétation basse intraforestière, deux groupements à Glycyrrhiza glabra (respectivement d’après le tableau 2, soit 48 relevés, et les relevés 13 à 24 du tableau 3, soit 12 relevés)
- G. glabra V, Phragmites australis IV, Aeluropus littoralis IV, Asparagus brachyphyllus II, Apocynum venetum (Apocynaceae) II, Calamagrostis pseudophragmites I, Tripidium ravennae +, soit l’Asparago brachyphylli-Glycyrrhizetum glabrae ass. nov. hoc loco, typus nominis hoc loco: composante herbacée vivace du relevé 13 du tableau 2 in Korolyuk et al. (2025, Turczaninowia 28 (2) : 55-56) ;
- Zygophyllum oxianum (Zygophyllaceae) V, Limonium otolepis IV, Leymus multicaulis IV, glabra IV, Aeluropus littoralis III, Sphaerophysa salsula (Fabaceae) I, Phragmites australis I, Apocynum venetum +, soit le Limonio otolepidis-Zygophylletum oxiani ass. nov. hoc loco, typus nominis hoc loco: composante herbacée vivace du relevé 13 du tableau 3 in Korolyuk et al. (2025, Turczaninowia 28 (2) : 59-60).
Une végétation thérophytique paucispécifique associée à ce dernier est caractérisée par Suaeda altissima (V), Atriplex belangeri (II) et un Lappula non déterminé (+).
De leur côté, Świerszcz et al. (2021, tableau E3 : relevés 206 à 208 et 210 à 212) décrivent un fourré distinct de l’Elaeagno–Tamaricetum ramosissimae précédent (sur 6 relevés) : Tamarix ramosissima V, Alhagi pseudoalhagi *kirghisorum V, Lycium ruthenicum II : Alhagio kirghisorum-Tamaricetum ramosissimae ass. nov. hoc loco, typus nominis hoc loco : composante arbustive du relevé 212 du tableau E3 in Świerszcz et al. (2021, Tuexenia 41 hors texte) ; les relevés 205, 209, 214 et 216 de ce même tableau E3 appartiennent plutôt à l’Elaeagno–Tamaricetum ramosissimae.
Du nord-est du Kazakhstan (vallée de l’Irtysh), Taran (2005, tableau p. 87-88) décrit des ripisylves se réduisant à Salix alba d’un côté (relevés 1 à 3), à Populus alba et P. nigra d’un autre (relevés 4 à 8 et 10 à 16). Les fourrés associés sont mieux caractérisés, repris dans le tableau 9 hoc loco. Laissant de côté la colonne 1 statistiquement mal définie, la colonne 2 peut être décrite comme Rubio dolichophyllae-Caraganetum halodendri ass. nov. hoc loco, typus nominis hoc loco : composante arbustive du relevé 5 du tableau in Taran (2005, Veg. Russia 7 : 87-88). La colonne 3 est plutôt l’Humulo lupuli-Rosetum acicularis ass. nov. hoc loco, typus nominis hoc loco : composante arbustive du relevé 11 du tableau in Taran (2005, Veg. Russia 7 : 87-88), association manifestement vicariante du Rhamno catharticae-Viburnetum opuli B. Foucault 1991 ouest-européen (de Foucault, 1991).
9. Des boisements de l’Illinois
Sur la base de six forêts, Taft et al. (1995) ont apporté des données sur des boisements de l’Illinois, un État du centre-est des États-Unis (capitale : Springfield, plus grande ville : Chicago). Ils ont clairement distingué les strates de ce complexe forestier.
La strate arborescente est ainsi constituée (sept espèces de Quercus) : Quercus stellata V, Q. marilandica V, Q. velutina V, Q. alba V, Carya ovata (Juglandaceae) V, C. tomentosa IV, Ulmus rubra IV, Quercus imbricaria IV, Q. palustris III, Q. rubra III, Sassafras albidum (Lauraceae) III, Prunus serotina III, Carya texana II, qui définit le Caryo ovatae-Quercetum stellatae ass. nov. hoc loco, typus nominis hoc loco : composante arborescente (tree stratum) du relevé JS du tableau 1 in Taft et al. (1995, J. Veg. Sci. 6 : 652). La végétation arbustive du sous-bois est surtout constituée de jeunes arbres de la canopée supérieure, mais on y trouve deux taxons spécifiques : Rubus allegheniensis (V) et Toxicodendron radicans (IV), qui permettent de décrire le Toxicodendro radicantis-Rubetum allegheniensis ass. nov. hoc loco, typus nominis hoc loco : composante arbustive (shrub/sapling stratum) du relevé WC du tableau 1 in Taft et al. (1995, J. Veg. Sci. 6 : 653) ; on peut noter la bonne représentation de Diospyros virginiana (V), potentiellement arborescent mais non cité dans la strate supérieure. Quant à la strate herbacée, elle accueille des formes juvéniles des végétaux des strates supérieures (Q. stellata, Q. imbricaria, Q. velutina, Q. marilandica, C. ovata, S. albidum, P. serotina pour les arbres, R. allegheniensis, T. radicans pour les arbustes), mais forme un élément herbacé bien caractérisé par ailleurs : Parthenocissus quinquefolia V, Vitis aestivalis V (deux taxons grimpant sur les arbustes ?), Helianthus microcephalus V, Cinna arundinacea (Poaceae) V, Agrostis perennans V, Dichanthelium acuminatum (Poaceae) V, Pycnanthemum tenuifolium (Lamiaceae) V, Eleocharis tenuis var. verrucosa V, Rubus flagellaris IV, Carex festucacea V, C. albicans V, C. hirsutella IV, C. caroliniana IV, Potentilla simplex IV, Parthenium integrifolium (Asteraceae) III, Amphicarpaea bracteata (Fabaceae) III (grimpant ?), Gillenia stipulata (Rosaceae) III, Carex cf. glaucescens (sub C. glaucoidea) III, C. pensylvanica II, Danthonia spicata II, Comandra umbellata (Santalaceae) I : Pycnanthemo tenuifolii–Cinnetum arundinaceae ass. nov. hoc loco, typus nominis hoc loco : composante herbacée vivace (ground-cover stratum) du relevé RW du tableau 1 in Taft et al. (1995, J. Veg. Sci. 6 : 653) ; il faudra peut-être isoler une composante thérophytique, ici réduite à deux taxons : Acalypha gracilens (Euphorbiaceae) V et Paronychia fastigiata II.
10. En randonnant dans les Cévennes méridionales
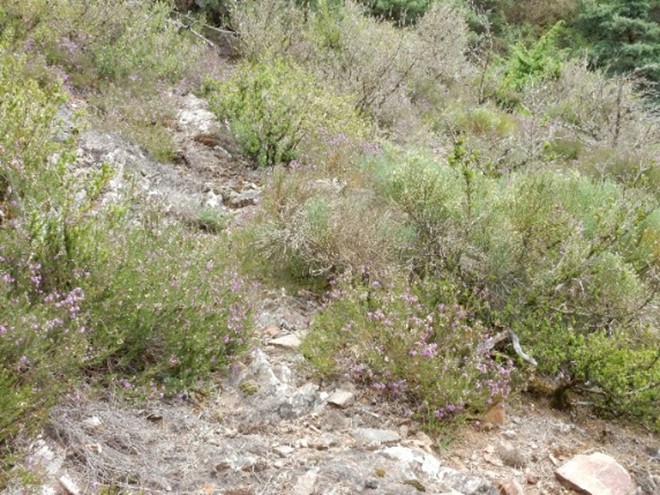
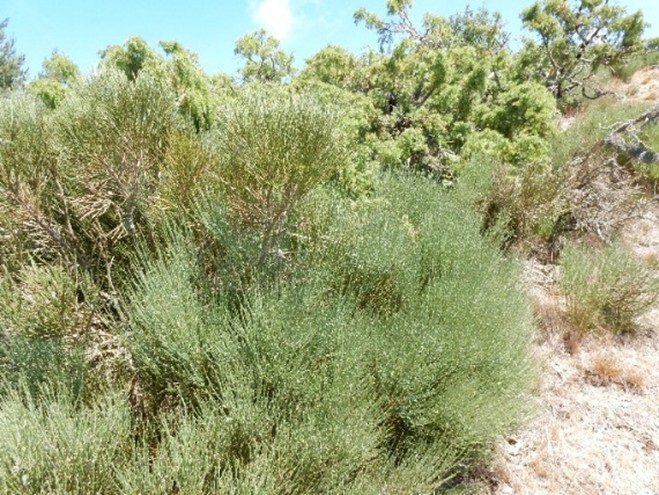
En randonnant dans les alentours de Dourbies (Gard) le 7 juin 2026, j’ai rencontré quelques associations végétales décrites plus à l’ouest, sans avoir eu le temps de les relever : l’Umbilico rupestris-Cystopteridetum fragilis B. Foucault 2022 (Dourbies, Le Mourier, chemin du Mas, vers N 44° 04’ 08,1’’, E 3° 26’ 14,2’’, 863 m) initialement décrit de la Montagne Noire (de Foucault, 2022b, 2023b), la lande du Cytiso oromediterranei-Ericetum cinereae B. Foucault 2017 et le fourré du Junipero communis-Cytisetum oromediterranei B. Foucault 2017 décrits du Haut-Languedoc (Trèves, Mamorel, D 710, vers N 44° 04’ 30,5’’, E 3° 24’ 21,2’’, 1 000 m ; de Foucault, 2017 ; photos 11 et 12).
11. Un pré oligohalophile du Languedoc
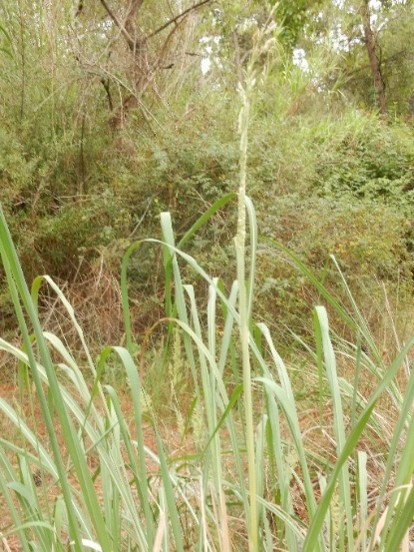
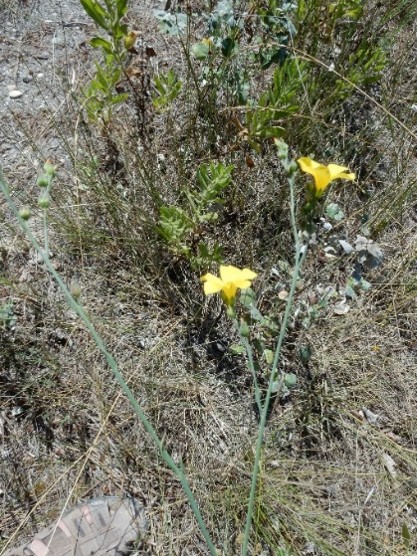
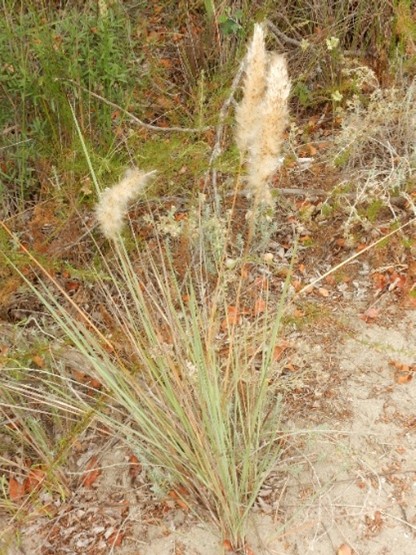
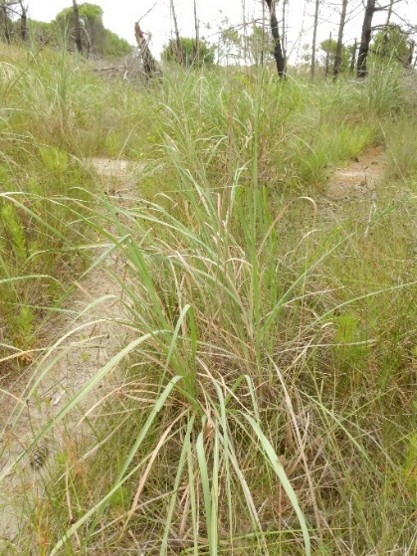
L’alliance de l’Imperato cylindricae-Tripidion ravennae Braun-Blanq. & O. Bolòs 1957 rassemble de hautes prairies oligohalophiles méditerranéennes à Tripidium ravennae (= Erianthus ravennae ; photo 13). Elle est peu étudiée en France méridionale, j’en livre ci-dessous un relevé où apparaît le rare Linum maritimum (photo 14) :
Mauguio (34) avenue du Grand-Travers, lido de l’Or, N 43° 33’ 27’’, E 4° 02’ 04,74’’, le 16 juillet 2026, 80 %, 50 m², 17 taxons, photo 16
- Imperato-Tripidion ravennae et unités supérieures : Tripidium ravennae 3, Scirpoides holoschoenus 3, Schoenus nigricans 3, Linum maritimum 2, Imperata cylindrica (photo 15) 2, Juncus acutus 1, maritimus +, Lotus jordanii +,
- autres taxons : Dittrichia viscosa 2, Osyris alba 2, Rubus ulmifolius 2, Agrostis stolonifera *s. 2, Phillyrea angustifolia j 2, Clematis flammula 1, Samolus valerandi +, Ononis ramosissima +, Juncus subnodulosus + ;
cette combinaison floristique semble bien correspondre à l’Holoschoenetum romani cité par Braun-Blanquet et al. (1952 : 120) où I. cylindrica, Linum maritimum et Lotus jordanii sont bien représentés. Noble et Barret (2019 : 49) le rattachent à l’Eriantho ravennae-Schoenetum nigricantis (Pignatti 1953) Géhu in Géhu et al. 1984 italien, qui semble cependant bien différent (Juncus littoralis, Eupatorium cannabinum, Pulicaria dysenterica, Sonchus maritimum, Euphrasia kerneri, peu d’Imperata cylindrica ; Géhu et al., 1984). À la place du nom fort peu expressif de 1952, on peut peut-être plutôt utiliser celui de Molinier & Tallon (1965 : 56), l’Imperato cylindricae-Erianthetum ravennae, muté ici en Imperato cylindricae-Tripidietum ravennae nom. mut. hoc loco.
Bibliographie
Akhani H. & Mucina L., 2015. The Tamaricetea arceuthoidis: a new class for the continental riparian thickets of the Middle East, Central Asia and the subarid regions of the Lower Volga valley. Lazaroa 36 : 61-66.
Braun-Blanquet J., 1936. Un joyau floristique et phytosociologique : l’« Isoetion » méditerranéen. Bulletin de la Société d’étude des sciences naturelles de Nîmes XLVII : 1-23 (Communications de la Sigma 42).
Braun-Blanquet J., Roussine N. & Nègre R., 1952. Les groupements végétaux de la France méditerranéenne. CNRS, Paris, 297 p.
Braun-Blanquet J. & Braun-Blanquet G., 1952. Les pelouses steppiques des Causses méridionaux. Vegetatio 22 (4-5) : 201-247.
Brullo S. & Minissale P., 1998. Considerazioni sintassonomiche sulla classe Isoeto-Nanojuncetea. Itinera Geobotanica 11 : 263-290.
Chevassut G. & Quézel P., 1958. L’association à Damasonium polyspermum et Ranunculus batrachioides. Bulletin de la Société d’histoire naturelle d’Afrique du Nord 49 : 204-210.
Exner A. & Willner W., 2004. New syntaxa of shrub and pioneer forest communities in Austria. Hacquetia 3 (1) : 27-47.
Foucault B. (de), 1991. Introduction à une systémique des végétations arbustives. Documents phytosociologiques,
n. s., XIII : 63-104
Foucault B. (de), 2013. Contribution au prodrome des végétations de France : les Isoëtetea velatae de Foucault 1988 et les Juncetea bufonii de Foucault 1988 (« Isoëto–Nanojuncetea bufonii »). Journal de botanique de la Société botanique de France 62 : 35-70, 63 : 63-109.
Foucault B. (de), 2017. Données phytosociologiques nouvelles sur la végétation des Cévennes occidentales (département de la Lozère) et du Haut-Languedoc (département de l’Hérault). Bulletin de la Société botanique du Centre-Ouest, n. s., 48 : 334-359.
Foucault B. (de), 2018a. Caractérisation des habitats de la Bézalado et de la Sagne Grande, commune des Martys (Aude, France). Evaxiana 4 : 143-171.
Foucault B. (de), 2018b. Errata et compléments à propos du Prodrome des végétations de France, cinquième note. Journal de botanique de la Société botanique de France 81 : 39-52
Foucault B. (de), 2020. Éloge du paradigme synusial : alternative à la classification phytosociologique de la végétation forestière européenne, ouest-asiatique et nord-africaine. Evaxiana 7 : 5-248.
Foucault B. (de), 2021. Miscellanées II : syntaxons nouveaux, validés, complétés ou corrigés. Carnets botaniques 70 : 1-22 + 13 tableaux, https://doi.org/10.34971/3t1m-6445.
Foucault B. (de), 2022a. Compléments aux synthèses des Juncetea bufonii et Crypsietea aculeatae ; essai sur les Oryzetea sativae. Carnets botaniques 107 : 1-27, https://doi.org/10.34971/vgyx-k502.
Foucault B. (de), 2022b. Miscellanées phytosociologiques III : syntaxons nouveaux, validés, corrigés ou complétés. Carnets botaniques 112 : 1-23 + 17 tableaux, https://doi.org/10.34971/6AX1-0K40.
Foucault B. (de), 2023a. Sur la végétation aérohalophile à Crithmum maritimum, essai de synthèse. Carnets botaniques 147 : 1-23 plus 17 tableaux, https://doi.org/10.34971/4XBV-3673.
Foucault B. (de), 2023b. Nouvelles données sur la végétation du versant audois de la Montagne Noire. Carnets botaniques 160 : 1-30 + 21 tableaux, https://doi.org/10.34971/HTCT-WD37.
Foucault B. (de), 2023c. Retour sur la structuration synsystématique des alliances du Molinion caeruleae et du Juncion acutiflori. Carnets botaniques 144 : 1-26 + 18 tableaux, https://doi.org/10.34971/86S0-XR84.
Foucault B. (de), 2024. Miscellanées phytosociologiques VII : syntaxons nouveaux, validés ou complétés. Carnets botaniques 231 : 1-10 + 4 tableaux, https://doi.org/10.34971/GV5S-E307.
Foucault B. (de), 2025. Sur les pas de J. Braun-Blanquet : quelques associations végétales sur Grabels et environs (Hérault). Carnets botaniques 271 : 1-22 + 13 tableaux, https://doi.org/10.34971/VK03-VS63.
Foucault B. (de) & Catteau E., 2012. Contribution au prodrome des végétations de France : les Agrostietea stoloniferae Oberd. 1983. Journal de botanique de la Société botanique de France 59 : 5-131.
Foucault B. (de), Beaufils L., Gilbert B. & Lépagnole C., 2021. Quelques données sur la végétation des Pyrénées audoises à travers celle du plateau de Counozouls (Aude). Carnets botaniques 74 : 1-12 + 9 tableaux, https://doi.org/10.34971/x1yh-sv34.
Géhu J.-M., Costa M., Scoppola A., Biondi E., Marchiori S., Peris J.B., Franck J., Caniglia G. & Veri L., 1984. Essai synsystématique et synchorologique sur les végétations littorales italiennes dans un but conservatoire ; I – Dunes et vases salées. Documents phytosociologiques, n. s., VIII : 393-474.
Goncharenko I.V., 2001. Floristic classification of the woods of Sumy forest-steppe region. Ukrainian Phytosociological Collection A, 1 (17) : 3-17 (en russe).
Keeley J.E. & Zedler P.H., 1998. Characterization and global distribution of vernal pools. In C.W. Witham, E.T. Bauder, D. Belk, W.R. Ferren Jr. & R. Ornduff (eds), Ecology, Conservation, and Management of Vernal Pool Ecosystems, Sacramento : 1-14.
Kopeina E.I. & Koroleva N.E., 2023. Rare plant communities of the ass. Molinio caeruleae-Trollietum europaei ass. nov. in the Khibiny mountains (Kola peninsula). Vegetation of Russia 46 : 93-99 (en russe).
Korolyuk A.Yu., Shomurodov H.F. & Khabibullaev B.S., 2025. Syntaxonomy of riparian forests of the lower reaches of the Amudarya river. Turczaninowia 28 (2) : 51-61
Laribi M., Acherar M., Meddour R. & Derridj A., 2016. Sur une nouvelle station algérienne de Damasonium alisma subsp. polyspermum (Coss.) Maire (Alismataceae) : syntaxonomie et implications conservatoires. Revue d’écologie (Terre & Vie) 71 (2) : 129-141.
Liou Tchen-Ngo, 1929. Étude sur la géographie botanique des Causses. Archives de botanique III, mémoires : 1-220.
Mayer A., 1995. Comparative study of the coastal vegetation of Sardinia (Italy) and Crete (Greece) with respect to the effects of human influence. Libri botanici 15 : 1-264.
Molinier R. & Tallon G., 1965. La Camargue, pays de dunes. La Terre et la Vie 19 : 1-185.
Noble V. & Baret J., 2019. Catalogue des végétations du département des Bouches-du-Rhône. Conservatoire botanique national méditerranéen de Porquerolles, 282 p.
Royer J.-M., Felzines J.-C., Misset C. & Thévenin S., 2006. Synopsis commenté des groupements végétaux de la Bourgogne et de la Champagne-Ardenne. Bulletin de la Société botanique du Centre-Ouest, n. s., n° sp. 25 : 1-394.
Sinelkova N.V. & Taran G.S., 2006. Bank vegetation (Isoëto-Nanojuncetea, Phragmito-Magnocaricetea) of the Kolyma river upper reaches, Russian Far East. Vegetation of Russia 9 : 58-68 (en russe).
Świerszcz S., Nobis M., Wróbel A., Klichowska E., Nowak S. & Nowak A., 2021. Halophytic vegetation and adjoining plant communities in Middle Asia (Pamir-Alai and western Tian Shan). Tuexenia 41 : 147-174.
Taft J.B., Schwartz M.W. & Loy Ph.R., 1995. Vegetation ecology of flatwoods on the Illinoian till plain. Journal of Vegetation Science 6 : 647-666.
Taran G.S., 1999. Willow forests of Ob floodplain between mouths of Tym and Vakh Rivers (Salicetea purpureae Moor 1958). Botanicheskie issledovaniya Sibiri i Kazahstana: Sobraniye nauchnykh trudov. 5 : 47-56 (en russe).
Taran G.S., 2001. Association Cypero-Limoselletum (Oberd. 1957) Korneck 1960 (Isoëto-Nanojuncetea) in the middle Ob river floodplain. Vegetation of Russia 1 : 43-56 (en russe).
Taran G.S., 2005. On syntaxonomy of floodplain forests (Salicetea purpureae Moor 1958) on the Irtysh and Black Irtysh rivers. Vegetation of Russia 7 : 82-92 (en russe).
Zhiqiang Zhou, 2000. Kiefernwälder im Daxinganling-Gebirge, Nordost-China, Flora, Vegetation, Waldstruktur. Thèse, Freiburg im Breisgau, 109 p. et annexe.
Remerciements
À Claire et Alain Carrara (Grabels, Hérault) pour m’avoir informé de la station de Paeonia officinalis subsp. microcarpa de Vissec et à F. Le Driant qui m’a autorisé à utiliser quelques-unes des photos de sa base photographique FloreAlpes (www.florealpes.com).