La flore du projet de Grand Site de France des Gorges de l’Ardèche, état des lieux et perspectives
Title
The flora of the Ardèche Gorges Grand Site de France project: current state and perspectives
Résumé
Cette synthèse constitue le premier catalogue de la flore vasculaire du projet de Grand Site de France et de la Réserve naturelle nationale des Gorges de l’Ardèche, situé à l’interface des régions Auvergne-Rhône-Alpes et Occitanie. Elle permet d’identifier les principales zones à enjeu pour la conservation de la flore, ainsi que les espèces remarquables qui y sont associées. Elle précise également les dispositifs de suivi à mettre en œuvre, en tenant compte notamment des pressions exercées sur les milieux et des objectifs de restauration écologique.
Abstract
This overview constitutes the first catalogue of the vascular flora of the Grand Site de France project and the Ardèche Gorges National Nature Reserve, both located at the interface between the Auvergne-Rhône-Alpes and Occitanie regions. It identifies the main priority areas for plant conservation, as well as the remarkable species associated with them. It also outlines the monitoring measures to be implemented, considering environmental pressures and ecological restoration objectives.
1. Introduction
Le projet de Grand Site de France est porté par le Syndicat de gestion des Gorges de l’Ardèche (SGGA), avec l’appui du Département de l’Ardèche et en partenariat avec les collectivités territoriales. Son périmètre couvre seize communes réparties entre les régions Auvergne-Rhône-Alpes et Occitanie : treize situées dans le département de l’Ardèche (Bidon, Gras, Labastide-de-Virac, Lagorce, Larnas, Orgnac-l’Aven, Saint-Just-d’Ardèche, Saint-Marcel-d’Ardèche, Saint-Martin-d’Ardèche, Saint-Remèze, Salavas, Vallon-Pont-d’Arc, Vagnas) et trois dans le Gard (Aiguèze, Issirac, Le Garn). Le label Grand Site de France, instauré par l’État en 2003, reconnaît l’excellence de la gestion de paysages protégés, en cohérence avec l’esprit des lieux et les principes du développement durable. Ce dispositif vise à accompagner des projets ambitieux de préservation, de réhabilitation et de gestion de sites classés parmi les plus emblématiques et les plus fréquentés du patrimoine national.
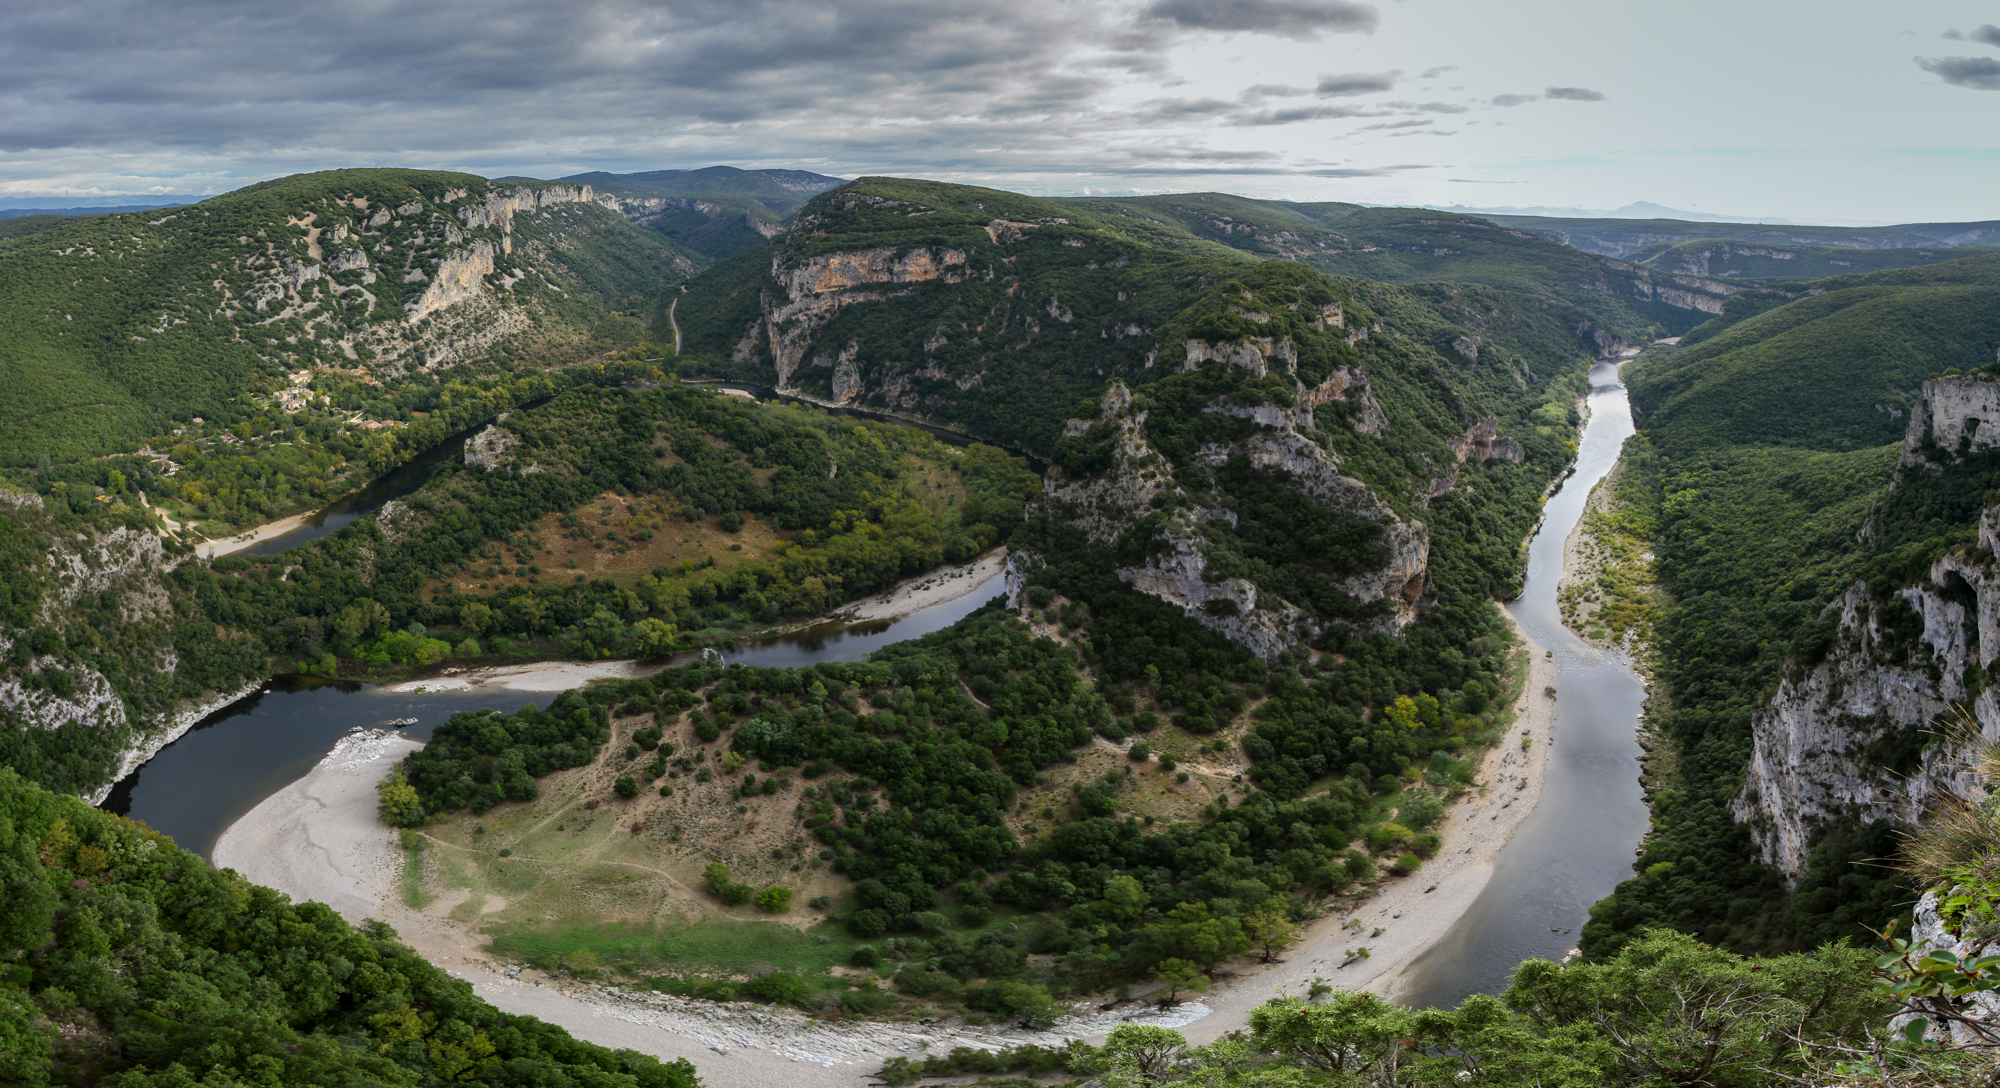
Au cœur de ce périmètre, la Réserve naturelle nationale des Gorges de l’Ardèche (photo 1) s’étend de part et d’autre du canyon sur un linéaire de 22 km, couvrant une superficie d’environ 1 950 ha. Elle est régie par un plan de gestion pour la période 2022-2031, où sont identifiés quatre grands enjeux liés à la conservation du patrimoine naturel. Ceux-ci concernent les milieux forestiers, rupestres, rivulaires et souterrains, et soulignent la responsabilité de la Réserve dans la préservation de ces habitats. Ce plan vise également à renforcer les connaissances scientifiques et à favoriser une meilleure appropriation des enjeux par les acteurs locaux, le grand public et les scolaires.
Dans le cadre de la convention de coopération 2024-2026 entre le SGGA et le Conservatoire botanique national du Massif central, ce dernier a été chargé de réaliser un état des lieux de la flore vasculaire sur le territoire du SGGA, ainsi que d’identifier les espèces prioritaires en vue de la mise en œuvre d’actions de conservation, de restauration et de suivi. La présente synthèse s’inscrit dans cette démarche.
2. Matériel et méthodes
Les données mobilisées pour cette synthèse sont issues des systèmes d’information des deux conservatoires botaniques nationaux (CBN) couvrant l’aire d’étude. L’analyse repose sur 84 876 données valides. Pour la partie ardéchoise, relevant du territoire d’agrément du CBN Massif central, les données proviennent du système d’information Lobelia (extraction du 6/01/2026). Pour la portion gardoise, située dans le périmètre du CBN méditerranéen, elles sont issues du système d’information Simethis (22/01/2026). La nomenclature taxonomique adoptée suit le référentiel TAXREF v. 18. Les observateurs récurrents sont indiqués par leurs initiales (NB pour Nicolas Bianchin, OP pour Olivier Peyronel) et les autres contributeurs ont leur nom écrit en entier. Le catalogue de la flore vasculaire du projet de Grand Site de France est présenté en annexe 1 ; il intègre également celui de la Réserve naturelle nationale des Gorges de l’Ardèche. Les rangs infraspécifiques sont précisés, le cas échéant, dans les commentaires associés à chaque espèce.
La sélection des taxons devant faire l’objet d’actions de conservation repose sur les pré-listes rouges régionales d’Auvergne-Rhône-Alpes et d’Occitanie (en cours de validation). A été retenu l’ensemble des espèces et sous-espèces classées menacées (catégories de CR à VU) et quasi menacées (NT) dans au moins l’une des deux régions. La hiérarchisation proposée dans le cadre de la stratégie de conservation de la flore de Rhône-Alpes (Bonnet et al., 2017) n’a pas été mobilisée, celle-ci étant devenue obsolète à la suite de la révision des listes rouges à l’échelle de la nouvelle entité administrative Auvergne-Rhône-Alpes. La Stratégie de conservation de la flore méditerranéenne (Le Berre et al., 2020, 2021, 2022, 2023) permet d’identifier les types d’actions à mettre en œuvre pour les taxons à enjeux très forts et forts. Toutefois, de nombreux taxons menacés en Auvergne-Rhône-Alpes présentent une distribution plus large en région méditerranéenne française et n’y sont, de ce fait, pas considérés comme prioritaires. Cette stratégie constitue néanmoins un cadre de référence utile pour la définition des mesures de conservation. Enfin, la typologie retenue des suivis s’appuie sur les protocoles relatifs à la flore et aux habitats patrimoniaux développés dans le cadre du réseau alpin Flore sentinelle (Terpereau et al., 2025). La liste des taxons menacés et quasi menacés ainsi que les modalités de suivis sont présentées en annexe 2.
3. Résultats
3.1. La diversité floristique globale
À l’échelle du projet de Grand Site, 1 518 espèces ont été recensées, toutes périodes confondues, soit environ 69 % des espèces connues dans le département de l’Ardèche. Parmi elles, 91 espèces n’ont pas été revues après 2000. En excluant les plantes cultivées et accidentelles, les espèces exotiques représentent environ 7 % du cortège floristique, une proportion légèrement supérieure à celle observée à l’échelle du proche Parc naturel régional des Monts d’Ardèche (Bianchin, 2015), mais nettement inférieure à celle de territoires plus fortement urbanisés, comme la Métropole de Lyon par exemple, où elles dépassent 28 % de la flore (Antonetti, 2012).
À l’échelle de la Réserve, 934 espèces sont recensées, soit 62 % de la flore inventoriée sur l’ensemble du périmètre du Grand Site, une soixantaine d’espèces apparaissant strictement inféodée à la Réserve. Par ailleurs, 95 espèces (soit environ 10 %) n’y ont pas été observées après 2000. Ce résultat doit être interprété avec prudence, en raison à la fois de l’imprécision de nombreuses données anciennes – dont certaines ne correspondent pas nécessairement au périmètre de la Réserve – et du caractère potentiellement instable de certaines espèces, en particulier au sein des systèmes alluviaux. La proportion d’espèces exotiques y est globalement comparable à celle observée à l’échelle du projet de Grand Site. Ce constat peut surprendre au regard de la plus forte proportion des milieux alluviaux, généralement favorables à l’installation d’espèces exotiques, mais d’autres secteurs du projet de Grand Site se distinguent de la Réserve par la plus forte représentativité des milieux artificiels et sous influences anthropiques (villages, jardins, cultures…), apportant ainsi son propre lot de plantes exotiques.
3.2. L’évolution spatiale et temporelle de la pression d’observation
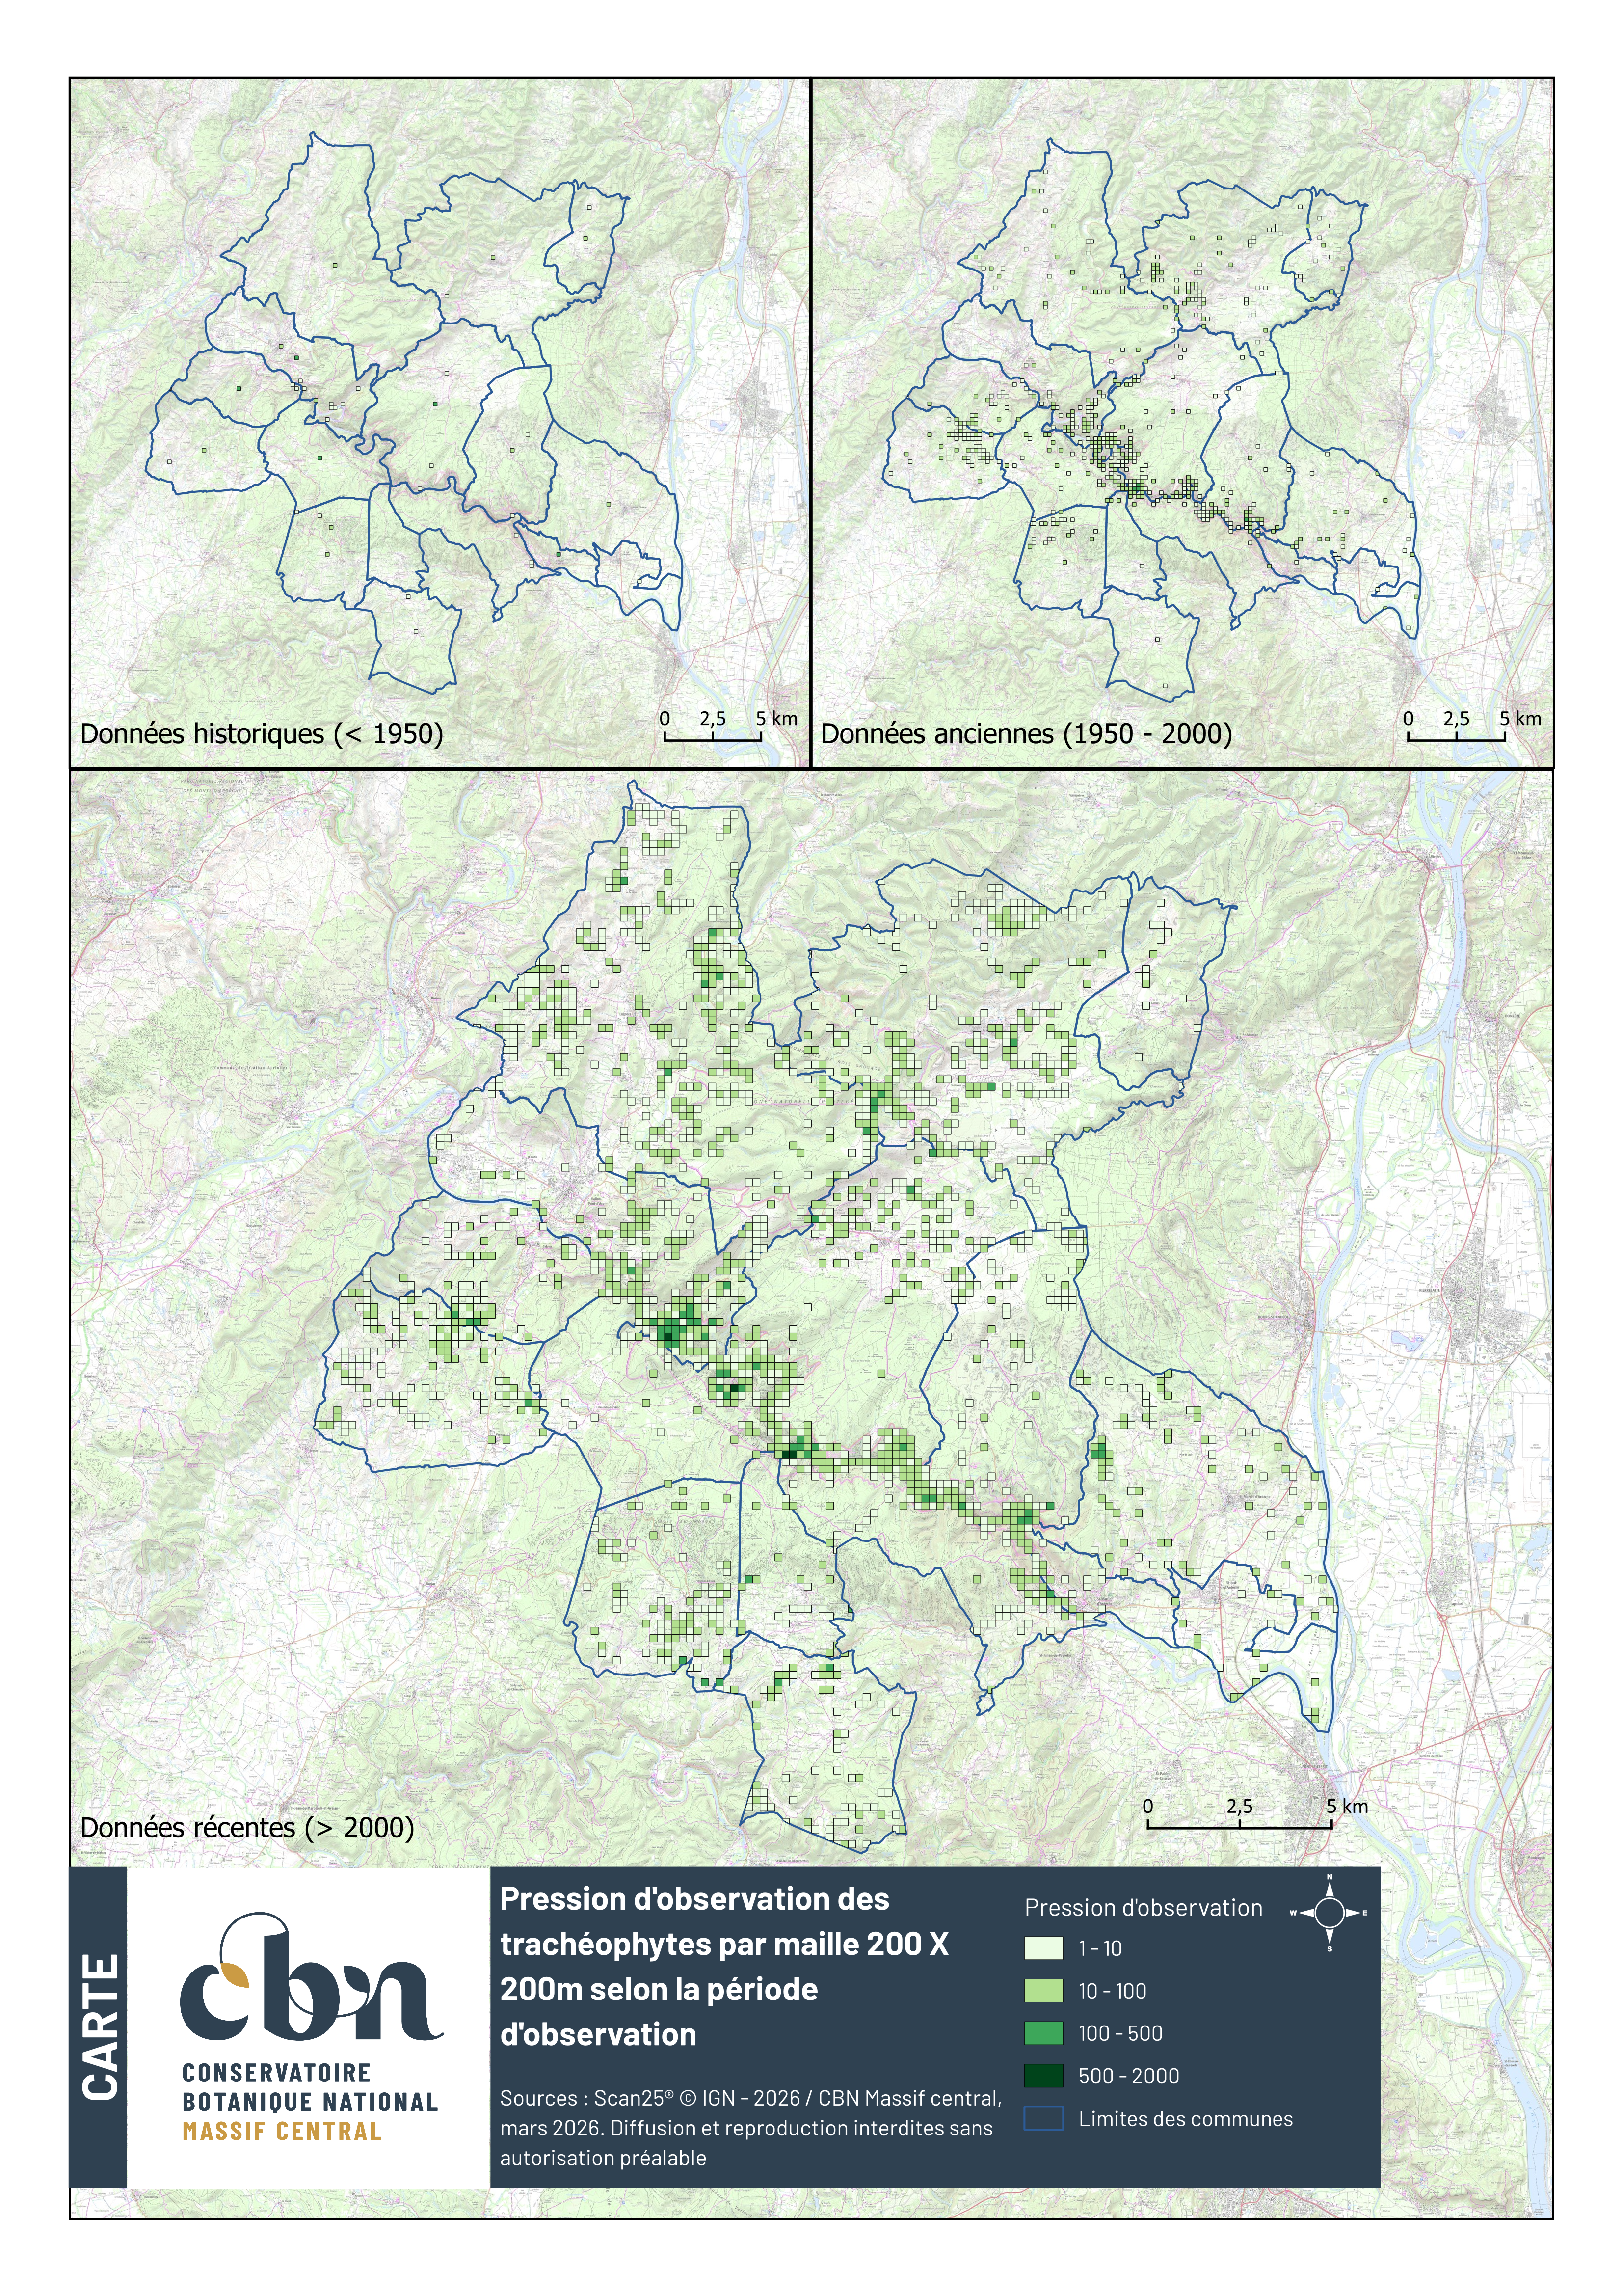
La carte 1 met en évidence le caractère très lacunaire des connaissances botaniques sur le territoire avant la seconde moitié du xxᵉ siècle, ainsi que le défaut de prospections dans les gorges de l’Ardèche à cette période (du moins, nous n’avons trouvé aucun document écrit). En effet, en l’absence de voie d’accès en rive gauche – la route touristique n’ayant été aménagée qu’en 1969 –, les botanistes ne prospectaient que marginalement ce secteur, se limitant surtout à la portion amont, en particulier autour du Pont d’Arc et de Chames.
La plus ancienne mention floristique au sein du périmètre du projet de Grand Site remonte à Olivier de Serres (1600). Les principales sources historiques proviennent du Catalogue des plantes vasculaires du département de l’Ardèche (Revol, 1910) et de ses suppléments (1922, 1924), ainsi que les contributions de Maurice Breistroffer (1954a, 1957, 1960), alors conservateur du Muséum d’histoire naturelle de Grenoble, qui réalisa plusieurs excursions dans le sud de l’Ardèche. La Flore du bassin moyen du Rhône et de la Loire (Cariot & Saint-Lager, 1889) et le Catalogue de la flore ligéro-rhôdanienne (Coquillat, 1965) constituent d’autres références notables pour le territoire.
La majorité de ces données anciennes est renseignée à l’échelle communale ; néanmoins, certaines publications apportent des informations plus fines sur la localisation des espèces, leur positionnement écologique ou encore les pratiques agricoles de l’époque – cas des plantes messicoles, aujourd’hui en fort déclin.
Un tournant majeur intervient avec la création de la Société botanique de l’Ardèche (SBA) en 1979, suivie de celle de la Réserve naturelle nationale des Gorges de l’Ardèche en 1980. Bernard Descoings, puis Jean-Paul Mandin, actuel président de la Société, y initient les premiers travaux scientifiques (Descoings, 1984a, b). Ils caractérisent notamment les cortèges des pelouses psammophiles et des milieux rupestres, tout en menant, avec les membres de la Société, de nombreuses excursions.
Progressivement, le maillage des dispositifs de protection et de gestion du territoire se densifie – site classé du Pont d’Arc et de ses abords, site Natura 2000 Basse Ardèche urgonienne, arrêté préfectoral de protection de biotope (APPB) du massif de la Dent de Rez et de la basse vallée de l’Ibie, espace naturel sensible (ENS) des gorges de l’Ardèche – et l’activité botanique se professionnalise.
Dans le même temps, les conservatoires botaniques nationaux se structurent avec la création du CBN méditerranéen en 1979, puis celle du CBN du Massif central en 1996. Plusieurs programmes structurants d’inventaire de la flore vasculaire sont alors déployés sur le territoire, notamment l’atlas de la flore de l’Ardèche (en mailles 5 x 5 km² de 2008 à 2010), complété par l’inventaire général de la flore du Bas-Vivarais (1 km²).
Enfin, les avancées technologiques récentes ont permis aux agents de la Réserve de gagner en autonomie dans la gestion, la bancarisation des données et la précision des relevés de terrain, grâce à des outils numériques et des dispositifs d’aide à la détermination de plus en plus performants.
3.3. Les zones prioritaires pour la conservation de la flore
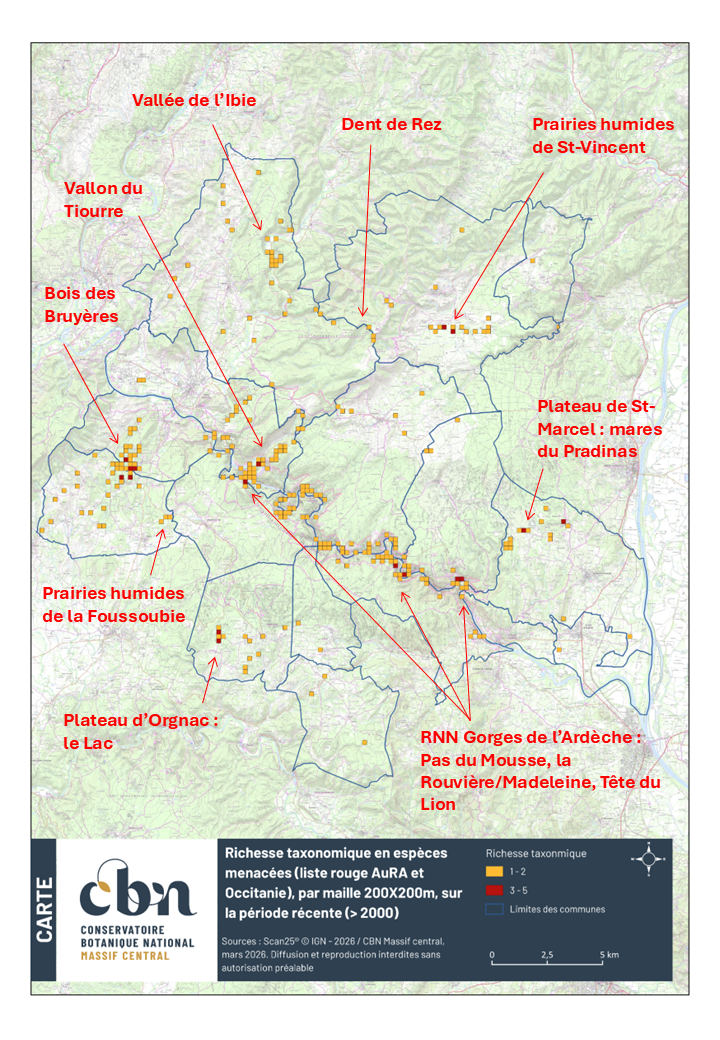
La diversité spécifique apparaît fortement corrélée à l’intensité de la pression d’observation. Sans surprise, les gorges de l’Ardèche constituent à la fois le secteur le mieux documenté et le plus riche, tant pour la flore commune que pour les espèces menacées (carte 2). L’analyse des préférences écologiques des taxons met en évidence une distribution non homogène des enjeux à l’échelle des gorges, surtout concentrés au sein de deux grands types de milieux : les pelouses psammophiles et les végétations associées aux parois, vires ou balmes.
À l’échelle du projet de Grand Site, les pelouses psammophiles sont exclusivement localisées au sein de la Réserve, où elles demeurent toutefois dispersées. À l’inverse, les complexes rupestres y sont particulièrement bien développés et s’étendent au-delà de ce périmètre. On notera notamment le vallon du Tiourre, situé hors de la Réserve, qui est encadré de vastes parois, remarquables par leur flore.
Si les gorges de l’Ardèche constituent la colonne vertébrale du projet de Grand Site, d’autres secteurs se distinguent aussi par leur richesse floristique. C’est notamment le cas du massif de la Dent de Rez et du plateau du Laoul, caractérisés par la présence d’une flore préalpine remarquable à l’échelle du département de l’Ardèche et de la moitié orientale du Gard. Cet ensemble pourrait constituer un relais biogéographique notable entre les massifs méditerranéens de Provence et les causses du Massif central.
Les enjeux associés aux vastes plateaux méridionaux, en continuité avec les plaines du Languedoc, restent plus difficiles à appréhender, en partie en raison d’un déficit de prospections. On y observe néanmoins un cortège original lié aux karsts boisés, ainsi que, ponctuellement, des espèces menacées inféodées aux pelouses écorchées ou aux tonsures amphibies en marge de mares temporaires, surtout au contact d’autres formations géologiques.
La flore messicole, autrefois très riche – notamment sur les communes de Saint-Remèze et d’Orgnac-l’Aven – ne trouve aujourd’hui plus les conditions nécessaires à son maintien.
À l’échelle du projet de Grand Site, subsistent encore quelques milieux agropastoraux d’un fort intérêt biologique, tels que les prairies hygrophiles de Saint-Vincent et de la Foussoubie. Les ruisseaux temporaires de l’Ibie, de la Nègue et de leurs affluents abritent également des communautés de bas-marais remarquables, qui demeurent encore peu étudiées.
Le bois des Bruyères (Salavas, Vagnas), en raison de sa tonalité cévenole ainsi que par sa géologie très diversifiée, constitue un site à la fois original et d’un intérêt floristique majeur, après les gorges de l’Ardèche. On y observe notamment des forêts anciennes de chêne pédonculé, exceptionnelles en région méditerranéenne.
Enfin, la plaine du Rhône – incluant le cours inférieur de l’Ardèche – demeure, à l’échelle du territoire d’étude, le secteur le moins bien connu. Quelques espèces menacées y sont mentionnées sans localisation précise, telles que Butomus umbellatus, Cyperus flavescens ou encore Hydrocharis morsus-ranae.
Chacune de ces zones est détaillée ci-dessous, de même que la place des espèces menacées dans les communautés végétales.
Les pelouses psammophiles du lit majeur de l’Ardèche (planche 1)
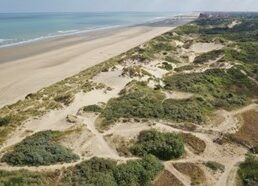
Huit sites de dunes sableuses sont recensés en bordure du cours de l’Ardèche, de l’amont vers l’aval : le Pas du Mousse, la montagne de Sable, le Sablou, Gaud, Gournier, les Templiers, la Fève et le Ribeirol. Toutefois, seuls les cinq premiers présentent des surfaces significatives. Leur formation a fait l’objet d’une analyse détaillée (Mandin, 2001). Perchés en moyenne à une trentaine de mètres au-dessus du lit d’étiage de l’Ardèche, ces milieux, considérés comme des dunes, résulteraient d’accumulations progressives liées aux crues extrêmes. Ces dépôts sableux atteignent localement plusieurs mètres d’épaisseur et renferment, par endroits, des horizons riches en éléments cryoclastiques caractéristiques de conditions climatiques froides, témoignant de leur ancienneté. À l’échelle intra-dunaire, les processus éoliens pourraient également contribuer à leur dynamique, en particulier lors d’épisodes de vents forts favorisant la remobilisation des sables au pied des falaises.
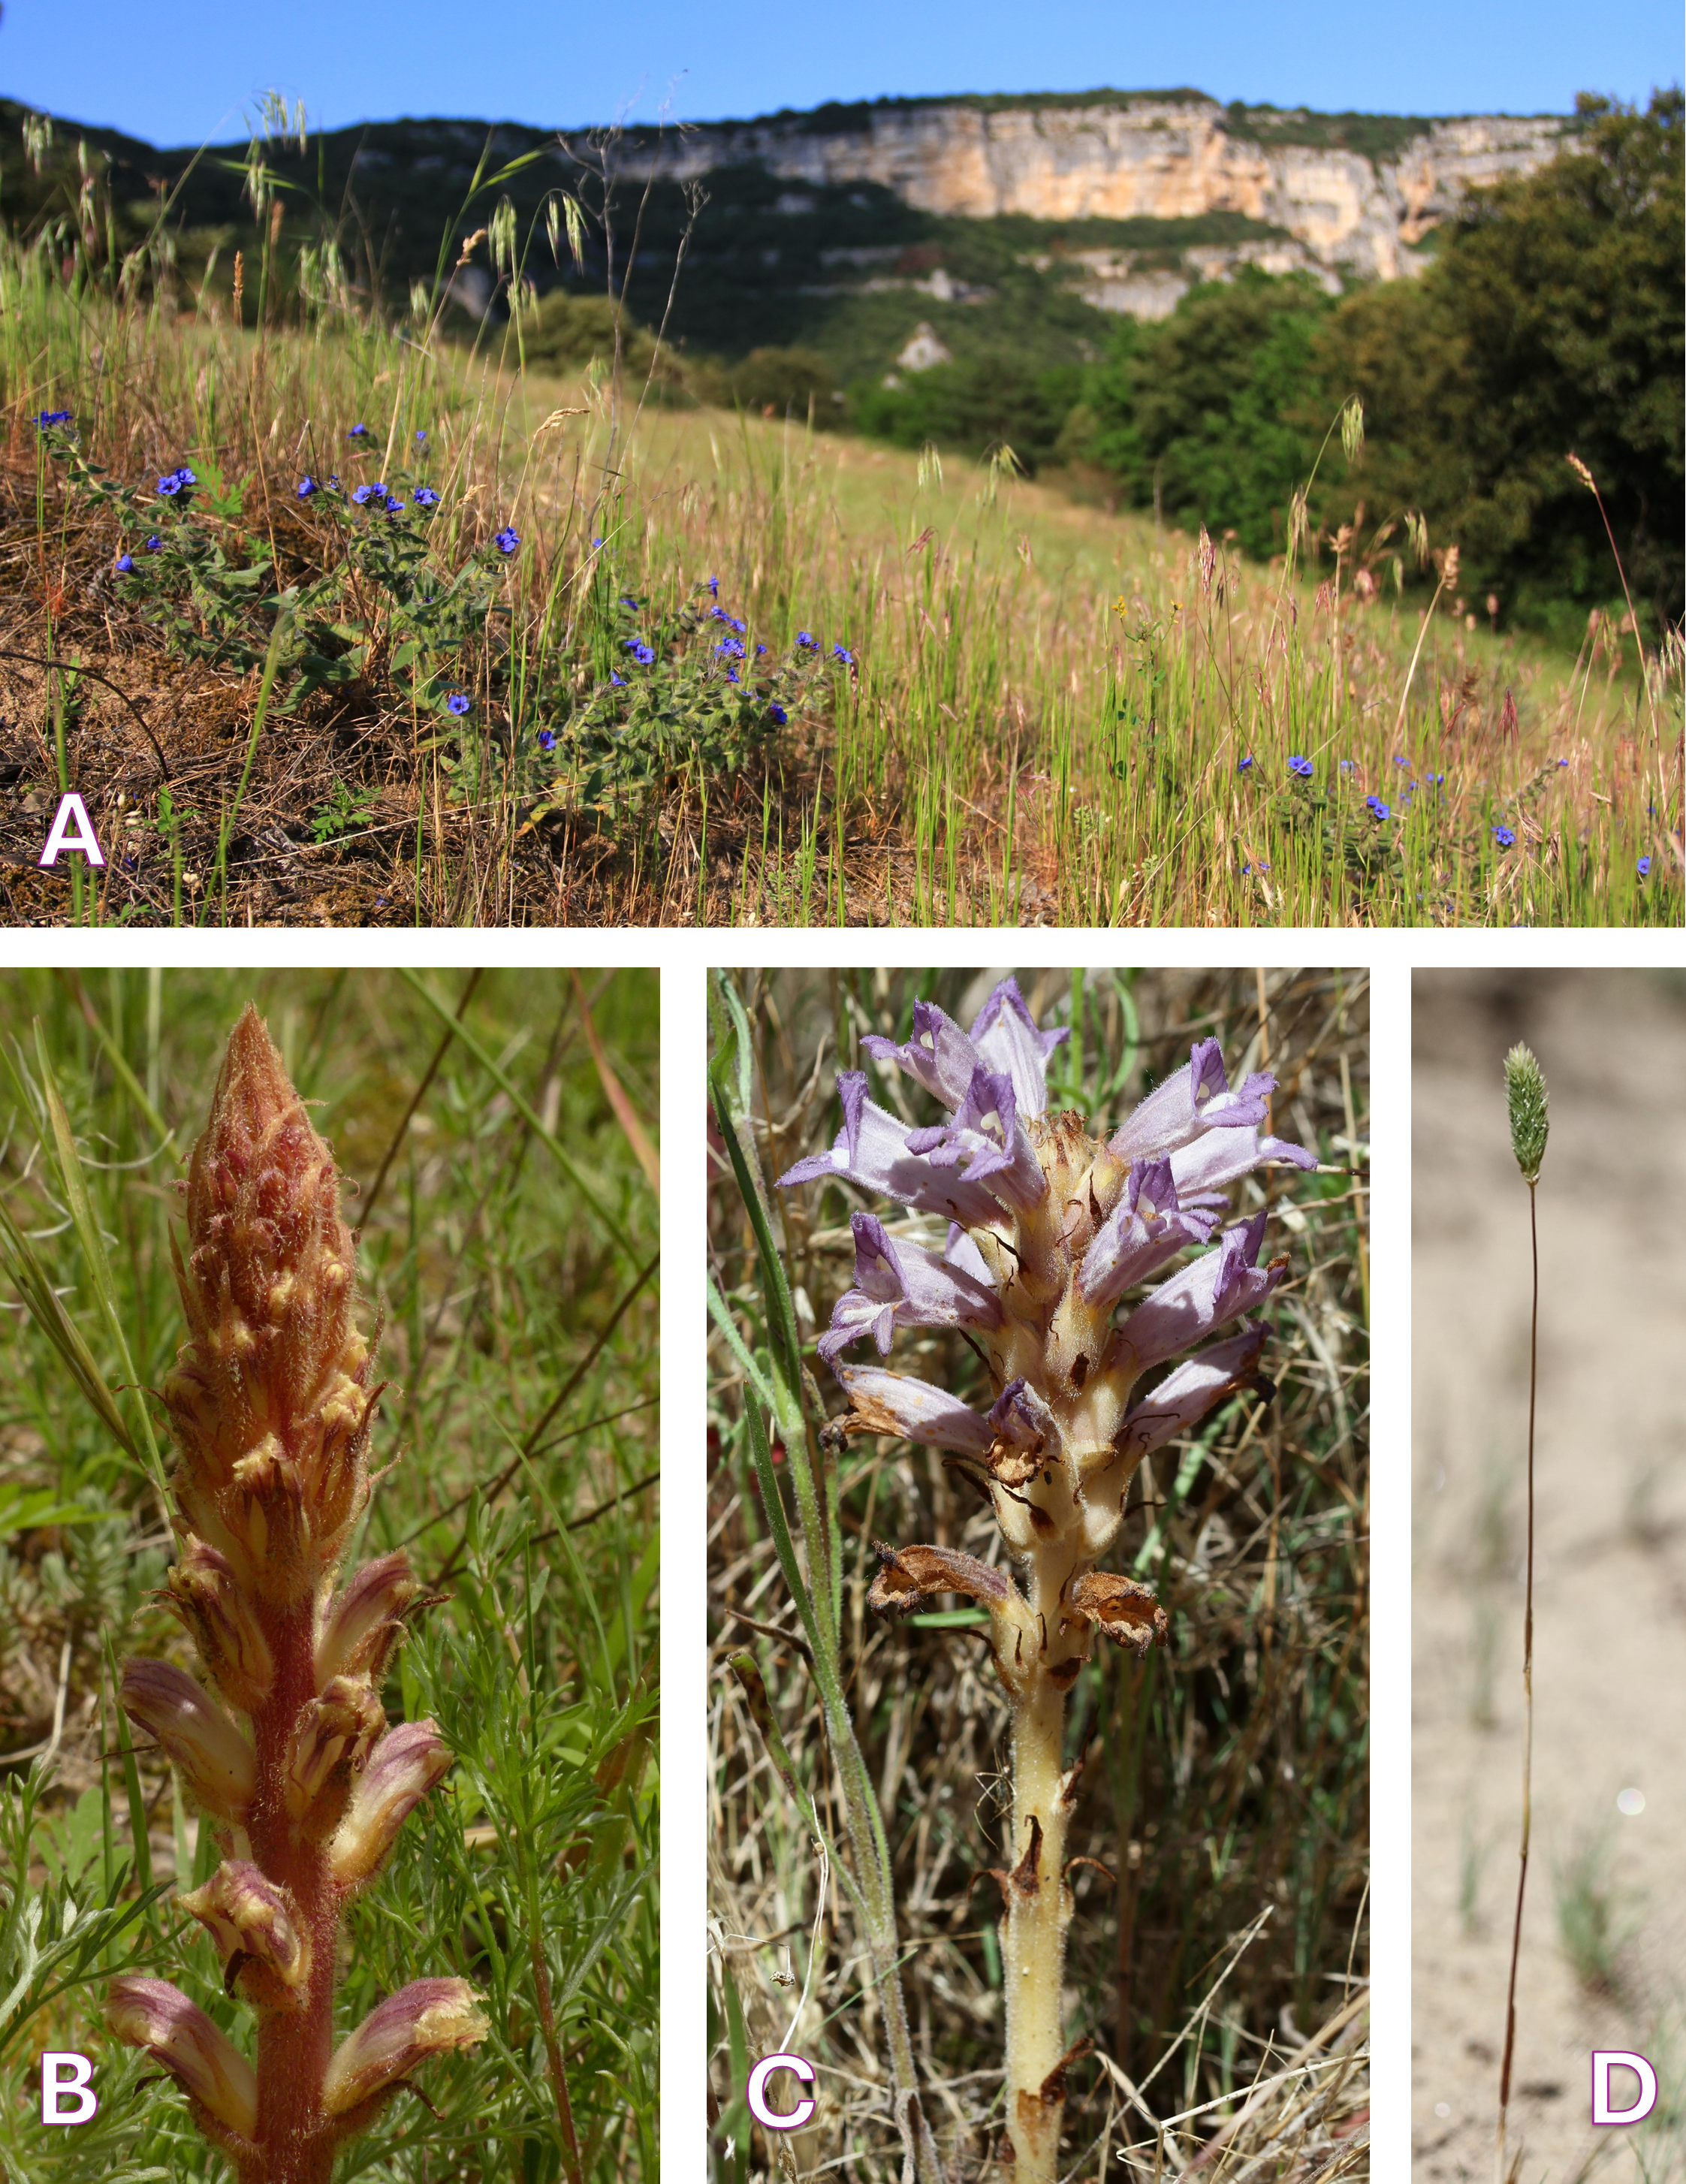
Les pelouses psammophiles associées à ces formations abritent des espèces hautement spécialisées, adaptées à la faible capacité de rétention en eau des substrats sableux. Les communautés vivaces, caractérisées par des systèmes racinaires profonds, sont structurées dans les gorges de l’Ardèche par des espèces telles que Alkanna matthioli, Corynephorus canescens, Helichrysum stoechas ou encore Artemisia campestris. Elles relèvent de l’association à laîche à fruits lustrés et corynéphore blanchâtre (Carici liparocarpi-Corynephoretum canescentis Choisnet 2019 nom. ined. (1), Alkanno matthioli-Corynephorion canescentis B. Foucault 2021). Cette unité phytosociologique semble circonscrite à la moyenne vallée du Rhône, de Lyon jusqu’au delta, où elle est relayée, sur le littoral méditerranéen, par des groupements vicariants. Ces communautés vivaces sont souvent associées à une thérophytaie (Sileno conicae-Cerastion semidecandri Korneck 1974), composée d’espèces à cycle court incluant notamment Silene conica, Phleum arenarium et Vulpia membranacea.
Alkanna matthioli, espèce emblématique des pelouses psammophiles de la Réserve, n’est confirmée que sur deux sites, le Pas du Mousse (Peyronel, 2011) et Gournier (Jean-Paul Mandin, 24/04/1981), pour une surface totale estimée à moins de 5 000 m² et un effectif de 534 individus (Dapsence, 2024). Deux mentions anciennes existent toutefois à la montagne de Sable (Descoings, 1984a, mais dont la localité est peut-être à rapporter au Pas du Mousse ; un individu observé par OP, sans date précise) – bien que l’espèce n’y ait pas été observée antérieurement par Breistroffer lors de ses nombreuses visites (27/06/1958, 24/06/1959, 25/04/1963, 28/05/1969, 25/04/1970). L’herbier de Jules Revol conserve un spécimen collecté au « Pont-d’Arc » en 1900 ; néanmoins, la précision des localisations anciennes reste limitée, ne permettant pas de rattacher avec certitude cette mention aux stations connues, ni d’exclure l’existence d’anciennes populations disparues. Avec celles de Suze-la-Rousse (Drôme), les populations des gorges de l’Ardèche figurent parmi les plus importantes en Auvergne-Rhône-Alpes.
Par ailleurs, Artemisia campestris constitue la plante hôte de deux orobanchacées peu fréquentes. Orobanche artemisii-campestris, observée à Gournier (Pattier, 2016), à Gaud (Amélia Dapsence, 01/07/2024) et au Sablou (Amélia Dapsence, 21/06/2024), est probablement encore méconnu tant dans les gorges de l’Ardèche qu’ailleurs. Phelipanche arenaria, signalé à Gournier (Descoings et al., 2011 ; Julve & de Foucault, 2002) ainsi qu’au Pas du Mousse (NB & Nicolas Bazin, 20/05/2020), est nettement plus facile à déterminer. Dans les gorges de l’Ardèche, ses effectifs ne dépassent probablement pas cinquante à cent individus, même lors des années les plus favorables.
En fin d’été se développe une friche nitrophile à Salsola squarrosa subsp. controversa, une plante qui s’est révélée inconstante dans les suivis (Mandin, 2001 ; non revue en 2025), découverte aussi en amont dans la moyenne vallée de l’Ardèche au niveau de l’aérodrome de Ruoms (NB, 03/05/2022). Elle est associée à Tribulus terrestris et à Tragus racemosus. Ces groupements, rares en contexte continental, sont encore peu étudiés (ils pourraient être rattachés à l’alliance Salsolion ruthenicae G. Phil. ex Oberd. 1983). On retrouve également le salsola douteux sur l’ensemble du littoral méditerranéen, ainsi que dans la vallée du Rhône jusqu’à la région lyonnaise.
Les marges des pelouses sont progressivement colonisées par des landes à Cistus salviifolius. Dans ce contexte dynamique, plusieurs espèces patrimoniales ont été observées. Parmi celles-ci, Corynephorus divaricatus (Collectif, 2025) présente un intérêt particulier : l’espèce était historiquement mentionnée au bois des Bruyères, sans y avoir été confirmée récemment, ainsi qu’à proximité du projet de Grand Site, sur la commune de Saint-Montan (Kessler & Bianchin, 2010).
Par ailleurs, la présence de Silene inaperta a été signalée sur la plage située en aval de la Châtaigneraie, en face du cirque de Gaud (Labastide-de-Virac ; Collectif, 2015). Cette espèce, caractéristique des substrats sableux siliceux acides, pourrait être issue des Cévennes voisines, où elle demeure rare, notamment dans les vallées de la Gagnière (bassin versant de la Cèze) et du Chassezac (affluent de l’Ardèche). Elle est fréquemment associée à Lupinus angustifolius, espèce qui n’a toutefois pas encore été observée dans les gorges. La formation de ces milieux acides résulte de processus de lessivage à long terme des sables. Il est également probable que la composition des substrats, en particulier leur teneur en silice, varie en fonction des apports liés aux épisodes de crues.
Enfin, certaines trouées des pelouses alluviales à Festuca arvernensis (Koelerio macranthae-Phleion phleoidis Korneck 1974) abritent des espèces davantage caractéristiques du Massif central, bien qu’actuellement en régression, telles que Linaria arvensis (JPM, 19/06/1981 ; Jacques-Henri Leprince, 01/05/1984 ; René Delpech, 04/05/1994) ou Lathyrus angulatus (Guillaume Choisnet & Francis Kessler, 15/05/2007). Ces pelouses se développent sur des bancs alluviaux constitués d’une matrice de galets siliceux d’origine cévenole, mêlés à des sables.
Les milieux psammophiles des gorges de l’Ardèche sont inclus dans le périmètre du Plan national d’actions (PNA) en faveur des pelouses sableuses continentales (2024-2033 ; Bonnet et al., 2024), piloté par la DREAL Auvergne-Rhône-Alpes et animé par le Conservatoire botanique national alpin. Ce programme couvre une partie du sud-est de la France, autour du bassin versant du Rhône et de l’Ain, sur une dizaine de départements. Il vise à améliorer les connaissances et l’état de conservation d’une vingtaine d’espèces végétales caractéristiques. Parmi les espèces cibles potentielles dans le secteur, Loeflingia hispanica, Bassia laniflora, Onosma arenaria subsp. pyramidata ou encore Corispermum gallicum n’ont jamais été mentionnées dans les gorges de l’Ardèche. Leur présence passée ne peut être totalement exclue au regard du déficit de données anciennes, mais leur occurrence actuelle apparaît peu probable, à l’exception éventuelle de la loeflingie d’Espagne, en raison de sa discrétion.
Les marges des dunes abritent aussi des milieux sableux de grand intérêt patrimonial, en particulier au contact des croupes calcaires et sous forme de placages sur les plateaux environnants, où se développent chênaies vertes et pubescentes. Aux abords du Pas du Mousse et de la montagne de Sable, d’importantes populations de Pilosella ziziana (Breistroffer, 1957 ; Descoings & Mandin, 1984 sub Hieracium cymosum) ont ainsi été recensées. Cette espèce, nettement plus fréquente en Provence, présente en Ardèche une distribution localisée ; elle y est aussi connue au pied de la Dent de Rez (Breistroffer, 1979 ; NB & OP, 15/06/2023) et sur la montagne de Serre. En Occitanie, elle demeure très rare et se limite principalement aux Cévennes, en particulier dans les vallées des Gardons ainsi que dans la Costière nîmoise. Dans ces mêmes milieux, mais dans des contextes caractérisés par une hygrométrie plus élevée, se développe Doronicum plantagineum. Dans les gorges de l’Ardèche, l’espèce n’est actuellement connue que de trois stations : aux abords du Pas du Mousse (Peyronel, 2013) et de la montagne de Sable (Coquillat, 1965 ; où sa présence serait à actualiser), ainsi qu’au pied des parois dominant la Dragonnière de Labastide-de-Virac (NB & OP, 21/03/2023).
Enfin, il convient de signaler la présence d’un boisement original situé sous le secteur des Cinq Fenêtres, où des sables siliceux se mêlent à des éléments cryoclastiques calcaires. Dans ce contexte d’ubac frais et de forte pente se développe la plus grande tillaie des gorges de l’Ardèche. Ce peuplement accueille entre autres une population remarquable d’Asplenium scolopendrium (Breistroffer, 1960).
Les parois, balmes et vires (planches 2 et 3)
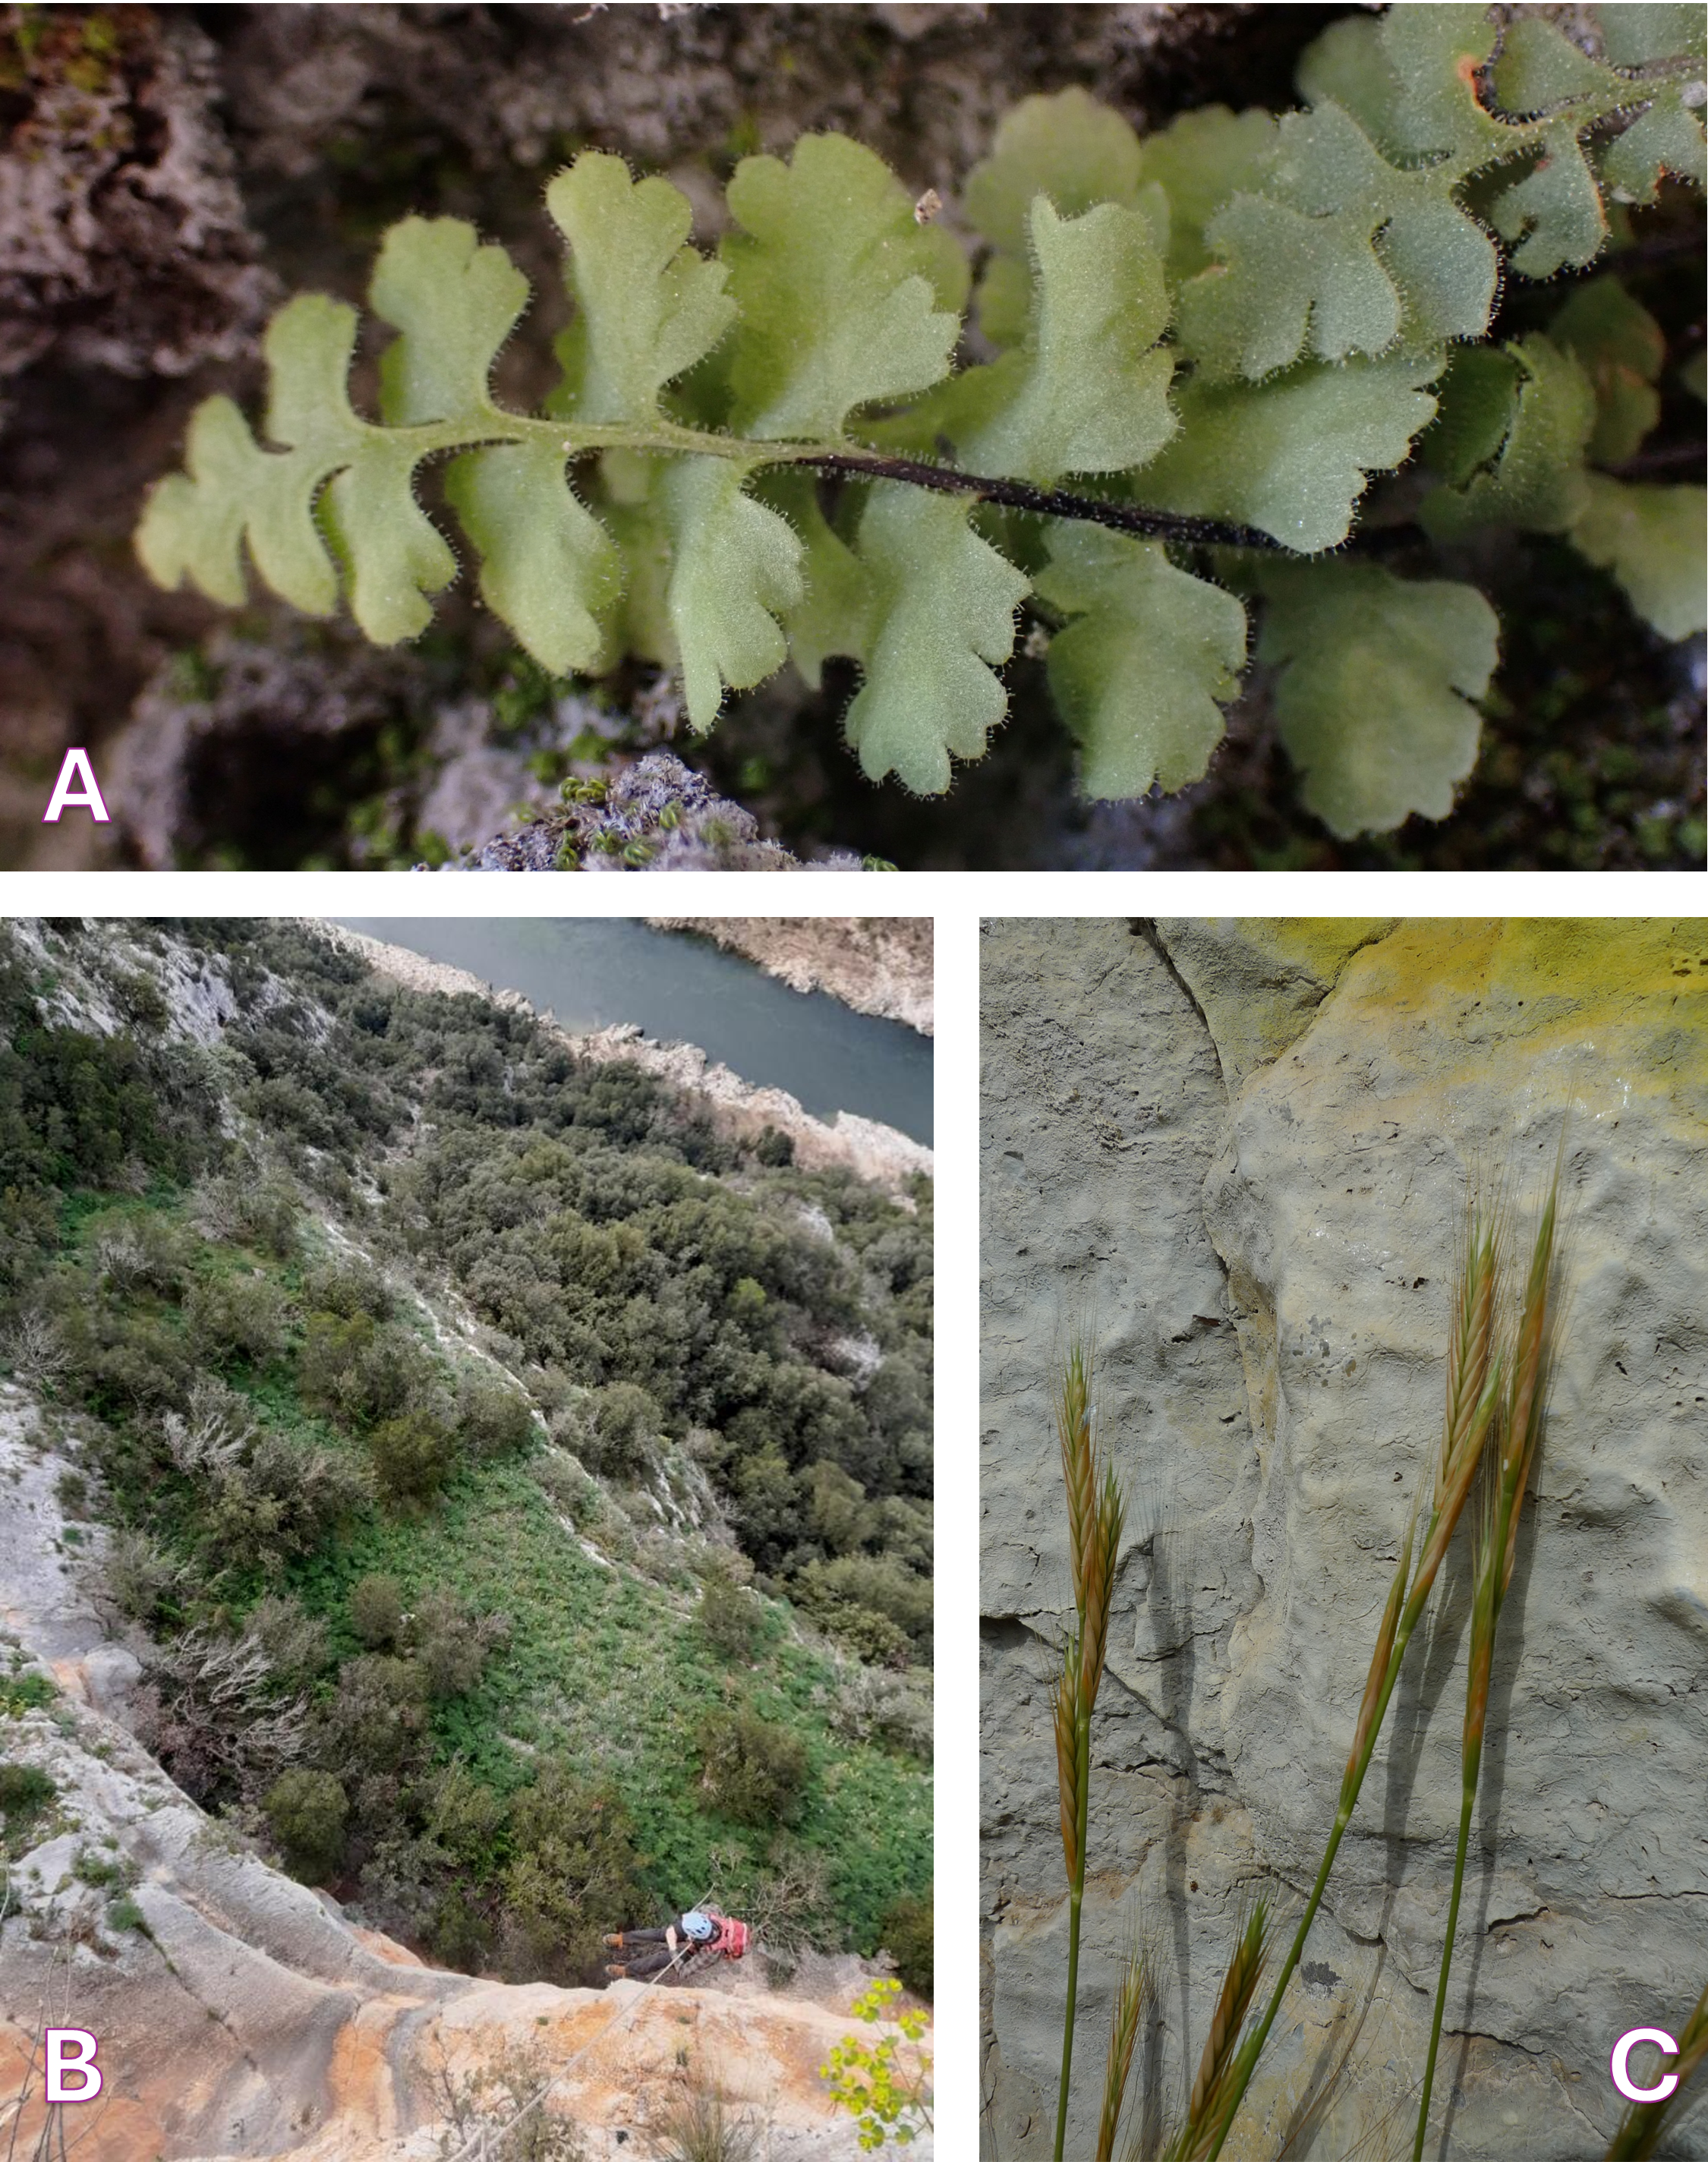
Plusieurs communautés végétales occupent les imposantes parois des gorges de l’Ardèche. L’association à phagnalon sordide et à asplénium de Pétrarque (Phagnalo sordidi-Asplenietum petrarchae Braun-Blanq. in Meier & Braun-Blanq. 1934) est strictement inféodée aux parois calcaires chaudes d’adret, au sein de l’étage de la yeuseraie (voir Sutter, 1973 pour une description détaillée). Parmi les deux espèces éponymes de l’association, Asplenium petrarchae s’étend jusqu’à la moyenne vallée de l’Ardèche, sur la commune de Chauzon au niveau du site d’escalade de la tour de Toussaint (Boudrie et al., 2005) ; il est aussi signalé dans les gorges du Rimouren (Thomas Croze, NB, Nicolas Bazin & Anne Vanpeperstraete, 27/02/2025) ainsi qu’au Clos de Sampzon (NB, 25/05/2022) et en un point de la montagne de Serre (Simon Contant & NB, 22/01/2024). Cette petite fougère présente des exigences écologiques plus marquées que le phagnalon sordide. Elle se localise préférentiellement à l’entrée des cavités ou au sein de fissures profondes, à l’abri du soleil direct, où les conditions hygrométriques sont plus élevées et plus stables. Les effectifs observés demeurent faibles, ils excèdent rarement une cinquantaine d’individus par station, soit probablement moins de mille individus dans le périmètre du projet de Grand Site.
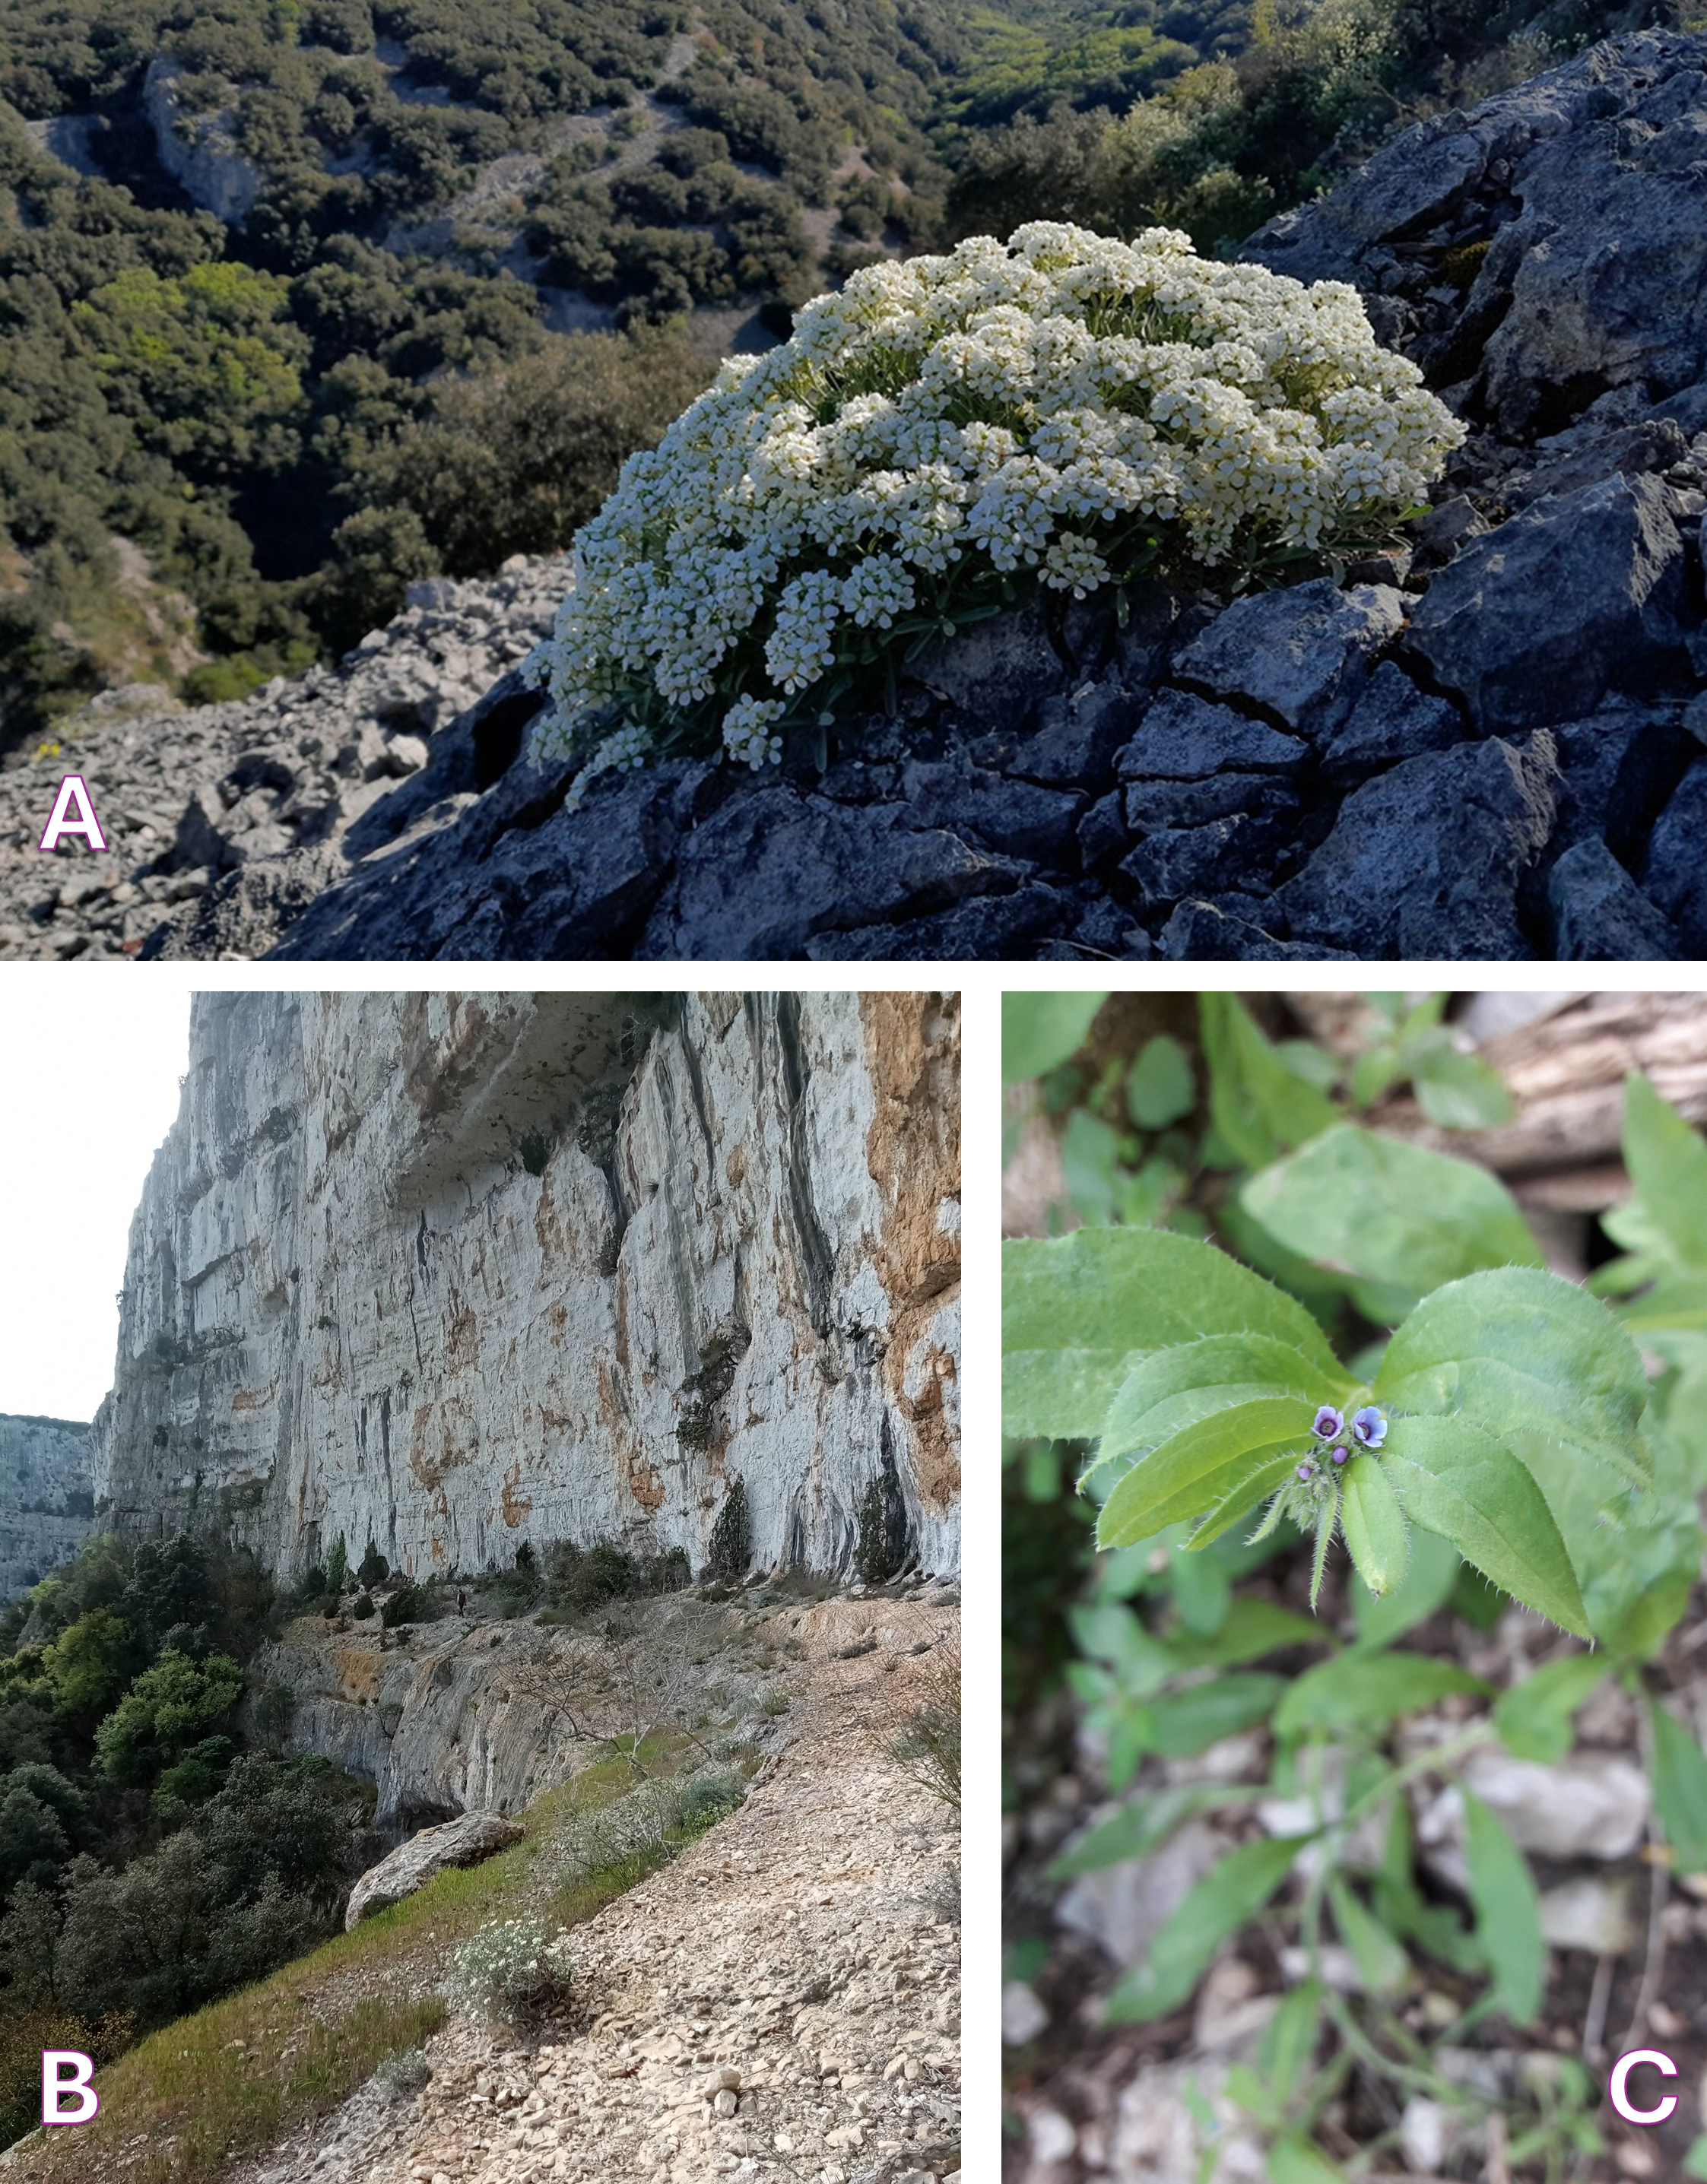
À l’étage supraméditerranéen, en ubac ou à partir de 400-500 m d’altitude en exposition sud, l’association à vélar du Roussillon et centranthe de Lecoq prend le relais (Erysimo collisparsi-Centranthetum lecoqii Choisnet 2019 nom. ined. (1)). Cette unité décrite des gorges de l’Ardèche présente des affinités avec une autre association des rochers calcaires de la bordure cévenole (Hieracio stelligeri-Alyssetum spinosi Braun-Blanq. & H. Meier in H. Meier & Braun-Blanq. 1934). Hormathophylla saxigena (= H. macrocarpa) en constitue une espèce caractéristique, accompagnée notamment de Hieracium stelligerum – endémique du sud de la France, répartie dans un triangle formé par les causses du Massif central, les contreforts calcaires de la vallée du Rhône et le Verdon – ainsi que de Silene saxifraga. C’est aussi dans ces parois, au Grand Charmasson, que la seule population ardéchoise de Galium pusillum (Collectif, 2014) a été observée, en marge des populations alpines. Sa présence dans les causses du Massif central (Grands Causses, Quercy) mériterait d’être confirmée.
Le genre Hormathophylla comprend une dizaine d’espèces réparties en Méditerranée occidentale, du nord de l’Algérie au sud de la France, avec des centres de diversification majeurs dans le sud-ouest de la péninsule Ibérique et dans les Pyrénées (Küpfer, 1974 ; Salmeron-Sanchez et al., 2018). L’hormathophylle des rochers, unique représentante du genre sur le territoire d’étude, est endémique des piémonts calcaires s’étendant des Corbières au Bas-Vivarais, jusqu’au défilé de Donzère (Drôme), en passant par les causses du Massif central. Dans les gorges de l’Ardèche, elle est principalement observée en ubac (remparts du Garn, Dragonnière de Labastide, rocher du Saleyron), tandis que les populations les plus importantes se situent en périphérie de la Réserve (Grand Charmasson, Déroc, Champ Serrier et rocher du Trou de la Lune dans la vallée de l’Ibie, roche de Salavas, aiguille de Sampzon, Baravon). Elle est également présente en exposition sud à la Dent de Rez, jusqu’à 700 m d’altitude. Dans le reste du département de l’Ardèche, l’espèce est surtout connue dans la moyenne vallée de l’Ardèche et les gorges du Chassezac. Dans le Gard, elle est signalée dans la vallée de la Cèze et sur le plateau de Lussan (mont Bouquet, Seynes), mais semble absente des gorges du Gardon. Sur le plan phylogénétique, elle forme, avec H. ligustica, un clade étroitement apparenté à H. spinosa. Cette dernière montre une répartition plus méridionale en France, ses limites septentrionales sont atteintes au mont Bouquet et au Castellas de Rousson (Lagarde, 2001, 2007). Malgré une disjonction géographique supérieure à 150 km, la divergence entre les hormathophylles des rochers et de Ligurie serait récente (Salmeron-Sanchez et al., 2018), suggérant une contraction de l’aire ancestrale au cours des cycles glaciaires-interglaciaires et donc aussi une sensibilité potentielle aux fluctuations climatiques.
Dans les contextes d’ubac les plus ombragés se développe l’association à polypode du pays de Galles (Polypodion serrati Braun-Blanq. in Braun-Blanq. et al. 1952). En marge de ces communautés sciaphiles, plusieurs stations de Silene nemoralis ont été récemment découvertes. Cette espèce, signalée pour la première fois en Ardèche à la Dent de Rez (Tallon, 1954 ; non revu depuis), est également connue dans la vallée de la Ligne, ainsi qu’au niveau des coulées basaltiques de Thueyts et de Jaujac (NB & Thomas Croze, 07/08/2024). Dans le Gard, elle n’était jusqu’alors mentionnée que de quelques communes du nord-ouest du département, en continuité avec les populations caussenardes. Les observations récentes dans le territoire d’étude concernent en particulier les parois du Grand Charmasson (déjà vu en bordure de RD 290, lors de la 120e session extraordinaire de la Société botanique de France en 1988 ; Collectif, 2009 ; Descoings et al., 2011), de la Combe d’Agrimont (Saint-Remèze ; NB, 29/05/2020), du Colombier de Labastide-de-Virac (NB & Nicolas Bazin, 28/06/2024), du Déroc (Vallon-Pont-d’Arc ; Collectif, 2021), de Fontgarnide (Salavas ; Collectif, 2011), de l’aiguille de Sampzon (Collectif, 2012), de l’Aulagnière (Aiguèze ; NB & OP, 24/04/2023) ainsi qu’en face de Gournier entre la combe du Cros et de la Vieille (Aiguèze ; Frédéric Andrieu, NB & Nicolas Bazin, 25/05/2026). L’espèce est donc régulière au pied des parois sciaphiles d’ubac, bien que les effectifs demeurent localement faibles, ils dépassent rarement une centaine d’individus.
Ces parois ombragées accueillent aussi Asarina procumbens (Durnerin & Mandin, 1992 ; Peyronel, 2011 ; Collectif, 2012 ; revu Jean-Paul Mandin, 30/03/2023), unique représentant du genre et interprété comme relique tertiaire (Elisens, 1985). Ce taxon ou son ancêtre serait à l’origine du genre méditerranéen Cymbalaria, dont la divergence remonterait à la transition Miocène–Pliocène (Carnicero et al., 2017). L’asarine couchée est caractéristique des parois siliceuses méditerranéennes des Cévennes et des Pyrénées, où elle donne son nom à une alliance phytosociologique. Dans les gorges de l’Ardèche, comme dans les calcaires jurassiques du Chassezac (Collectif, 2007), la plante se cantonne à des fissures enrichies en matière organique. Elle s’y maintient avec le plus grand mal, comme en atteste la fréquence des phénomènes de chlorose.
Bien distinctes des autres types de parois, les sources pétrifiantes, ou tufs, demeurent ponctuelles et de faible extension dans les gorges de l’Ardèche (les plus imposantes au Révaou, à la source du Figuier et au moulin du Tiourre). Elles relèvent pour partie de l’habitat communautaire prioritaire 7220* (Sources pétrifiantes avec formation de travertins (Cratoneurion). Ces formations, essentiellement structurées par les bryophytes, sont pauvres en végétaux vasculaires, à l’exception d’Adiantum capillus-veneris ; elles alimentent néanmoins à leur pied, de manière temporaire ou permanente, des zones humides d’un grand intérêt en contexte méditerranéen (bas-marais, tonsures amphibies). La recherche de Laphangium luteoalbum (= Gnaphalium l.) y serait à encourager. L’espèce a en effet été signalée sur la commune de Vallon, « à Pont d’Arc dans les balmes calcaires très humides » (Breistroffer, 1960), mais n’a pas été revue depuis ; elle demeure difficile à détecter en raison de son caractère à la fois éphémère et probablement très localisé. En Ardèche, on connaît quelques rares populations de cette espèce, au niveau des parois siliceuses temporairement suintantes des Cévennes (Collectif, 2012, 2016). En revanche, elle est plus fréquente dans les régions atlantiques.
Au pied des grandes parois, les sols présentent un enrichissement trophique marqué, surtout lié aux apports d’excréments d’ongulés qui trouvent dans ces milieux des zones d’abri en hiver. Si, dans les Alpes, ces formations correspondent aux balmes-reposoirs à chamois et bouquetins, dans les gorges de l’Ardèche, les chèvres férales sont aujourd’hui les seules occupantes. Sur les rares vires inaccessibles à la grande faune, les fientes d’oiseaux rupestres, associées aux apports verticaux de matière organique, contribuent également au maintien de sols riches. Dans ce contexte s’expriment plusieurs communautés originales de friches (Sisymbrietea officinalis Kornek 1974) et d’ourlets vernaux (Cardaminetea hirsutae Géhu 1999), mises en évidence dans le cadre des travaux typologiques de la thèse de Guillaume Choisnet (2019) et complétés par une étude récente sur l’impact des chèvres férales (Bianchin & Monlyade, 2025).
L’association à urosperme fausse-picride et brachypode rude (Urospermo picroidis-Brachypodietum stacei Choisnet 2019 nom. ined. (1)), décrite des gorges de l’Ardèche, occupe certainement l’ensemble du piémont calcaire cévenol. Brachypodium rigidum (= B. stacei), qui domine ce groupement, est une espèce étroitement localisée autour du bassin méditerranéen (sténo-méditerranéenne). En France, elle est habituellement cantonnée à des contextes stationnels proches du littoral, en Corse et dans la Riviera (Alpes-Maritimes ; Croze et al., 2025), à l’exception notable des populations des piémonts cévenols (gorges de l’Ardèche, de la Beaume, du Chassezac, de la Cèze, du Gardon et de l’Hérault, ainsi qu’à la montagne de l’Hortus en face du pic Saint-Loup). Elle ne déborde que marginalement dans les Préalpes provençales au sein des départements de la Drôme (site d’escalade du rocher de Saint-Julien à Buis-les-Baronnies ; NB, 26/05/2015) et du Vaucluse (Dentelles de Montmirail ; Croze et al., 2025). Sa présence dans ces secteurs internes pourrait être liée à la combinaison de forts cumuls pluviométriques automnaux, favorisant la germination, et de conditions microclimatiques abritées au pied des parois ; l’espèce se distingue en outre par une phénologie précoce, avec une floraison dès le mois de février. Maurice Breistroffer est le premier à l’avoir distingué en France continentale sur la balme-reposoir du cirque d’Estre (21/06/1948, HERB. REG. MHNGr.1940.2865 ; sub Trachynia distachya var. velutina ; Breistroffer, 1948). L’espèce est tombée dans l’oubli jusqu’aux travaux de Pilar Catalán et de son équipe (Catalán et al., 2012). Ce groupe composé de trois brachypodes annuels possédant un génome de petite taille est aujourd’hui un modèle génétique de premier plan pour l’étude des céréales cultivées. Nous avons d’abord observé ce grand brachypode dans les gorges du Chassezac (NB, 30/06/2014), puis revu peu après dans les gorges de l’Ardèche au cirque d’Estre (NB, 16/04/2015). Il occupe en réalité une grande partie des pieds de parois de la rive gauche des gorges de l’Ardèche, de Vallon-Pont-d’Arc à Saint-Martin-d’Ardèche, ainsi qu’à l’Aiguille et au rocher de Sampzon (Bianchin & Monlyade, 2025).
C’est dans cette même balme du cirque d’Estre que Maurice Breistroffer avait observé des tapis d’Hornungia procumbens, espèce redécouverte en 2020 dans cette localité par Jean-François Christians (Collectif, 2022). Depuis, nous avons mis en évidence d’importantes populations au cirque de Gaud et au rocher d’Autridge, ainsi que d’autres, plus modestes, au Sablou, au cirque de la Madeleine et à la Cadière (Collectif, 2023 ; Bianchin & Monlyade, 2025). L’espèce est inféodée aux sols sablonneux minéralisés, le plus souvent en contexte littoral, et n’était jusqu’alors confirmée en Auvergne-Rhône-Alpes que dans deux autres localités (marais salés d’Auvergne et au pied de parois en Savoie). Notre étude n’a toutefois pas permis de réunir un nombre suffisant de relevés pour préciser ses affinités phytosociologiques sur le site. Les relations éventuelles avec le « reposoir à Hutchinsia prostii » décrit par Liou (1929), au pied des Causses dans les vallées de la Dourbie et de la Jonte, reste encore à clarifier.
Sous les surplombs rocheux ombragés mais toujours chauds de l’étage méso-méditerranéen se développe l’association à pariétaire du Portugal et géranium pourpre (Parietario lusitanicae-Geranietum purpurei Alcaraz et al. 1986, Parietarietum lusitanicae Sutter 1973 prov. nom. inval. (3b)). Parietaria lusitanica, qui structure clairement cette association, atteint dans les gorges de l’Ardèche sa limite septentrionale de répartition (Peyronel, 2011 ; Collectif, 2012). Elle est isolée des rares populations du Luberon et du piémont des monts de Vaucluse (Croze, 2016 ; Croze et al., 2025) ainsi que de celles des gorges du Gardon. Nos observations ont permis de mettre en évidence une dizaine de localités, généralement de faible extension, mais pouvant accueillir localement plusieurs milliers d’individus. C’est également au pied des parois ombragées mais chaudes du Ribeirol, sur la commune d’Aiguèze, que l’un d’entre nous a découvert une population d’Urtica pilulifera (Nicolas Bazin, 27/04/2026). Cette espèce avait déjà été signalée à Saint-Marcel-d’Ardèche (Revol, 1910) et à Bidon (Breistroffer, 1948), mais elle n’a, à ce jour, toujours pas été retrouvée du côté ardéchois.
L’association à gaillet bâtard et anthrisque commun (Galio aparinellae-Anthriscetum caucalidis Rivas‑Mart. 1978) – à laquelle semble pouvoir être rattaché le Galio spurii-Anthriscetum caucalidis Misset & Garraud in Misset 2019 des Préalpes – initialement décrite de la péninsule Ibérique (région de Madrid), est certainement répandue dans l’ensemble des massifs calcaires du pourtour méditerranéen. Non signalée dans la thèse de Guillaume Choisnet, cette association qui est ici en limite altitudinale occupe les situations d’ubac dans les gorges de l’Ardèche (Bianchin & Monlyade, 2025) ainsi que les balmes sud de la Dent de Rez. On y trouve des espèces peu fréquentes dans le secteur comme Anthriscus caucalis, Galium spurium (déjà identifié à la Dent de Rez par Maurice Breistroffer le 28/06/1958 et revu récemment, Collectif, 2024 ; également au Baravon, NB & Nicolas Bazin, 15/04/2026 ; en face de Gournier entre la combe du Cros et de la Vieille, Frédéric Andrieu, NB & Nicolas Bazin, 25/05/2026), Urtica urens ou Asperugo procumbens. Cette dernière, signalée aux Cinq Fenêtres (Breistroffer, 1960 ; Peyronel, 2011) a été découverte dans une balme de la combe d’Agrimont ainsi qu’à la Dent de Rez (Collectif, 2024). Il s’agit des seules populations ardéchoises et les populations d’Occitanie les plus proches sont situées en bordure des causses du Massif central.
Enfin, l’association à géranium herbe-à-Robert et cerfeuil noueux (Geranio robertiani-Chaerophylletum nodosi Misset & Leprince in Misset 2019) demeure peu fréquente dans les gorges de l’Ardèche. Découvert en Ardèche il y a plus de vingt ans, Chaerophyllum nodosum colonise préférentiellement les ourlets vernaux associés aux chênaies pubescentes thermophiles des plateaux karstiques, notamment en périphérie du bois de Païolive (Kessler & Bianchin, 2010). L’espèce paraît actuellement en forte expansion dans le département, probablement favorisée à la fois par le vieillissement des peuplements forestiers et par la défoliation du buis, susceptible d’accroître la disponibilité en azote dans les sols. Dans les gorges de l’Ardèche, plusieurs stations ont été recensées ces dernières années : à l’Aulagnière (Aiguèze ; Frédéric Andrieu, 29/05/2013), dans une balme de la combe d’Agrimont (Saint-Remèze ; NB & OP, 29/05/2020), ainsi qu’en rive opposée à Gournier, entre les combes du Cros et de la Vieille (Aiguèze ; Frédéric Andrieu, NB & Nicolas Bazin, 25/05/2026).
D’une manière générale, les communautés d’ubac demeurent rares et encore très insuffisamment documentées dans la région. À titre d’exemple, seules trois stations d’Arabis verna sont actuellement connues : au pied du Grand Charmasson (Collectif, 2021), à l’Aulagnière (Aiguèze ; Frédéric Andrieu, Olivier Argagnon & Hugo Fontes, 19/04/2011) et en rive opposée à Gournier, entre les combes du Cros et de la Vieille (Aiguèze ; Frédéric Andrieu, NB & Nicolas Bazin, 25/05/2026). Dans cette dernière localité, l’espèce est associée à Galium verticillatum, dont l’aire de répartition dans le sud de la France recouvre largement celle de l’arabette de printemps. Le gaillet verticillé est également signalé en bordure de la montagne de Sable (Breistroffer, 1948 ; revu Amélia Dapsence, 07/05/2024). Par ailleurs, d’importantes populations ont été observées sur les croupes dominant le vallon du Tiourre (NB, 14/05/2021). Cette espèce semble bénéficier de la décomposition de la litière organique accumulée sur les dalles rocheuses. Toutefois, son abondance locale pourrait également être favorisée par le retour du Vautour fauve dans les gorges de l’Ardèche : la fréquentation régulière de ces croupes par les oiseaux est en effet susceptible d’entraîner un enrichissement local des sols en éléments nutritifs.
De même, l’intérêt pour les communautés à Hesperis laciniata s’est récemment accru à la suite de la description de Phelipanche cingularum, espèce parasite qui lui est inféodée (Croze et al., 2024). La julienne laciniée est principalement observée dans le secteur au pied des parois d’ubac et sur les vires, dominant le vallon du Tiourre (dont le Grand Charmasson), de même qu’au rocher du Saleyron, au rocher de la Vieille, au Champ Serrier dans la vallée de l’Ibie, à la dent de Rez et dans son prolongement septentrional au Baravon, ainsi qu’au Barri Troué (Peyronel, loc. cit. ; Collectif, 2012). En revanche, la phelipanche des vires n’est actuellement connue dans la dition que par quelques individus localisés au pied de parois exposées au sud-est dans le vallon du Tiourre et au Barri Troué (Nicolas Bazin, 24/05/2025 ; non revu en 2026 dans cette localité). Cette espèce présente en effet la particularité de fréquenter des secteurs favorables à la reproduction des rapaces rupestres, où les mesures de quiétude assurent sa préservation en période de floraison et limitent fortement les possibilités de prospection. Des investigations complémentaires ciblant ces communautés, annuelles ou vivaces, d’ubac apparaissent ainsi nécessaires, en dehors des zones de quiétude ou des périodes sensibles.
Dans ce contexte, il convient de signaler, à proximité du périmètre du projet de Grand Site, au sein de la zone Natura 2000 Basse Ardèche urgonienne, la découverte d’une population de Delphinium fissum à la grotte de la Pascaloune, dans les gorges du Rimouren (Olivier Jonquet, 22/04/2020). L’espèce y est répartie en au moins trois sous-localités, sur des vires herbeuses en contact avec des buxaies et des parois à polypode du pays de Galles (NB, Thomas Croze, Nicolas Bazin & Anne Vanpeperstraete, 27/02/2026). Il conviendrait également d’y rechercher Hyacinthoides italica, signalé à proximité de la dition dans la vallée de la Cèze ainsi qu’au rocher de Saint-Privat, sur la commune de Saint-Sauveur-de-Cruzières (Breistroffer, 1954b), où il est encore présent.
L’association à brachypode rameux et férule glauque (Brachypodio ramosi-Feruletum glaucae Sutter 1977, Groupement à Ferula communis Choisnet 2019 nom. ined. et inval. (1, 3c)) est décrite des secteurs calcaires chauds et abrités du Languedoc. Elle se développe sur des terrasses rocheuses exposées au sud, plus ou moins luxuriantes, enrichies par les apports d’excréments d’oiseaux. Cette association complexe est structurée par la férule glauque, combinée à un ourlet thérophytique vernal (Cardaminetea hirsutae Géhu 1999 ; de Foucault, 2020). Elle pourrait relever de la nouvelle classe des Charybdido pancratii-Asphodeletea ramosi Biondi 2016, caractérisée par des géophytes monocotylédones entomogames. Cette association constitue sans doute un biotope primaire pour Allium roseum, dont la limite septentrionale de répartition se situe dans le sud des départements de l’Ardèche et de la Drôme. Dans les gorges de l’Ardèche, l’ail rose a été observée entre la route et l’entrée de la grotte de la Tête de Lion sur la commune de Bidon (NB, 22/03/2024) mais elle est peut-être plus largement distribuée. On connaît aussi dans ces balmes chaudes Muscari botryoides, Iris lutescens et Asphodelus macrocarpus. Le muscari botryoïde y est surprenant par ses mensurations et sa floraison hivernale (Tison & de Foucault, 2014). Initialement découvert au cirque d’Estre par Joseph Charaix, des prospections effectuées par Jean-François Christians ont permis de mettre en évidence des spécimens comparables dans d’autres secteurs (Porte des Cévennes sur la commune d’Anduze, dans les gorges de l’Hérault et de la Vis ainsi qu’en bordure des causses, non loin de Millau). Dans les gorges de l’Ardèche, la plante occupe également les parois surplombant le vallon du Tiourre (NB & OP, 23/02/2024) et à la baume du Four des Romains (Collectif, 2023), elle reste exceptionnelle quelle que soit sa valeur taxonomique. Le muscari botryoïde a également été observé par Olivier Jonquet (25/02, 05/03/2020) sur la commune de Bourg-Saint-Andéol, au bois du Laoul, ce qui suggère qu’elle pourrait être recherchée dans la continuité du plateau.
En périphérie des vires à férule glauque se développent des communautés de lithosols à orpin blanc, remarquables au printemps par la floraison abondante de Biscutella cichoriifolia. Les gorges de l’Ardèche, où elle atteint également celles du Rimouren (Collectif, 2002), abritent les plus importantes populations auralpines.
Une autre espèce emblématique des gorges est Ephedra distachya connue depuis 1914 (herbier de Jules Revol, récolté en compagnie de H. Coste et J. Soulié) au niveau des tunnels de la grotte des Huguenots. Cette population suivie dans le cadre des travaux de sécurisation de falaises par le Département de l’Ardèche, est constituée de quatre taches indépendantes formant des massifs d’un à plusieurs mètres carrés développés par voie végétative (Tollet, 2023). Au cours des dernières années, de nouvelles stations ont été découvertes à l’aiguille de Sampzon (Collectif, 2012), au cirque de la Madeleine (OP, 27/03/2015) – dont l’extension reste toutefois à préciser faute de prospections encordées –, ainsi que lors de nos investigations au niveau des falaises de la Fève (Collectif, 2023). L’espèce occupe de manière constante des microhabitats similaires, correspondant aux concavités des parois d’adret, à l’abri des précipitations et inaccessibles à la grande faune, notamment aux chèvres férales. Seuls des individus mâles ont été observés dans les gorges, ce qui suggère soit l’existence actuelle ou passée de populations femelles à proximité, soit un apport plus éloigné mais régulier de propagules par dispersion ornithochore. Les stations les plus proches, en dehors du littoral, sont situées dans les sables d’Orange (Nouviant, 1997).
En revanche, Ephedra major n’avait jamais été signalé ni dans les gorges de l’Ardèche ni dans le département du Gard. Des populations importantes ont pourtant été mises en évidence en rive droite, sur un cordon d’environ 2,5 km, des remparts du Garn jusqu’aux parois surplombant la maladrerie des Templiers (Collectif, 2023). Comme pour l’espèce précédente, les populations les plus proches sont relativement éloignées, localisées dans le massif de Crussol et les Préalpes provençales (Revol, 1922 ; Breistroffer, 1951, 1953 ; Bernard 1980 ; Nouviant, 1998). Bien que les deux espèces coexistent dans les gorges de l’Ardèche, elles présentent une nette ségrégation écologique : la première est strictement inféodée aux versants chauds d’adret, tandis que la seconde est exclusivement observée en ubac. Des stations mixtes existent toutefois en dehors du territoire étudié, notamment dans les Alpilles et le Luberon (Nouviant, 1997 ; Croze et al., 2025).
Afin de localiser de nouvelles populations d’éphèdres, les agents de la Réserve ont mis à notre disposition une série de clichés de parois réalisés en septembre 2011 à l’aide d’un ballon tracté par canoë. L’examen détaillé de l’une de ces photographies, prise dans les basses gorges de l’Ardèche au pied d’une barre rocheuse exposée au sud (site de la Tête du Lion), a permis de repérer de grandes touffes glauques d’une graminée. La visite de la station, quelques jours plus tard, a conduit à identifier cette espèce comme étant Heteropogon contortus (Collectif, 2021). Cette graminée vivace se caractérise par un métabolisme photosynthétique de type C4, elle est largement répandue dans les régions pantropicales et subtropicales d’Afrique, d’Asie et d’Amérique. L’hétéropogon contourné est aussi présent dans le bassin méditerranéen, principalement à proximité du littoral. En France, l’espèce n’était jusqu’alors connue à l’intérieur des terres que dans les gorges du Gardon (Madon, 1994), où elle est associée à une autre Andropogonée, Hyparrhenia sinaica, a priori absente de la dition.
Ce secteur abrite par ailleurs plusieurs espèces peu fréquentes dans le Bas-Vivarais, telles que Gladiolus dubius (Collectif, 2023) et Sonchus bulbosus, en lien avec des placages de sables siliceux déposés par l’Ardèche sur les dalles calcaires et mêlés à une matrice argileuse.
C’est aussi en amont de Saint-Martin-d’Ardèche que Breistroffer (1985) signalait Plumbago europaea au pied d’une grotte, ainsi que Chaenorhinum origanifolium dans des « creux de calcaires à silex », Ces deux espèces étaient également mentionnées sur la commune de Vallon-Pont-d’Arc à l’autre extrémité des gorges. La première n’a pas été revue à ce jour dans le département de l’Ardèche. La seconde a fait l’objet d’une mention plus récente par Ombeline Ménard aux Assions, sous le Pont de Fer, dans les galets du Chassezac (Collectif, 2006). L’analyse des carnets de terrain de Breistroffer (notamment à la date du 24/06/1959), permet de préciser la localisation de la station de Vallon-Pont-d’Arc, qui se situerait entre les balmes à râpette couchée (site des Cinq Fenêtres) et la montagne de Sable. Malgré des prospections ciblées, nous n’avons toujours pas retrouvé cette population.
Peu après la découverte de l’hétéropogon contourné, un individu de Vitis vinifera subsp. sylvestris a été observé à proximité immédiate de la station par Jean-Paul Mandin (Collectif, 2023). Mentionnée par Breistroffer (1954) dans « une ripisylve sauvage de Saint-Alban-Auriolles », l’espèce n’avait jamais été confirmée en Ardèche jusqu’à plusieurs découvertes récentes et quasi simultanées. Elle est maintenant connue à Chauzon dans le lit asséché du ruisseau de Gournier (un individu juvénile non florifère ; NB, 02/07/2021), à Viviers dans une ripisylve du Rhône, à proximité du château Lafarge (un individu mâle ; NB,16/06/2022) et en aval de la Dragonnière de Banne, sur le ruisseau du Granzon (un individu femelle ; Collectif, 2023). Les prospections menées dans les gorges de l’Ardèche ont depuis permis de recenser moins d’une dizaine d’individus (dont au moins un pied femelle fructifié), confirmant le caractère extrêmement rare et relictuel de cette espèce dans le secteur.
Les plateaux méridionaux aux abords des gorges
Entre Bidon, Saint-Marcel-d’Ardèche et Bourg-Saint-Andéol s’étend un vaste plateau de calcaires urgoniens, dominé par la yeuseraie (bois des Géantes, du Sorbier), zébrées de lapiaz et se prolongeant en rive droite des gorges (bois de Ronze, de Laval) jusqu’à la montagne de la Serre. La plupart du temps, ces lapiaz, recouverts d’une couche de cailloutis issus de la gélifraction, sont très pauvres et secs, ils n’abritent guère que Centranthus lecoqii, accompagné de quelques espèces banales des garrigues voisines.
Localement toutefois, la roche forme de grandes dalles horizontales favorisant l’accumulation de sables et d’humus. Sur ces dalles se développe, au sein de tapis d’orpin blanc et de bryophytes (notamment Tortella squarrosa, espèce affine des substrats sableux), la seconde population ardéchoise de Gagea luberonensis (OP, 09/03/2015), déjà observé en 2005 sur les Gras de la Rouveyrolle, au sud du bois de Païolive (Bianchin & Aurousseau, 2008 ; Kessler & Bianchin, 2010). Cette station compte, les années favorables, une centaine d’individus florifères. Au regard de l’étendue du plateau, la présence d’autres populations apparaît probable. Des prospections complémentaires pourraient également permettre de mettre en évidence d’autres espèces de gagées, notamment G. lacaitae dans les parcours à brachypode rameux ou G. pratensis dans les ourlets plus frais, en particulier au pied de la dent de Rez.
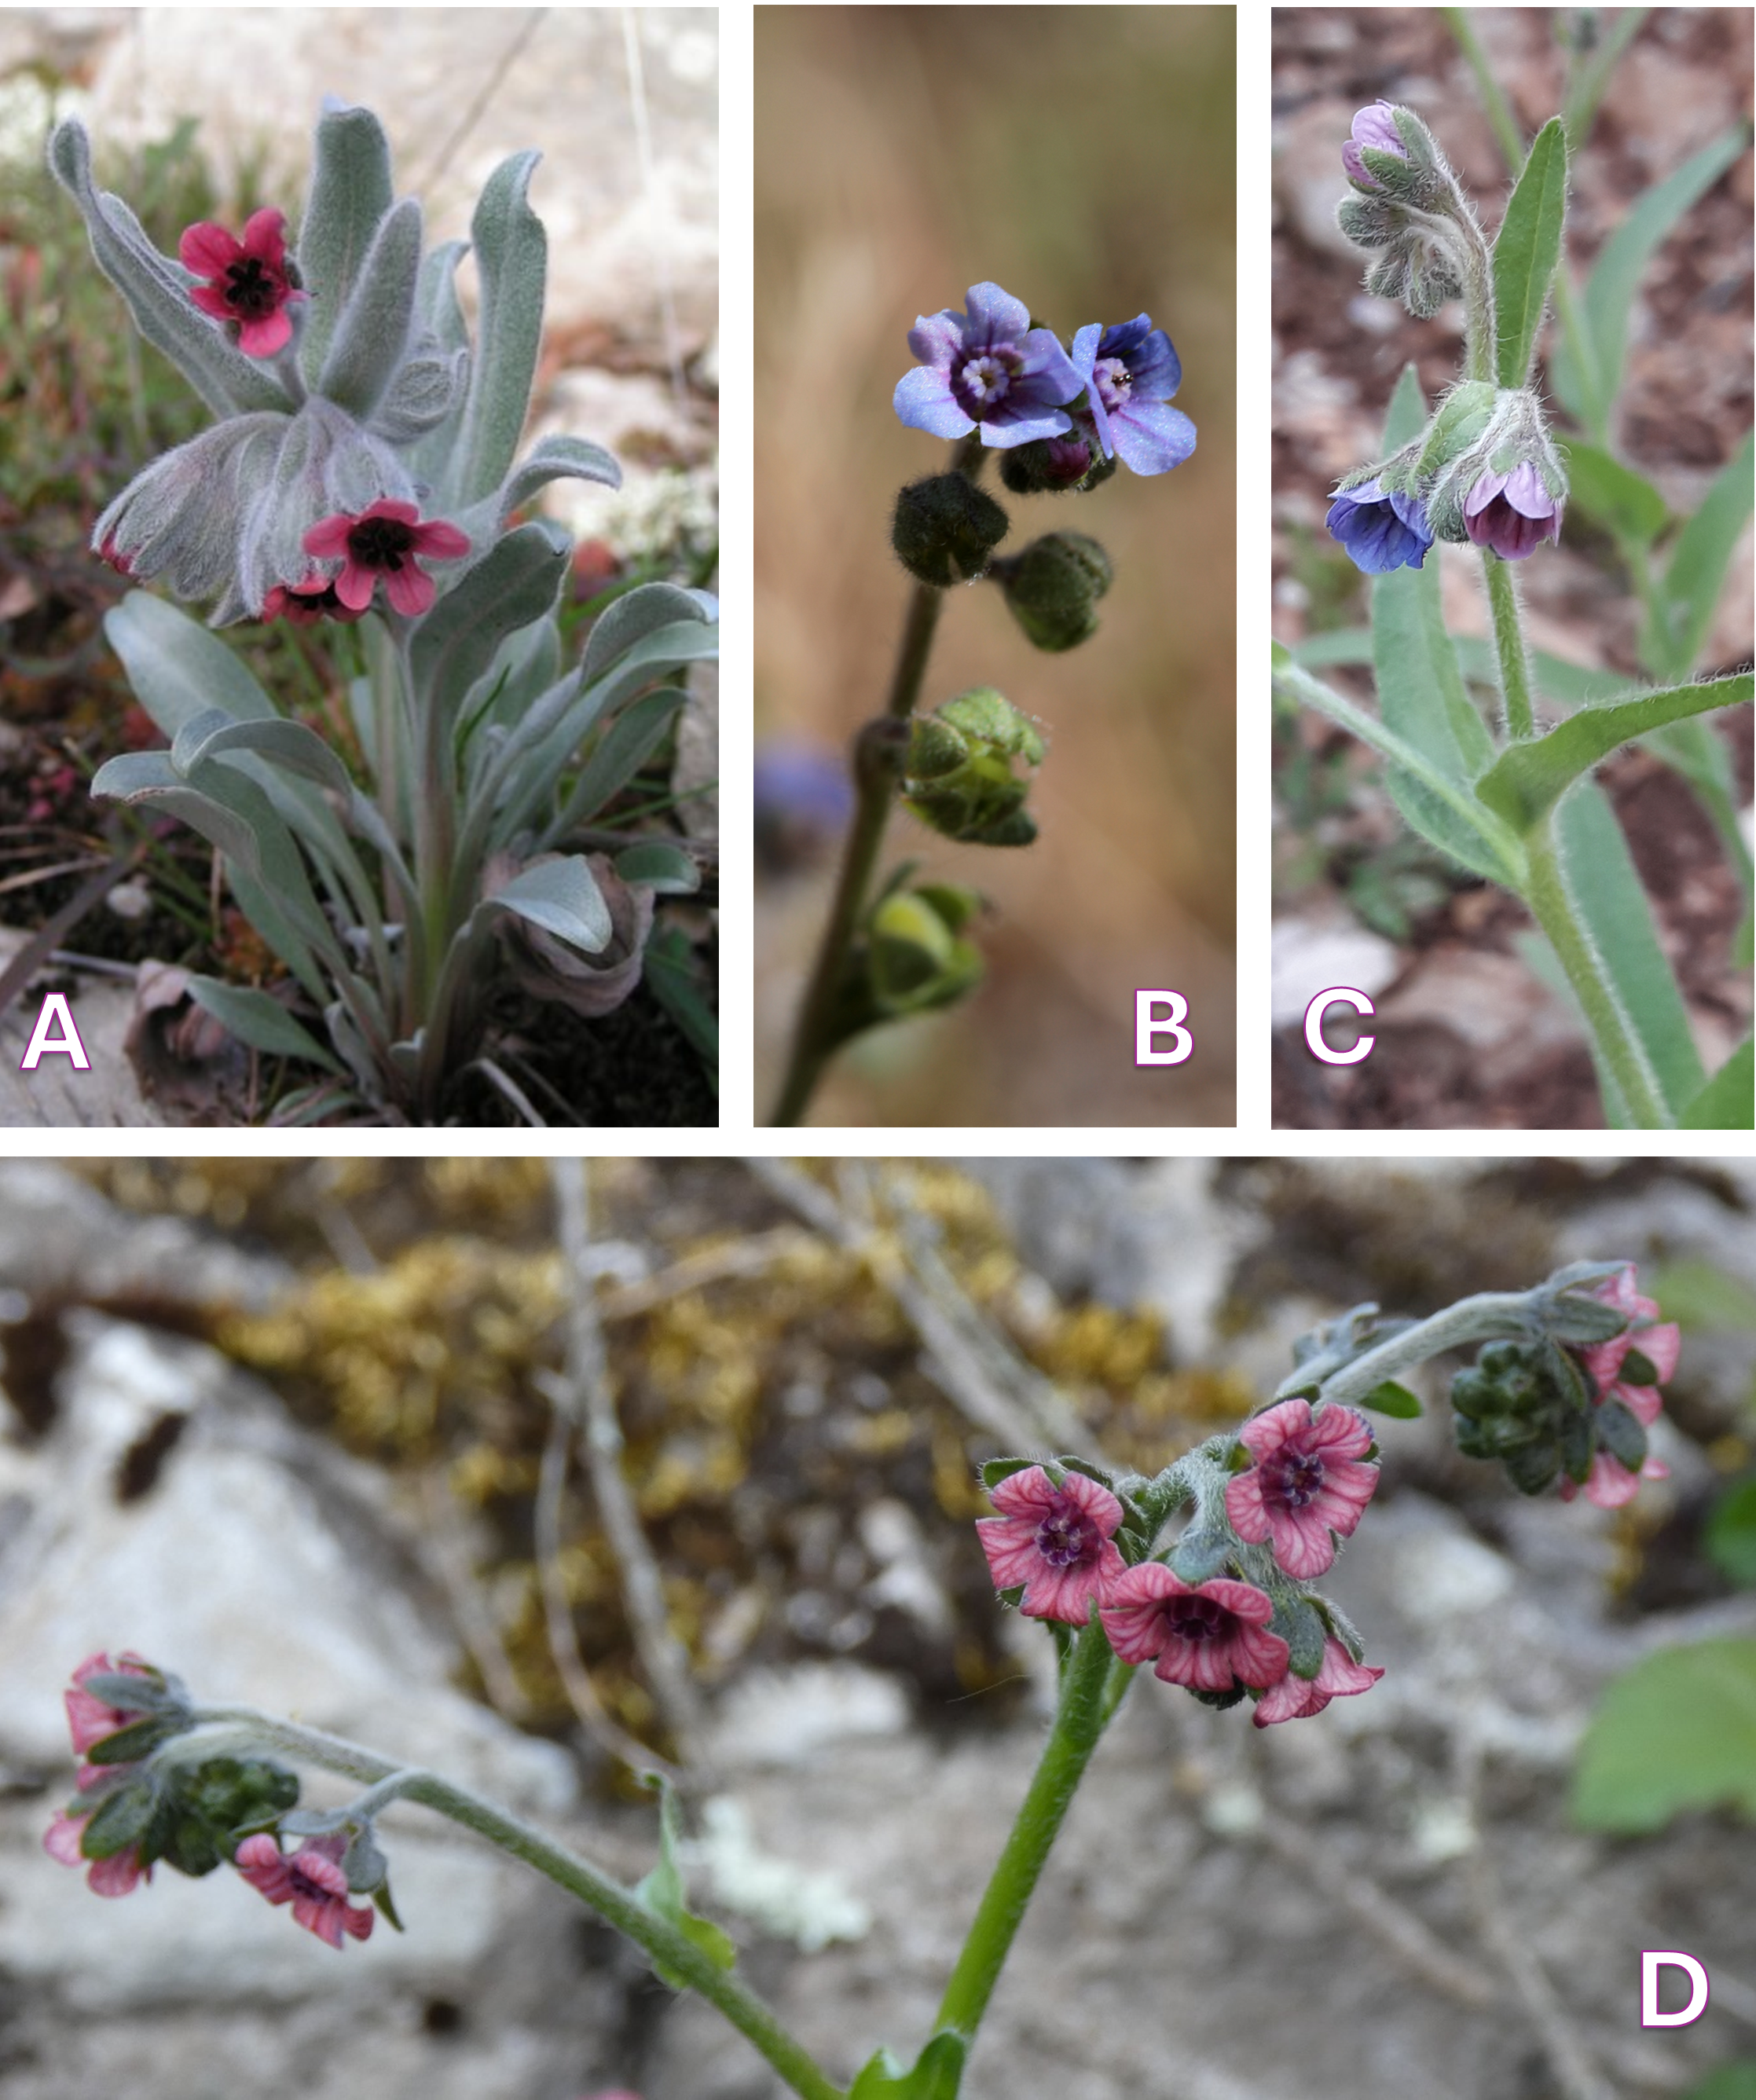
Une autre particularité de ces lapiaz réside dans la diversité des cynoglosses, notamment au contact des zones boisées. Il est en effet possible d’observer, au sein d’un même site, Cynoglossum cheirifolium, C. creticum, C. dioscoridis et C. pustulatum (Collectif, 2021 ; planche 4). Ce dernier constitue localement l’espèce la plus rare. En France, le cynoglosse à pustules est surtout connu dans l’arrière-pays montpelliérain, de Saint-Hippolyte-du-Fort à Saint-Guilhem-le-Désert, ainsi qu’à Païolive, où il forme parfois des populations importantes entre Les Vans et Balazuc. L’espèce y avait été confondue par le passé avec Cynoglossum germanicum, finalement absent du département de l’Ardèche. Bien qu’il existe une part d’herbier du cynoglosse à pustules sur la commune d’Aiguèze (Gabriel Tallon, 1925), l’espèce restait jusqu’à présent méconnue dans la dition. Les cynoglosses présentent une dispersion épizoochore, leurs fruits étant munis de nombreuses protubérances en forme de crochets facilitant leur accrochage au pelage des animaux. Chez certaines espèces, il a été montré que l’augmentation des populations d’ongulés sauvages favorise leur dispersion (Boulanger et al., 2011) ; de même, les troupeaux domestiques ont probablement joué un rôle significatif dans leur maintien, voire leur conservation, à une époque où la grande faune sauvage était moins abondante. Les graines possèdent une dormance liée aux téguments, qui agissent à la fois comme une barrière mécanique et comme un obstacle à la diffusion de l’oxygène, limitant ainsi le développement embryonnaire (Qi et al., 1993). La levée de dormance pourrait être étroitement liée à une intensification de l’activité biologique des sols, notamment sous l’effet de la décomposition de la litière forestière (dégradation des téguments par les champignons du sol). Dans la dition, le cynoglosse à pustules peut se montrer localement abondant dans les zones de dépérissement du chêne vert consécutives à des épisodes de stress hydrique. Cette dynamique pourrait constituer, à court terme, l’un des rares effets positifs du changement climatique sur la flore, en particulier dans des taillis où les rejets n’atteignent pas des stades de maturité avancés.
Atropa bella-donna, une solanacée peu fréquente en région méditerranéenne, était mentionnée dans la forêt domaniale de Bois Sauvage (Marron et al., 1996 ; Anonyme, 2003 ; plante à éclipse, vue en abondance à la suite d’une coupe sous l’ubac de Rez mais non retrouvée après, Jean-Paul-Mandin, non daté). Nous l’avons retrouvée en trois localités, au Pas de l’Âne sur la commune d’Aiguèze (NB, 14/08/2023), à l’aiguille de Sampzon (NB, 28/10/2024) et au sud de l’Event de Foussoubie (NB et Nicolas Bazin, 04/06/2026). L’espèce semble profiter des chablis de chêne vert au sein des couloirs d’éboulis en ubac, suggérant l’existence d’une banque séminale importante dans ce contexte forestier. La place écologique de Hyoscyamus albus et H. niger, également mentionnées dans ces secteurs (Collectif, 2012), reste à préciser.
Un dernier exemple est Papaver somniferum subsp. setigerum, vicariant sauvage méditerranéen de son cousin narcotique. Initialement signalé par René Blache au niveau de la falaise de Gaud, nous l’avons observé au Cros de l’Aiguizier, en bordure de la D 290 (NB, 31/05/2023), ainsi que dans les lapiaz au-dessus de la cascade de Pissevielle dans le vallon du Tiourre (NB, 14/05/2021). René Blache mentionnait également cette espèce à Chames, peut-être en continuité avec cette dernière station. Nous avons également découvert cette espèce côté gardois en face de Gournier entre la combe du Cros et de la Vieille (Frédéric Andrieu, NB & Nicolas Bazin, 25/05/2026). À l’inverse de la belladone, le pavot somnifère à soies semble préférer les lapiaz les plus chauds des gorges de l’Ardèche.
La bordure est du plateau, en particulier sur la commune de Saint-Marcel-d’Ardèche, est ponctuée de lentilles de limons ou de lœss, parfois associés à des éléments plus grossiers, tels que des galets siliceux qui atteignent plusieurs dizaines de centimètres de diamètre, hérités d’anciennes terrasses alluviales du Rhône. Ces substrats favorisent l’expression d’une flore originale. Ce secteur constitue également une des aires les plus chaudes du département de l’Ardèche, où les matorrals à Quercus coccifera et Cistus albidus sont particulièrement abondants. C’est dans ce contexte que se développent les principales populations auralpines de Crepis suffreniana (Pascault & Bianchin, 2021), autrefois signalé au bois des Bruyères (Mandin, 2003) et également rare en Languedoc. Cette espèce structure une association végétale originale (Carici nitidae-Crepidetum suffrenianae Molin. 1934), initialement décrite des sables dolomitiques de Provence. Le cortège comprend également des taxons tels que Parentucellia latifolia, Sabulina mediterranea, Logfia minima et Hypochaeris glabra, toutes absentes des autres associations de pelouses annuelles calcicoles (Le Gloanec, 2026).
Enfin, au contact des sols marneux aptiens, plusieurs dépressions humides partiellement aménagées sont connues, en particulier au Pradinas sur la commune de Saint-Marcel-d’Ardèche. Les mares temporaires y hébergent, dans les secteurs à plus longue durée d’inondation, Sisymbrella aspera subsp. aspera et Veronica anagalloides. Ces mares sont souvent entourées d’une mosaïque de pelouses à Deschampsia media, ponctuées de petites zones amphibies où se développent, entre autres, des joncs annuels dont Juncus sphaerocarpus, Blackstonia imperfoliata (Collectif 2009 ; aussi présente sur les suintements temporaires des basses gorges de l’Ardèche), Lythrum hyssopifolia et Polygala exilis. Ce dernier, rare mais discret, n’a été découvert récemment qu’en trois populations ardéchoises : dans la vallée du Granzon, à Lestong sur le ruisseau du Graveyron en marge du bois de Païolive (NB, 16/08/2021) et sur le plateau de Saint-Marcel-d’Ardèche (Kessler & Bianchin, 2010).
Des milieux équivalents existent en rive droite des gorges, au lieu-dit le Lac sur la commune d’Orgnac-l’Aven, où l’on observe Achillea ageratum (Collectif, 2015 ; Collectif, 2018) et Bupleurum tenuissimum (Collectif, 2012). Cette dernière espèce est abondante sur le littoral mais très ponctuelle à l’intérieur des terres. Une petite population de Mentha cervina a également été signalée à la Piscine du Lac, puis plus récemment à la Piscine (Frédéric Andrieu, NB & Nicolas Bazin, 25/05/2026) sur la commune du Garn. La première localité est située à moins de 300 m de la limite départementale avec l’Ardèche. Elle n’est pas connue dans ce département à l’exception d’une localité isolée découverte dernièrement sur le plateau du Coiron (Collectif, 2019 ; Bianchin et al., 2023). La menthe des cerfs est globalement en régression, sauf peut-être dans l’arrière-pays montpelliérain où subsiste un noyau important de population.
Les marnes oligocènes du sillon d’Alès, qui constituent le substrat de ces espèces, hébergent une flore singulière (Rigaux, 2014 ; Pattier, 2016 ; Bianchin, 2018c), comprenant également Chrysopogon gryllus, Globularia vulgaris, Hedysarum boveanum et Peucedanum officinale. Ces formations n’affleurent que très marginalement dans le périmètre du projet de Grand Site, elles occupent des surfaces plus importantes dans la plaine comprise entre Barjac, Saint-Sauveur-de-Cruzières et Vagnas. Sur les communes d’Orgnac-l’Aven et de Vagnas, Convolvulus lineatus a été observé à plusieurs reprises (Collectif, 2018), à près de cinquante kilomètres des stations gardoises et vauclusiennes les plus proches. Deux autres stations ont été découverte récemment sur le plateau du Laoul, au Serre de Vinson, sur la commune de Lanas (NB, 23/04/2026) et à Beauregard sur la commune de Saint-Remèze (Nicolas Bazin, 11/06/2026). Toujours dans le secteur du sillon d’Alès, la présence de Dipcadi serotinum a été mise en évidence au Serre de la Croix, sur la commune de Vagnas (NB, 25/05/2026). L’espèce n’avait jamais été signalée en Ardèche et cette station, constituée de seulement trois individus, figure parmi les plus septentrionales actuellement connues en France.
La Dent de Rez et le plateau du Laoul (planche 5)
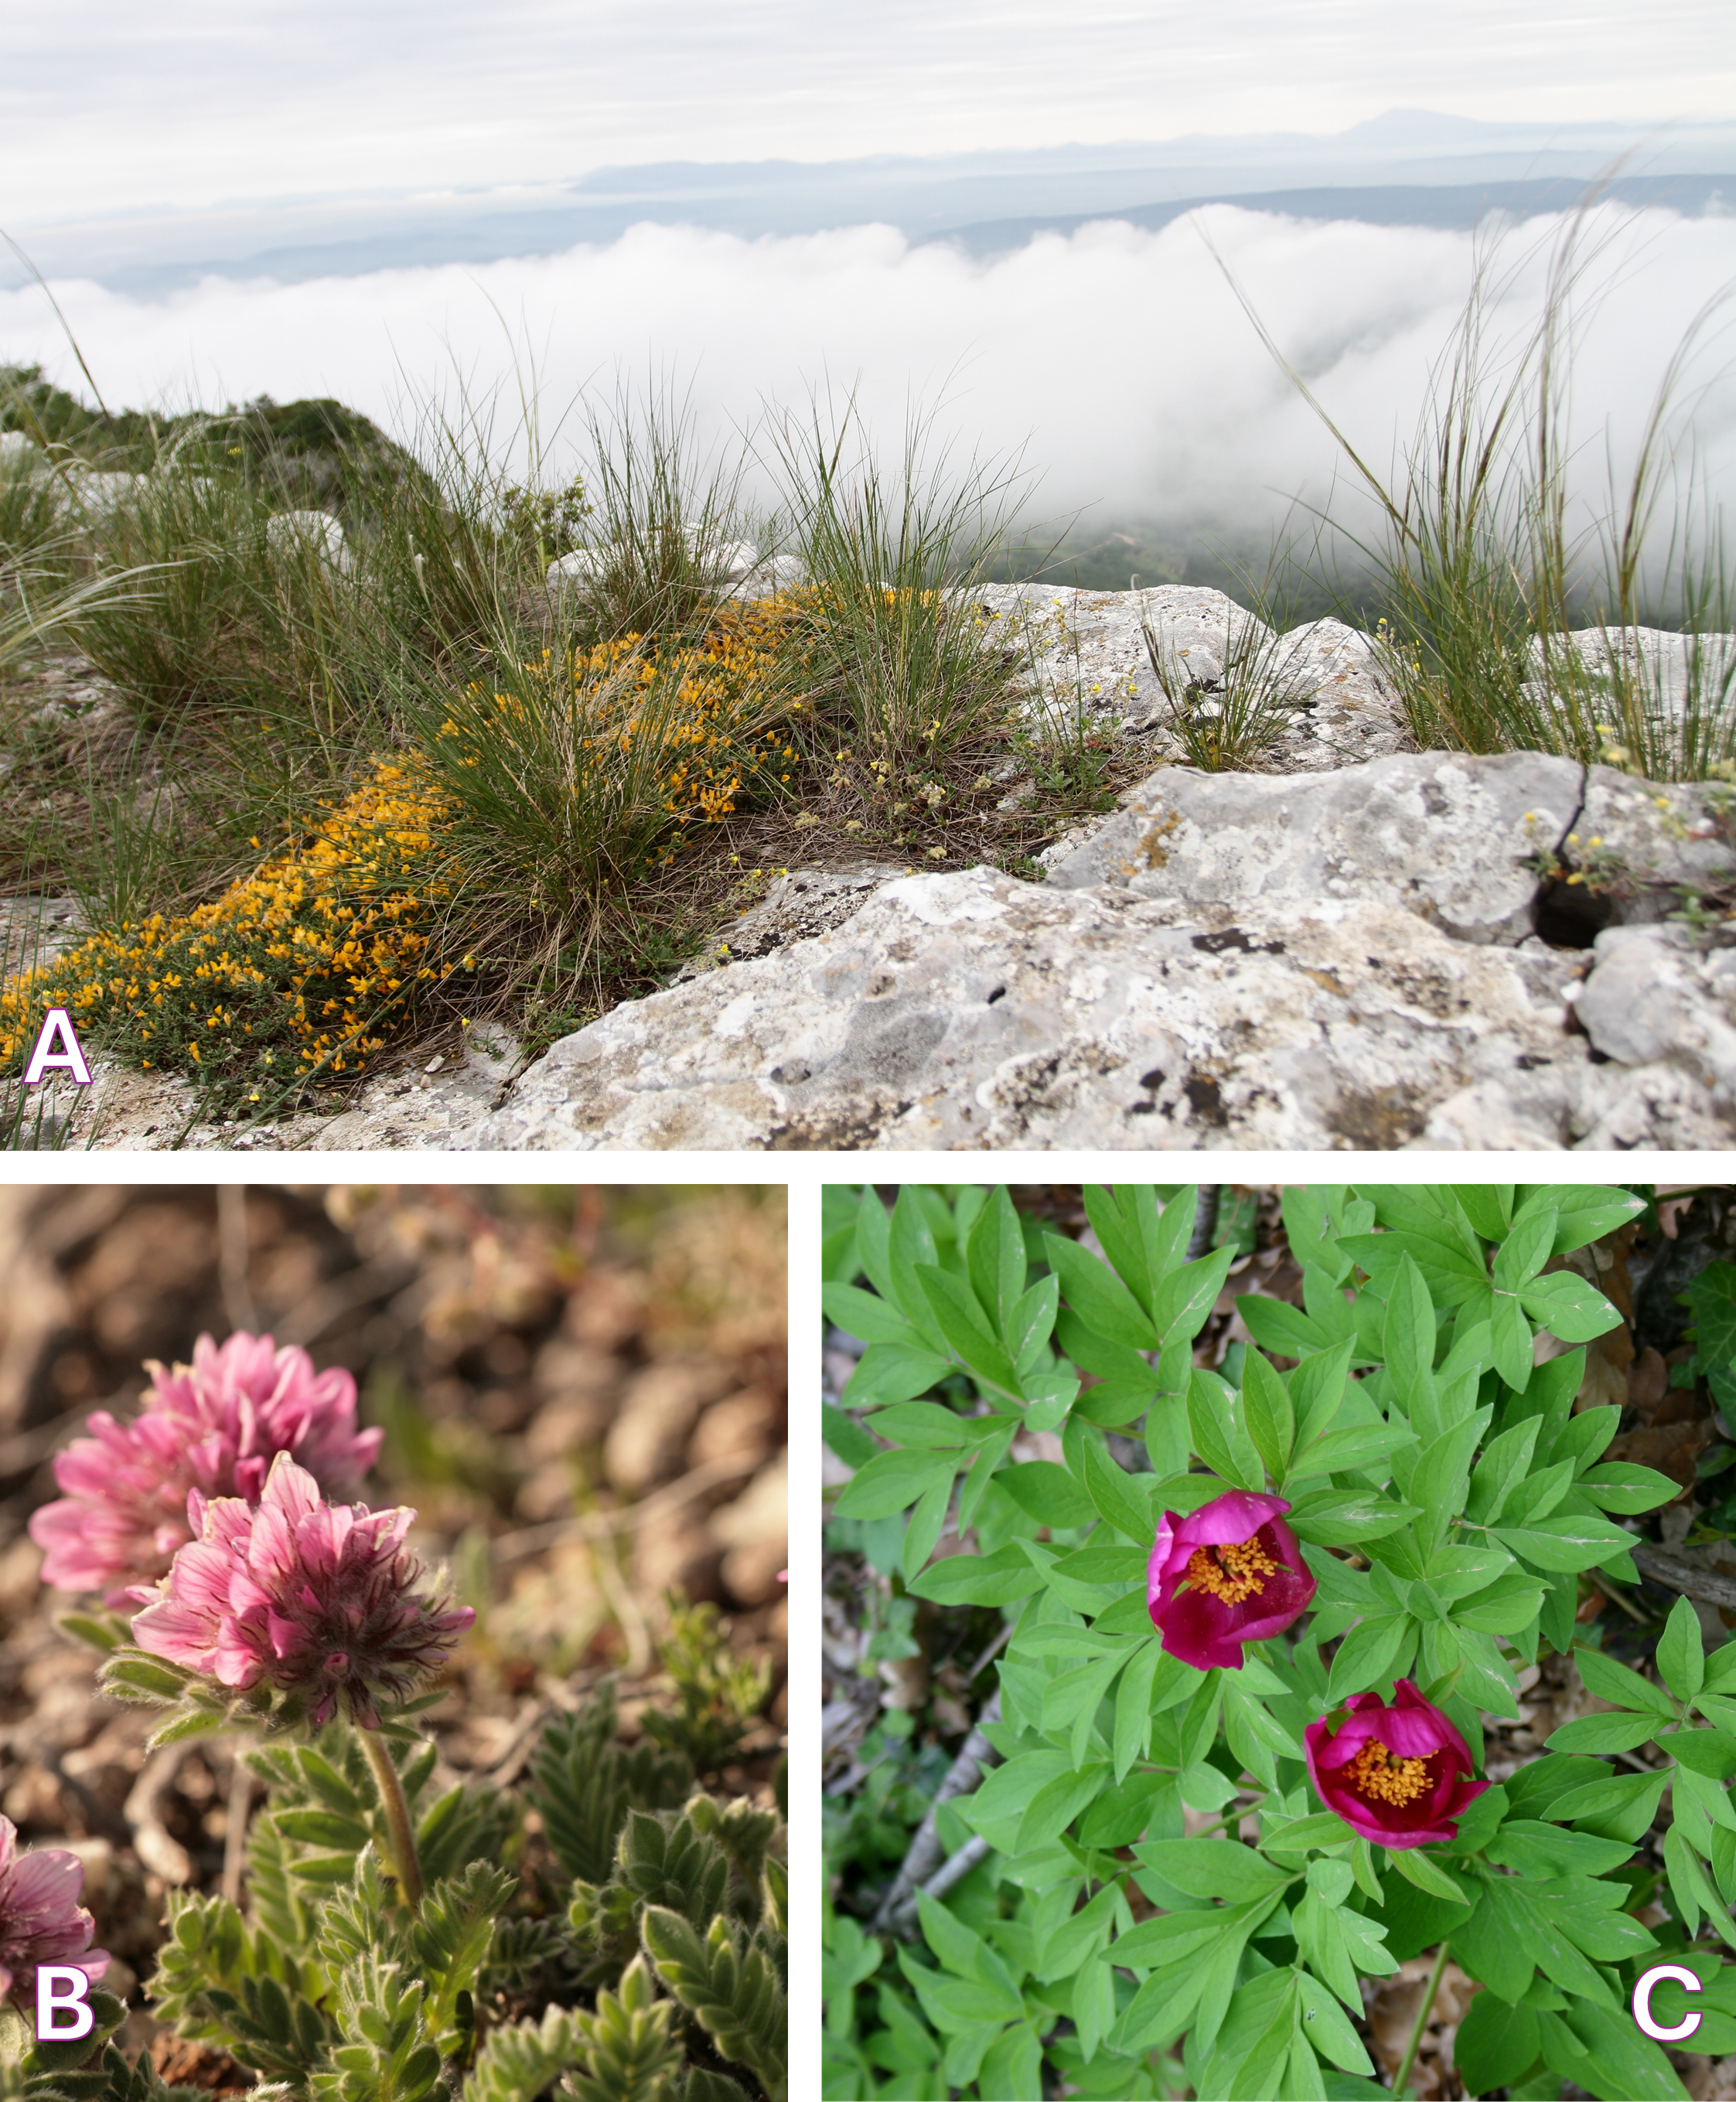
Le massif de la Dent de Rez, dont le sommet culmine à 726 m d’altitude, constitue la plus haute montagne calcaire ardéchoise après l’Escrinet. Les rebords du plateau abritent une flore riche en orophytes méditerranéennes (Breistroffer, 1979 ; Descoings et al., 2011), appartenant la plupart à l’ordre des Ononidetalia striatae Braun-Blanq. et al. ex Braun-Blanq. 1950. Parmi celles-ci figurent Anthyllis montana, Arenaria aggregata (population de seulement sept individus ; Collectif, 2021), Armeria arenaria subsp. bupleuroides (retrouvé au nord de Ranc de Bounet par Simon Contant, non daté), Astragalus hypoglottis, Crepis albida, Galium glaucum, Genista pulchella, Iberis saxatilis, Potentilla velutina, Scorzonera austriaca subsp. bupleurifolia, Senecio gerardii, Teucrium aureum, Ononis striata ou encore Trifolium alpestre. Il convient également de signaler la présence de Lavandula angustifolia, autrefois exploitée pour la production d’huile essentielle (Coste, 2025). L’espèce y connaît une forte régression, dont les causes restent encore à élucider (dérèglement climatique, phytoplasme de Stolbur, abandon du pastoralisme ovin ?).
Ce massif joue sans doute un rôle biogéographique majeur, aux côtés de la montagne de Serre et du mont Bouquet (Gard), en constituant un relais de dispersion entre les Préalpes et les causses du Massif central, selon un fonctionnement de type « corridor en pas japonais ». Ce rôle pourrait toutefois être fragilisé dans le contexte actuel de forçage climatique. Certains orophytes descendent jusqu’au plateau du Laoul, en particulier sur les marnes écorchées (anthyllide des montagnes, crépis blanchâtre, genêt joli, gaillet glauque, potentille veloutée, scorsonère à feuilles de buplèvre).
Si Scutellaria alpina n’a pas été revue récemment à la dent de Rez, un noyau subsiste au sud de la commune d’Orgnac-l’Aven (Collectif, 2006), qui constitue l’une des stations les plus basses connues en France. Par ailleurs, plusieurs espèces nouvelles pour l’Ardèche ont été récemment mises en évidence sur le massif de la Dent de Rez : Hypericum hyssopifolium, observé dans les couloirs herbeux en marge des buxaies en 2020 à l’ubac de Rez (Collectif, 2021) et aux Soleylières (NB & OP, 15/06/2023), Muscari matritense (aux Soleylières ; Collectif, 2023), Hieracium humile (dans les parois nord-est au-dessus du Champ de Font Thyollé ; Collectif, 2021) et Scrophularia provincialis qui n’était pas connu à l’ouest du Rhône. Cette dernière espèce est pourtant présente en plusieurs points du sommet de la Dent de Rez (NB & Nicolas Bazin,12/12/2024) et dans les éboulis des pentes nord (NB, 09/05/2025 ; NB & Nicolas Bazin, 15/04/2026). Dianthus pungens constitue aussi une observation notable : d’abord repéré sur un affleurement rocheux en bordure du sentier entre les Hellys et le Castellas, il a ensuite été observé en plus grande abondance sur les pentes herbeuses des Soleylières (Collectif, 2023). Cette mention correspond vraisemblablement à celle de « Dianthus subacaulis » signalée lors de la 120ᵉ session extraordinaire de la Société botanique de France en Ardèche (1988-1989 ; Descoings et al., 2011). L’espèce, déjà indiquée dans ce secteur par Tallon (1954), se situe ici à proximité de sa limite orientale de répartition et n’est connue en Ardèche que d’une autre localité, dans les parois sous la chapelle de Saint-Privat sur la commune de Saint-Sauveur-de-Cruzières (Tallon, 1954 ; Collectif, 2012).
Plusieurs taxons historiques restent néanmoins à rechercher, tels que Ononis rotundifolia, mentionné à la Dent de Rez (Descoings et al., 2011) ainsi qu’à Salavas en direction de Sampzon (Breistroffer, 1957 ; également noté dans ses carnets le 29/05/1969 en compagnie de Geranium sanguineum et Cyanus semidecurrens), possiblement dans les mêmes secteurs que Lathyrus pannonicus (non revu à ce jour). De même, Gentianopsis ciliata, signalé aux Hellys (Tallon, 1954), serait à actualiser au sein des pelouses marneuses écorchées.
Le secteur de la Dent de Rez héberge également un cortège d’espèces liées aux friches pâturées, maintenues par le passage régulier des troupeaux. Parmi celles-ci figurent Phlomis herba-venti, abondant notamment au col d’Eyrole, à Eyrole, à Gogne et sur le plateau de Saint-Remèze, Orobanche reticulata, parasite du Chardon du Vivarais et probablement encore sous-observée, ainsi que Cirsium ferox et Achillea nobilis (Tallon, 1954), également observé sur les communes de Saint-Marcel-d’Ardèche et de Saint-Remèze (Collectif, 2025).
Le compartiment forestier du massif apparaît aujourd’hui fortement altéré. Toutefois, dans le secteur cartographié sous le nom de Ubac de Rez, persiste une flore originale, marquée par la présence de Convallaria majalis, espèce à reproduction majoritairement clonale témoignant d’une certaine ancienneté forestière et dont il s’agit ici de l’unique station du Bas-Vivarais. Ce cortège comprend aussi Campanula persicifolia, Lathyrus vernus, Katapsuxis silaifolia, Narcissus poeticus, Genista pilosa, Solidago virgaurea, Salvia glutinosa, Ilex aquifolium, Rhamnus alpina ou encore Acer opalus. L’ensemble confère à ce secteur une tonalité montagnarde et traduit la présence de sols relativement évolués. Ce basculement floristique s’opère entre 500 et 650 m d’altitude, sur une superficie d’une trentaine d’hectares environ. Il pourrait correspondre à des formations relictuelles de hêtraies à buis (Buxo sempervirentis-Fagetum sylvaticae Braun-Blanq. & Susplugas 1937), comparables à celles observées dans la forêt de Barrès (Petetin, 2000) ou à Marsanne (Drôme), mais dont l’essence dominante, le hêtre, aurait été éradiquée.
Une autre observation notable concerne Arctostaphylos uva-ursi, espèce habituellement rencontrée par les botanistes ardéchois dans les landes subalpines des sucs, mais aussi fréquente dans les causses du Massif central et les Alpes internes. Une unique station, constituée d’une touffe de plusieurs mètres carrés vraisemblablement ancienne, est actuellement connue (Collectif, 2024). Sa présence suggère l’existence passée de formations saxicoles ouvertes à pin sylvestre, essence encore présente localement, associée au pin noir d’Autriche.
Sur les versants et le plateau du Laoul, la chênaie pubescente à buis (Buxo sempervirentis-Quercetum pubescentis Braun-Blanq. ex Bannes-Puygiron 1933) occupe de vastes superficies. Certaines espèces peu communes dans la région, telles que Cyanus semidecurrens ou Paeonia officinalis subsp. microcarpa, témoignent d’une relative continuité forestière. Cette dernière sous-espèce, considérée comme ibéro-languedocienne, serait remplacée à l’est du Rhône par une autre sous-espèce (P. officinalis subsp. huthii) ; toutefois, la délimitation et l’histoire évolutive de ces taxons restent à préciser. La pivoine officinale (au sens large) résulterait d’une hybridation tétraploïde ancienne entre P. obovata native d’une région s’étendant de la Chine à l’Extrême-Orient russe et au Japon et P. tenuifolia présente de la Serbie au sud-ouest de la Sibérie et au Caucase. Ce taxon serait né il y a plus de 21 millions d’années puis aurait étendu son aire à travers l’Europe (Zhou et al., 2021).
Les espaces agricoles occupent par ailleurs une proportion non négligeable de la dition. Sur les communes de Saint-Remèze et d’Orgnac-l’Aven, près d’un cinquième de la surface est consacré aux terres arables. Une quinzaine d’espèces messicoles remarquables y ont été signalées historiquement, dont environ la moitié n’ont pas été revues récemment, parmi lesquelles Asperula arvensis, Bupleurum subovatum, Ceratocephala falcata, Conringia orientalis, Delphinium pubescens, Gypsophila vaccaria, Neslia paniculata… D’autres, telles que Adonis annua (quelques mentions récentes sur les communes de Bidon, Larnas et Saint-Marcel-d’Ardèche), Bupleurum rotundifolium (signalée récemment à Lagorce, les autres données sont anciennes), Galium tricornutum, Roemeria hispida (observé à Fontaynes sur la commune de Saint-Marcel-d’Ardèche) ou Thymelaea passerina apparaissent aujourd’hui en situation critique et pourraient être menacées de disparition à court terme, voire sont déjà localement éteintes.
Les prairies hygrophiles de Saint-Vincent et de la Foussoubie (planche 6)
En région méditerranéenne, les stress hydriques estivaux limitent fortement l’expression des flores tempérées qui structurent les prairies. Cette contrainte est accentuée dans les systèmes karstiques, où la ressource en eau de surface est rare. Dans ce contexte, les zones humides apparaissent comme de véritables « oasis » fournissant une ressource fourragère abondante et de qualité, ce qui explique les aménagements dont elles ont fait l’objet depuis des siècles. Les parcelles agricoles bien délimitées ont ainsi progressivement remplacé les anciens lacs temporaires et les boisements hygrophiles.
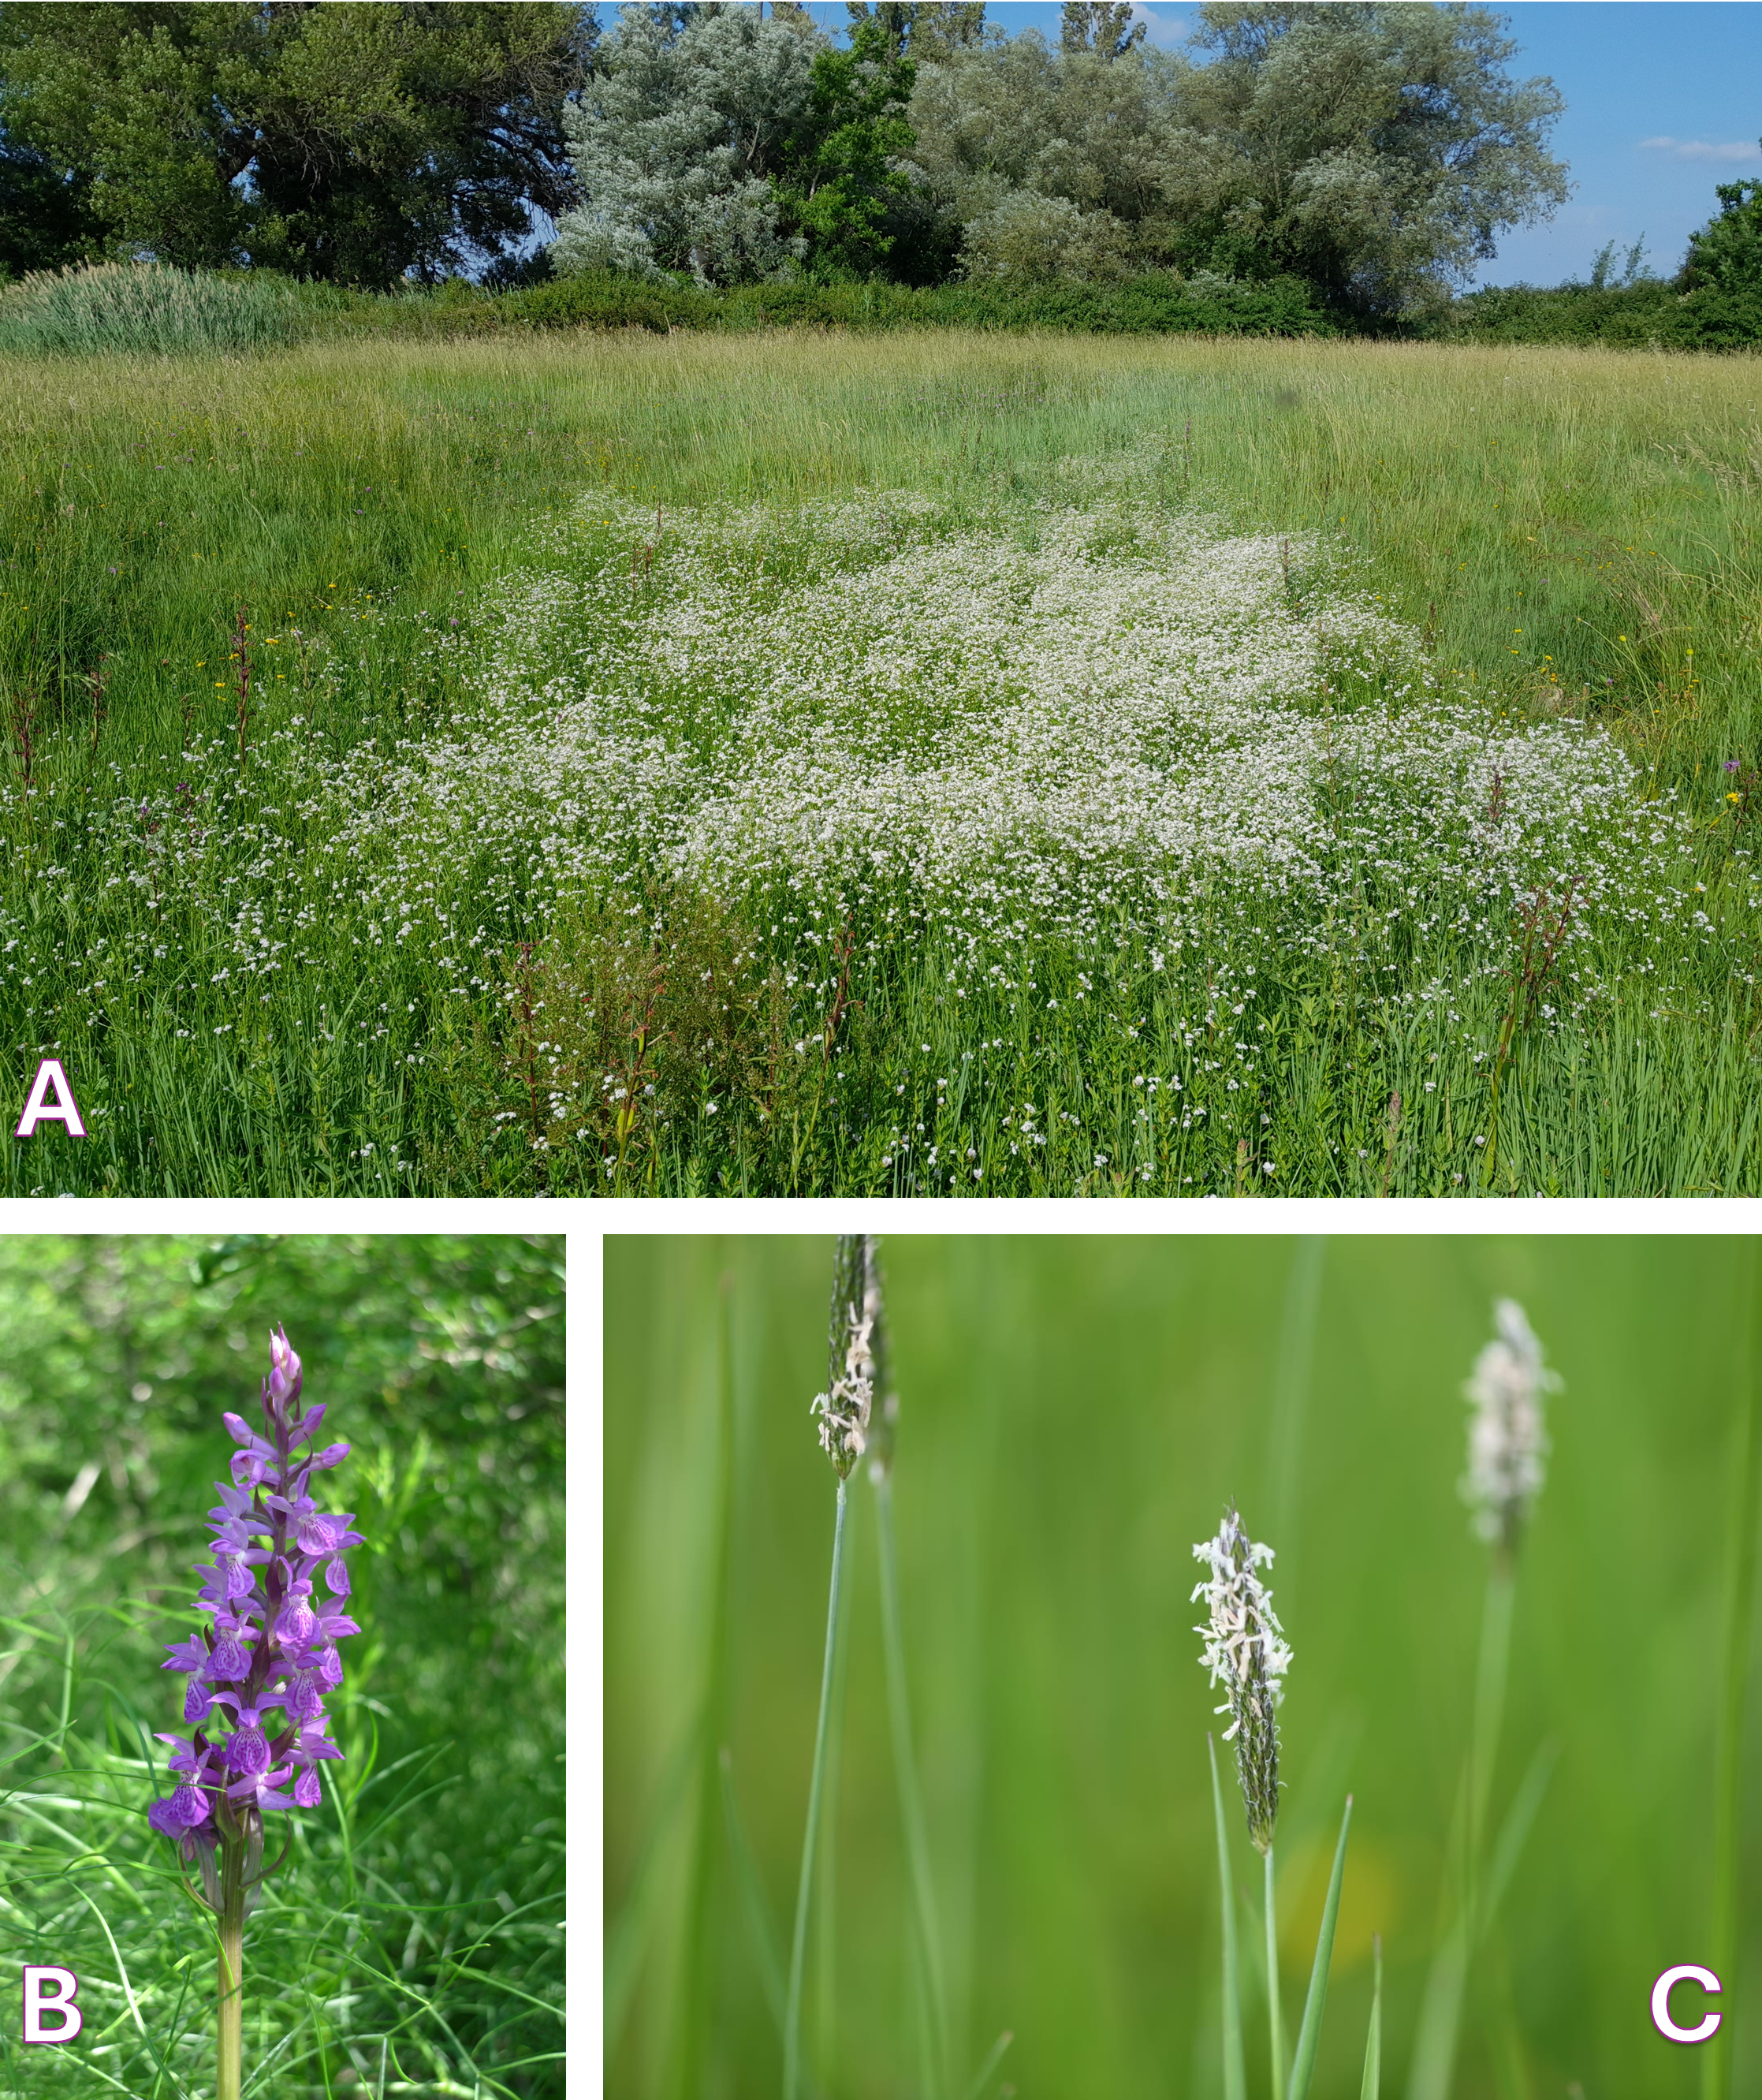
À l’échelle du projet de Grand Site, deux ensembles majeurs de prairies sont identifiés : Saint-Vincent, sur la commune de Gras (environ 20 ha ; Jullian, 2003 ; Mandin & Bauvet, 2004) ainsi que la Foussoubie, à Vagnas et Labastide-de-Virac (moins de 10 ha ; Mandin, 2012). En fonction de la topographie et des modes d’exploitation (fauche ou pâturage), plusieurs unités de végétation s’y succèdent.
L’association à jonc strié et scirpe des marais (Junco striati-Eleocharitetum palustris Choisnet in Le Hénaff et al. 2021) se développe dans les dépressions topographiques les plus basses. Dominée par Eleocharis palustris, elle abrite plusieurs espèces patrimoniales, parmi lesquelles Alopecurus bulbosus, Gratiola officinalis, également connu de quelques stations relictuelles dans les gorges de l’Ardèche (Peyronel, 2007), ainsi que Teucrium scordium, aussi bien représenté dans la vallée de l’Ibie (Leprince et al., 2012). Cette association semble être celle qui a le plus fortement régressé, les secteurs correspondants – soumis à des inondations prolongées – ayant été drainés afin de permettre leur exploitation par fauche. Sur le site de la Foussoubie, la zone humide abrite les seules populations ardéchoises actuellement connues d’Oenanthe fistulosa (Mandin, 2012 ; observé également en amont lors de la sortie SBA du 3 mai 2026). L’espèce a également été signalée à Boffres, dans le nord du département (Beauvisage & Bretin, 1906). Principalement distribuée en Europe, l’œnanthe fistuleuse est présente en France dans la moitié nord et à proximité du littoral méditerranéen, tout en présentant de nombreuses lacunes dans le reste de son aire.
À un niveau topographique légèrement supérieur, mais encore très humide, se développe l’association à orchis occitan et silaüs des prés (Dactylorhizo occitanicae-Silaetum silai Choisnet 2019 nom. ined. (1)). Elle héberge d’importantes populations d’Anacamptis laxiflora, Dactylorhiza occitanica et Juncus anceps ; (Kessler & Bianchin, 2010). Le jonc à feuilles aplaties présente ses principales populations françaises dans le Bassin parisien, ainsi que le long des façades atlantique et méditerranéenne ; quelques localités isolées sont également connues à la limite des départements de l’Ardèche, du Gard, du Vaucluse et de la Drôme. L’orchis occitan, quant à lui, n’est connu que dans le bassin du Rhône, en aval de Valence, où il pourrait être endémique.
On observe ensuite l’association à fétuque à feuilles capillaires et gaudinie fragile (Festuco trichophyllae-Gaudinietum fragilis Choisnet in Le Hénaff et al. 2021), qui caractérise les prairies légèrement hygrophiles. Elle accueille Ophioglossum vulgatum et Aristolochia rotunda, cette dernière constituant la plante-hôte du papillon diane (Zerynthia polyxena).
Enfin, les niveaux topographiques les plus élevés correspondent à l’association à salsifis d’Orient et sauge des prés (Tragopogono orientalis-Salvietum pratensis Choisnet in Le Hénaff et al. 2021), typique des prairies de fauche sur substrats calcaires en contexte méditerranéen.
Une partie de ces formations végétales dérive probablement d’anciens bas-marais alcalins à Schoenus nigricans ou de communautés à Molinia arundinacea. Des fragments plus proches de l’état primaire subsistent encore en bordure de l’Ibie, de la Nègue et de leurs affluents, en particulier à proximité d’exsurgences à eaux limpides et froides. Ces habitats abritent Epipactis palustris et Eleocharis quinqueflora (Francis Kessler, 20/09/2007). Malgré leur originalité, ces milieux restent encore insuffisamment documentés à l’échelle du territoire. La présence de Spiranthes aestivalis, autrefois signalé au bois des Bruyères (Breistroffer, 1960), y est attendue et mériterait d’être recherchée.
Le bois des Bruyères
Partagé entre les communes de Salavas et de Vagnas, le bois des Bruyères constitue un haut lieu de la botanique ardéchoise (Tallon, 1954 ; Breistroffer, 1957, 1960 ; Durnerin & Mandin, 1992 ; Mandin, 2003 ; Sulmont, 2007 ; Sulmont & Castioni, 2013 ; Pattier, 2016 ; Castioni, 2017 ; Mandin et al., 2021). Il se caractérise par une flore silicicole comparable à celle des secteurs les plus thermophiles des Cévennes, en contact avec des cortèges plus classiques des substrats marneux et calcaires du Bas-Vivarais.
Jusqu’à récemment, l’organisation des peuplements forestiers y demeurait peu connue en dehors des documents d’aménagement de l’ONF. Les travaux préalables à l’élaboration du catalogue des végétations forestières du Massif central (Renaux et al., 2023) ont permis de mettre en évidence des peuplements relativement purs de chêne sessile et surtout de Quercus robur (Collectif, 2022), ce dernier n’ayant fait l’objet auparavant que d’une mention isolée (Vincent Hugonnot, 03/05/2001). Cette ségrégation semble répondre à des contraintes écologiques : les fonds de vallons humides, probablement en lien avec une nappe riche en carbonates, sont occupés par le chêne pédonculé, tandis que les plateaux lessivés, plus secs et acides, sont favorables à Quercus petraea. Quercus pubescens est absent du cœur du bois des Bruyères, il ne s’observe qu’au contact des sols calcaires.
Une organisation comparable est observée dans les basses Cévennes ardéchoises (notamment au bois des Bartres), bien que les chênes caducifoliés y soient fréquemment hybridés, traduisant des contacts plus anciens et répétés, favorisés par les perturbations (déforestation, incendies) et une sécheresse accrue donnant l’avantage aux hybrides avec le chêne pubescent. La présence de peuplements relativement purs de chêne pédonculé dans un contexte méditerranéen, où l’espèce est naturellement rare, pourrait ainsi témoigner d’une longue continuité forestière. La caractérisation phytosociologique de ces communautés nécessiterait toutefois des comparaisons avec d’autres sites méditerranéens analogues. Leur composition présente certaines affinités avec les hêtraies de la chartreuse de Valbonne, dans le Gard, où le chêne pédonculé n’est pas attesté. À l’inverse, la présence passée du hêtre au bois des Bruyères peut être envisagée, sans qu’aucun écrit n’ait toutefois pu être mis en évidence à ce jour.
Les fonds de vallons à chêne pédonculé abritent une des deux populations ardéchoises de Carex olbiensis, espèce présente aussi dans la forêt de la chartreuse de Valbonne et qui atteint le nord des Cévennes dans la vallée de la Boulogne sur la commune de Vesseaux (NB, 15/05/2026 ; NB & Nicolas Guillerme, 28/05/2026), par ailleurs plus fréquente dans les chênaies sempervirentes fraîches de Provence siliceuse que dans l’arc languedocien (Andrieu et al., 2025). Au bois des Bruyères, le dernier recensement (2022) a permis d’y dénombrer moins de 250 individus.
Les lisières des chênaies acidiphiles accueillent plusieurs espèces peu communes. Vicia cassubica, répartie de l’Europe tempérée à l’Asie occidentale, est principalement connu en France des régions atlantiques entre les Pays de Loire, le Bassin aquitain et le Nivernais, ainsi que les Cévennes à la limite des départements de l’Ardèche et du Gard. Il est ici assez fréquent, notamment en bordure de pistes. V. orobus, mentionné autrefois par René Blache, correspond sans doute à une confusion avec ce taxon. Ces formations sont parfois accompagnées de Patzkea paniculata subsp. spadicea, espèce nord-ouest méditerranéenne atteignant ici sa limite orientale, avec les populations de la chartreuse de Valbonne.
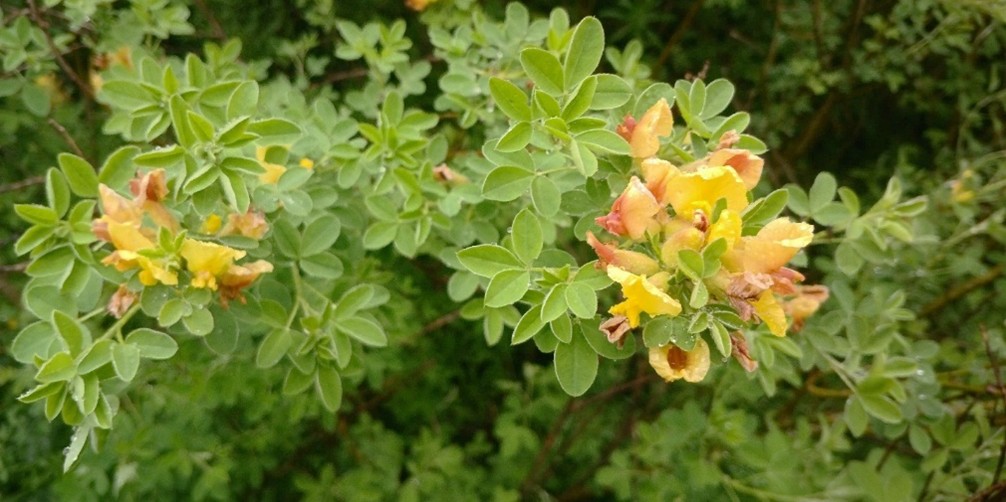
Il convient aussi de signaler la découverte récente de deux petites stations de Silene viridiflora (Collectif, 2022, NB, 11/08/2025), espèce jusque-là connue en Ardèche du seul bois des Bartres (Breistroffer, 1957 ; Bianchin, 2016, 2018a), assurant au bois des Bruyères une continuité biogéographique entre les Cévennes et la Valbonne. À la transition avec les chênaies pubescentes apparaît une autre originalité floristique : Cytisus elongatus (Collectif, 2004 ; photo 2), surtout présent du centre de l’Europe à l’Asie. Sa distribution française est limitée au sud de la bordure du Massif central (vallée du Rhône, Coiron, Cévennes). Il est fréquemment associé à Asparagus tenuifolius, également rare en Ardèche et en Languedoc.
Le pin de Salzmann (Pinus nigra subsp. salzmannii) a été récemment identifié dans la partie nord du site (Laurent Golliard, 01/05/2024) ; situé dans un contexte de plantations anciennes, des analyses génétiques sont en cours afin de préciser son statut d’indigénat. La présence de Cytinus hypocistis (Breistroffer, 1957 ; Mandin, 2003 ; Sulmont & Castioni, 2013 ; Pattier, 2016), parasite du Ciste à feuilles de sauge, pourrait toutefois plaider en faveur d’une ancienneté des landes boisées à pins. Cette dernière espèce est considérée comme un indicateur fiable de l’état de conservation des écosystèmes méditerranéens en raison d’interactions complexes avec les animaux (de Vega et al., 2009). Elle est connue en Ardèche au bois des Bartres, en bordure du plateau de Montselgues et au bois des Bruyères.
Plusieurs autres espèces, en limite d’aire de répartition, sont également signalées, notamment parmi les taxons des landes atlantiques, Ulex europaeus (René Blache, 05/05/1974) et U. minor (René Blache, 1976 ; Collectif, 2012), ainsi que des espèces à affinité plus continentale, comme Genista germanica (Tallon, 1954).
Enfin, quelques irradiations silicicoles atteignent les environs de Vagnas, où Breistroffer avait noté le Trifolium leucanthum en direction de Labastide-de-Virac dans une vigne sablonneuse (Breistroffer et al., 1974 ; Coulot et al., 2001). Il était associé notamment à Trifolium hirtum et à Silene gallica, qui pourraient constituer de bons guides pour rechercher cette espèce toujours considérée comme non revue du département de l’Ardèche. Il en est de même pour Aira cupaniana, noté dans les carnets de Breistroffer (04/05/1955) au niveau d’une clairière du bois de Ronze, au sud de Labastide-de-Virac.
Rares sont les zones humides qui subsistent au bois des Bruyères. Le ruisseau de Lardière et son affluent de Combe Escure conservent néanmoins quelques fragments de bas-marais, au sein desquels de petites populations de Isolepis cernua ont été observées récemment (Collectif, 2025). Cette espèce discrète, déjà signalée sur le site (Tallon, 1954), est aussi connue d’une autre localité ardéchoise au ruisseau de Condoubrie sur la commune de Bessas. Revol la cité également à Saint-Andéol-de-Vals et Saint-Julien-du-Serre (lieu-dit Bourlenc ; Breistroffer, 1957).
4. Vers des indicateurs d’état de la flore, d’adaptation et de réussite des opérations de restauration
4.1. Limites des inventaires exhaustifs et structuration de l’acquisition de données
Au regard de la superficie importante du projet de Grand Site, la mise en œuvre d’un inventaire exhaustif de la flore, de type ATBI (All Taxa Biodiversity Inventory ; Ichter et al., 2024), reposant sur une pression d’observation homogène à l’échelle de l’ensemble du territoire, apparaît difficilement réalisable. Un inventaire général de la biodiversité est en cours sur l’écocomplexe de Païolive (Blandin et al., 2016) ; dans une perspective comparative, il serait pertinent d’y jumeler les proches gorges de l’Ardèche.
Des approches intermédiaires peuvent être envisagées, en particulier à travers les Atlas de la biodiversité communale (ABC), dont le périmètre pourrait couvrir l’ensemble des communes du Syndicat de gestion des gorges de l’Ardèche, et ainsi celui du projet de Grand Site. Toutefois, dans la pratique, l’évolution des connaissances repose largement sur l’agrégation de données issues de sources multiples, souvent non protocolées ou produites en dehors de cadres d’inventaires systématiques.
À l’échelle du territoire, les prospections conduites depuis plusieurs décennies par la Société botanique de l’Ardèche constituent une contribution majeure, avec plus d’une cinquantaine de sorties déjà réalisées. Par ailleurs, dans un site à forte attractivité comme les gorges de l’Ardèche, le développement du tourisme naturaliste représente une opportunité pour l’acquisition de données floristiques (projet iNaturalist « Gorges de l’Ardèche » ; voir aussi par exemple sur un autre territoire Pl@ntNet-Cévennes, Bonnet et al., 2020). L’organisation de séjours scientifiques ou de stages botaniques pourrait ainsi renforcer cette dynamique, sous réserve de structurer efficacement la collecte et la centralisation des données.
Dans ce contexte, la mise en place d’indicateurs macroscopiques de progression des connaissances apparaît particulièrement pertinente. Ceux-ci peuvent s’appuyer sur l’évolution de la pression d’observation ou sur le nombre d’espèces menacées recensées par maille (par exemple de 200 × 200 m²). Afin d’en garantir la robustesse dans le temps, il est recommandé d’appliquer des seuils d’obsolescence différenciés, fixés à vingt ans pour la flore ordinaire (seuil ZNIEFF ; Chegrani, 2021) et à dix ans pour les taxons menacés (critère A des listes rouges ; UICN France, 2018).
4.2. Intérêt des sites ateliers : le cas de la Dent de Rez
Il est également possible de concentrer les inventaires approfondis sur un nombre restreint de sites à forts enjeux. En plus de la Réserve, le massif de la Dent de Rez constitue un cas d’étude pertinent. Comme évoqué dans les chapitres précédents, ce secteur abrite une flore riche en espèces orophiles méditerranéennes, dont la pérennité est susceptible d’être compromise par le dérèglement climatique.
Depuis les années 2000, les plateaux de la Dent de Rez font l’objet d’une gestion orientée vers le maintien des milieux ouverts, visant à la conservation des pelouses et des espèces d’intérêt communautaire, en particulier avifaunistiques et entomologiques. Divers aménagements pastoraux (gyrobroyage, mise en place de parcs de pâturage, installation de citernes, clôtures) ont été réalisés depuis 2001 sur cette mosaïque d’habitats, avec pour objectifs de limiter l’embroussaillement, de préserver la biodiversité associée en favorisant l’installation d’exploitations agricoles pérennes.
La structuration foncière, via la création d’une association foncière pastorale en 2000 regroupant plusieurs propriétaires institutionnels et privés, a permis la mise en place d’un pâturage régulier par des troupeaux bovins et équins, entre mars et septembre. L’évaluation de cette gestion écopastorale (Choisnet & Fournier, 2021) montre qu’elle a contribué au maintien, voire à la restauration des communautés pelousaires.
Toutefois, l’augmentation attendue des contraintes climatiques, en particulier des stress hydriques et thermiques, est susceptible d’altérer significativement la composition de ces communautés. Dans cette perspective, certaines mesures d’adaptation pourraient être envisagées, telles que le maintien ou la restauration de structures arbustives et arborées jouant un rôle de refuge microclimatique, notamment sur ce plateau fortement exposé au mistral.
Par ailleurs, malgré une pression de prospection déjà importante, la connaissance floristique du site demeure incomplète. Les observations récentes, incluant la découverte de nouvelles espèces à l’échelle départementale ou la redécouverte de taxons non revus depuis longtemps, suggèrent que certaines espèces, très localisées ou discrètes, échappent encore à la détection. Dans ce contexte, un inventaire coordonné a été initié en 2025 par le CBN Massif central, le SGGA et la SBA, afin de mieux intégrer la flore dans les stratégies d’adaptation au changement climatique.
Deux sessions d’inventaire ont d’ores et déjà été organisées (photo 3), mais la pérennisation de cette dynamique apparaît essentielle. Elle suppose notamment de préciser le périmètre d’étude (par exemple à l’échelle de l’APPB ou de la ZNIEFF de type I Massif de la Dent de Rez) et de mieux accompagner les observateurs, en mettant à disposition un état actualisé des connaissances, une liste des espèces cibles et une identification des secteurs encore insuffisamment prospectés.
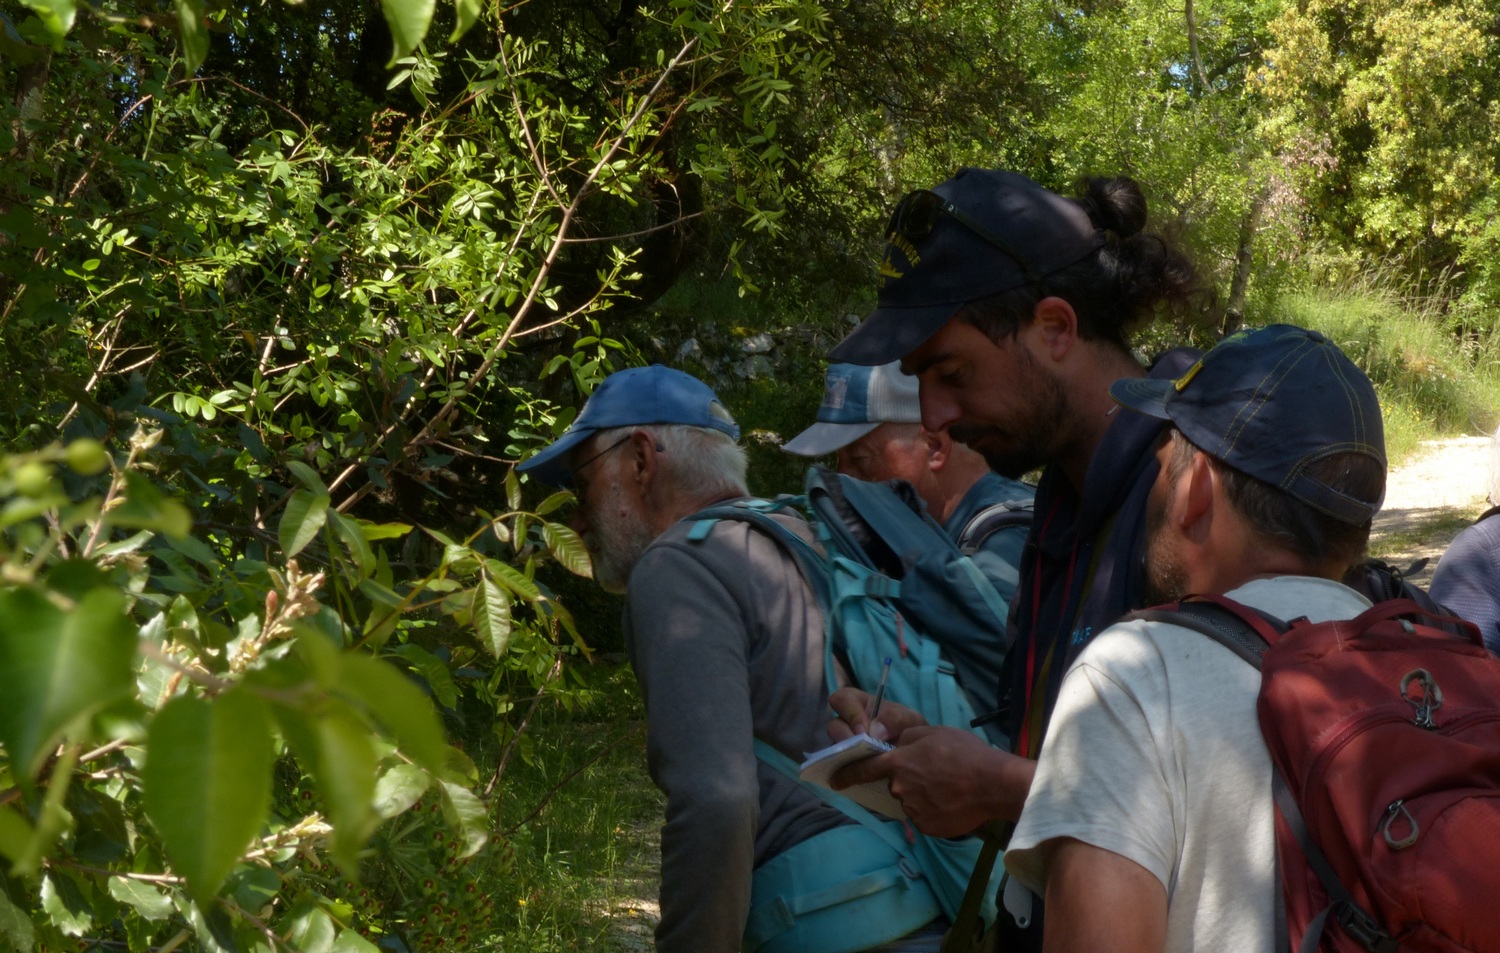
4.3. Effets du dérèglement climatique sur les populations végétales
De nombreuses autres espèces végétales semblent affectées par le dérèglement climatique. Les suivis réalisés sur l’hormathophylle des rochers, engagés à la suite des travaux de sécurisation de la RD 290 dans le secteur de la grotte des Tunnels à Vallon-Pont-d’Arc, ont mis en évidence une diminution d’environ 27 % des effectifs entre 2015 et 2023. Cette régression, sans doute liée à l’augmentation du stress hydrique, s’accompagne d’un faible recrutement, marqué par la rareté des individus juvéniles. Bien que ces résultats nécessitent d’être confirmés sur des séries temporelles plus longues et sur un échantillon élargi, ils constituent un signal préoccupant. Un premier état des populations, réalisé par observation à distance et report photographique, a été conduit sur plusieurs autres secteurs (Grand Charmasson, site d’escalade de Champ Serrier, Barri troué). Il apparaît nécessaire d’étendre ce dispositif à de nouveaux secteurs représentatifs, en particulier à la Dent de Rez et aux Remparts du Garn, et de mutualiser ce suivi à l’échelle d’autres territoires voisins (gorges du Chassezac, défilé de Ruoms, marges calcaires du Coiron). Un pas de temps quinquennal pourrait être retenu pour ces suivis, en les complétant par des approches de modélisation de la distribution de l’espèce selon différents scénarios climatiques. Ces éléments seraient utiles pour anticiper les évolutions d’aire et mieux intégrer ces enjeux dans l’aménagement de sites d’escalade.
Les espèces méditerranéennes sont souvent considérées comme moins vulnérables au dérèglement climatique. Cette hypothèse mérite toutefois d’être nuancée. Le cas de Biscutella cichoriifolia illustre la complexité des réponses écologiques observées. Cette espèce annuelle est caractérisée par de fortes fluctuations de ses effectifs. Les suivis réalisés sur le massif de Crussol suggèrent que les années d’abondance exceptionnelle seraient associées à une combinaison de conditions climatiques spécifiques, associant un été particulièrement sec, suivi d’un hiver froid (Bianchin, 2018b). Ce dernier facteur pourrait être lié aux mécanismes de levée de dormance des graines par vernalisation. La distribution de l’espèce, bien représentée dans les Préalpes – où le climat connaît une influence continentale caractérisé par une forte amplitude thermique – et quasiment absente en Languedoc, semble corroborer cette hypothèse. Dans cette perspective, l’analyse des dynamiques de population de cette espèce pourrait constituer un modèle d’étude pertinent pour d’autres taxons à affinité provençale en limite d’aire dans les gorges de l’Ardèche. Plutôt qu’un suivi exhaustif de l’ensemble des populations, difficile à mettre en œuvre, la mise en place d’un suivi annuel sur un réseau de stations représentatives, sélectionnées pour leur accessibilité (par exemple au niveau de belvédères), apparaît comme une approche pragmatique et opérationnelle.
4.4. Suivi et restauration des habitats dégradés
Les pelouses psammophiles
Un autre intérêt majeur des suivis réside dans leur capacité à documenter l’efficacité des opérations de restauration de sites dégradés, qu’elles soient associées ou non au rétablissement de populations végétales. Comme indiqué précédemment, les pelouses psammophiles constituent un enjeu de conservation prioritaire à l’échelle de la Réserve. Ces milieux ont été fortement anthropisés : les sites de Gaud et de Gournier accueillent aujourd’hui les bivouacs, tandis que la fréquentation par les randonneurs de la montagne de Sable a favorisé l’apparition de ravines d’érosion, ainsi que le développement d’espèces exotiques envahissantes, telles que l’ailanthe et le robinier. Par ailleurs, l’ambroisie à feuilles d’armoise colonise certaines pelouses, notamment à Gournier, au détriment de la flore autochtone.
Des actions de gestion visant à limiter ces impacts ont été mises en œuvre (déplacement de pistes et de sentiers, aménagements anti-ruissellement, mise en défens, lutte contre les espèces exotiques envahissantes ; Carré, 2015). Toutefois, l’évaluation de leur efficacité à long terme suppose la mise en place d’un suivi rigoureux, reposant notamment sur un enregistrement précis et spatialement explicite des interventions. Dans cette perspective, de nouvelles actions de restauration pourraient être envisagées, en particulier sur les sites les plus dégradés tels que Gournier et Gaud, d’autant que des opportunités de financement existent dans le cadre du règlement européen sur la restauration de la nature. La réalisation d’une étude d’opportunité pour une phase complémentaire de restauration apparaît ainsi pertinente.
Par ailleurs, si les principales espèces psammophiles sont désormais bien identifiées, la connaissance des habitats reste perfectible. Une cartographie fine des végétations, ainsi qu’une meilleure compréhension de leurs dynamiques (en partie abordées dans la thèse de Choisnet), apparaissent nécessaires, au moins pour les sites les plus emblématiques (Pas du Mousse, montagne de Sable, Gournier, Sablou, Gaud). L’analyse des processus de reconstitution des milieux sableux (crues, dynamiques éoliennes) et de leur influence sur la végétation constitue également un axe de recherche à approfondir. À cet égard, les expérimentations de cartographie par LIDAR terrestre offrent des perspectives prometteuses. Dans l’attente, le suivi d’un cortège restreint d’espèces indicatrices – telles que l’orcanette de Matthiole, la fléole des sables et le corynéphore blanchâtre (Dapsence, 2024) – pourrait être reconduit à intervalle régulier (par exemple tous les dix ans).
Nous avons vu qu’Alkanna matthioli avait disparu d’un des trois sites de pelouses où il était initialement présent. Les pressions anthropiques semblant aujourd’hui mieux maîtrisées, notamment grâce à une gestion plus efficace des cheminements, une opération de réintroduction apparaît envisageable. Celle-ci pourrait s’appuyer sur les populations sources encore bien représentées au Pas du Mousse. Un premier prélèvement d’environ cinq cents akènes a d’ailleurs déjà été réalisé sur ce site dans le cadre d’une opération de réintroduction au Grand Parc de Miribel-Jonage (Maglio, 2026), ce qui atteste de la faisabilité technique de telles interventions. Dans cette continuité, la collecte d’un volume équivalent de semences pourrait permettre la mise en place d’un dispositif expérimental de réintroduction, reposant sur une dizaine de placettes, avec un semis d’environ cinquante semences par placette. Ce dispositif pourrait être complété par un apport de semences issues de la population de Gournier afin de diversifier l’origine du matériel végétal. La réussite de cette opération suppose toutefois la mise en place d’un protocole de suivi rigoureux, avec des relevés annuels portant au minimum sur la germination, la survie des individus et leur reproduction, et ce jusqu’aux premières mises à fruit.
Les pieds de parois
Une première évaluation de l’impact des chèvres férales dans les gorges de l’Ardèche a été menée à travers l’étude des communautés annuelles nitrophiles des balmes (Bianchin & Monlyade, 2025). Les résultats indiquent que l’expression de ces communautés est davantage déterminée par les fluctuations climatiques interannuelles que par la présence des chèvres. En revanche, l’effet du pâturage pourrait être plus marqué sur certaines espèces vivaces, potentiellement plus sensibles au piétinement et au broutage.
À cet égard, la distribution actuelle de l’éphèdre à deux épis apparaît remarquable : l’ensemble des populations connues est localisé dans des balmes inaccessibles aux chèvres et aux êtres humains. Cette configuration pourrait traduire un effet indirect du pastoralisme ancien, en lien notamment avec la présence de grottes-bergeries dans les gorges de l’Ardèche, où plusieurs dizaines de ces aménagements sont recensés, en particulier en rive gauche. Chacun de ces enclos pouvait accueillir entre 70 et 180 bêtes (Raimbault et al., 2008). Afin de tester cette hypothèse, un état des lieux des populations des deux espèces d’éphèdres serait nécessaire, reposant notamment sur un suivi photographique standardisé. De telles prospections impliqueraient toutefois des interventions en milieu vertical, envisageables grâce au partenariat entre le SGGA et le Centre de ressources, d’expertise et de performance sportives de Vallon-Pont-d’Arc. La recherche d’individus femelles constitue également un enjeu important, en particulier pour Ephedra major, insuffisamment prospecté en période favorable. Les travaux de Nouviant (1998) suggèrent une forte rareté des individus femelles, de l’ordre de 1 % des effectifs.
Heteropogon contortus, dont les gorges de l’Ardèche abritent l’unique population auralpine, présente des effectifs réduits (environ une centaine de touffes) mais globalement stables à l’échelle de la dernière décennie. Contrairement à la situation observée dans les gorges du Gardon, où une régression des effectifs a été attribuée à l’impact chèvres férales (Bernard, 2024), le secteur ardéchois apparaît actuellement peu fréquenté par ces animaux. Dans ce contexte, la mise en place d’un suivi régulier des populations semble pertinente, notamment afin d’anticiper d’éventuelles évolutions. L’utilisation du protocole développé par les gestionnaires de la Réserve des gorges du Gardon est recommandée, dans une optique comparative.
Enfin, Ferula glauca semble, à ce jour, bénéficier des évolutions climatiques récentes (Mandin, 1993). Toutefois, des observations de terrain mettent en évidence une densité nettement plus élevée sur certaines vires inaccessibles, comme celle de Richemale, suggérant un effet limitant du piétinement par les chèvres sur les jeunes individus. Il convient par ailleurs de signaler que le chémotype de la férule glauque ardéchoise est dépourvu de substances anticoagulantes, à l’inverse de celles du Var (Gault, 2020), elles sont donc consommables par les chèvres. Dans cette perspective, une cartographie fine des populations à l’échelle des gorges, couplée à des dispositifs expérimentaux d’exclusion (par exemple au niveau de la vire périlleuse dont l’accès peut être facilement empêché), permettrait d’évaluer plus précisément le rôle respectif du pastoralisme et des facteurs climatiques dans la dynamique de l’espèce.
Enfin, la vigne sauvage constitue un autre enjeu patrimonial notable. Des analyses génétiques réalisées en 2023 par l’Office national des forêts ont confirmé l’identité de deux individus. L’espèce se développe dans des contextes particuliers (fissures des dalles de calcaires remplies de sable amené par la rivière, marges de tufs), où l’immersion partielle des racines lui confère une résistance au phylloxéra. Elle reste toutefois vulnérable à la concurrence des vignes américaines invasives, ainsi qu’à des phénomènes d’introgression avec la vigne cultivée échappée. De surcroît, ces vignes exotiques peuvent agir comme réservoirs de flavescence dorée, maladie due à un phytoplasme, petite bactérie sans paroi cellulaire qui est transportée par un insecte piqueur, la cicadelle. Cette maladie est déjà présente dans le sud de l’Ardèche. À court terme, les priorités consisteront à cartographier précisément les individus de vigne sauvage, à déterminer leur sexe et, si possible, à les génotyper. Des actions de renforcement par bouturage pourraient être envisagées, parallèlement à l’élimination des individus cultivés et de leurs hybrides potentiels à proximité.
Les milieux agropastoraux
Sur le plateau de Saint-Marcel-d’Ardèche, la Fédération départementale des chasseurs de l’Ardèche conduit avec l’association communale de chasse un programme de réouverture des milieux à vocation cynégétique, ciblant notamment le lapin de garenne et reposant sur la mise en œuvre d’une gestion agropastorale (Pascault & Bianchin, 2021). D’autres projets sont à l’étude comme la création d’un plan pastoral porté par la Chambre d’agriculture de l’Ardèche. Dans l’ensemble, ces opérations apparaissent favorables à plusieurs espèces végétales patrimoniales, parmi lesquelles Crepis suffreniana, qui présente ici ses principales populations auralpines. Le secteur se distingue aussi par la présence de mares temporaires, constituant des habitats d’intérêt pour les communautés amphibies. Dans cette optique, la création de nouvelles mares pourrait renforcer le fonctionnement en réseau de ces habitats et améliorer leur résilience. Par ailleurs, une animation territoriale spécifique mériterait d’être engagée sur le site du Lac sur la commune d’Orgnac-l’Aven afin de prévenir toute dégradation involontaire de ce milieu sensible.
À l’échelle du projet de Grand Site, les communautés de plantes messicoles apparaissent comme les plus fortement affectées par l’intensification et la transformation des pratiques agricoles, notamment l’usage d’herbicides et le tri des semences. Bien que le Bas-Vivarais puisse a priori sembler moins concerné que les grandes plaines céréalières en raison d’une agriculture historiquement moins intensive, des évolutions marquées des systèmes de culture ont été observées au cours des dernières décennies. Les cultures céréalières ont largement régressé au profit de la vigne et du lavandin. Si ces cultures pérennes pourraient offrir des habitats de substitution pour certaines messicoles, leur potentiel d’accueil demeure encore insuffisamment documenté.
Les espèces messicoles, ainsi que celles associées aux cultures pérennes (vignes, vergers), font l’objet d’un plan national d’actions, décliné en région Auvergne-Rhône-Alpes depuis 2022. Le plan régional d’actions cible 89 taxons, dont plusieurs présentent des enjeux de conservation élevés, et prévoit la mise en œuvre de mesures spécifiques (Kristo & Ragache, 2022). La majorité des communes incluses dans le périmètre du projet de Grand Site est ainsi identifiée comme présentant des enjeux forts à très forts, tandis que la commune de Saint-Remèze est considérée comme prioritaire pour des actions de restauration. Dans ce contexte, la mise en place de programmes de sauvegarde à l’échelle territoriale apparaît urgente, bien que certaines dynamiques de recolonisation ponctuelle puissent encore être observées. À titre d’exemple, Valerianella echinata, signalée historiquement sur les communes d’Orgnac-l’Aven et de Saint-Remèze, a récemment réapparu en abondance à la suite de l’arrachage d’une vigne au lieu-dit « Les Champs » (Collectif, 2018). Toutefois, ces parcelles étant à nouveau en déprise, la pérennité de ces populations reste incertaine. Dans cette perspective, certaines pratiques, telles que les cultures à gibier ou les lavandaies, pourraient constituer des habitats relais favorables au maintien de ces espèces, dans l’attente d’éventuels changements des systèmes de production agricole.
Les forêts
En milieu forestier, la pivoine officinale constitue un indicateur pertinent de continuité écologique. En effet, les pivoines sont des vivaces longévives, pouvant persister plusieurs décennies, voire davantage ; certaines observations horticoles suggèrent une longévité dépassant le siècle (Wister, 1962), bien que ces valeurs reposent principalement sur des données empiriques. Des sources historiques témoignent de son abondance passée : Olivier de Serres mentionne, dans son Théâtre d’Agriculture et Mesnage des champs (1600), sa présence notable à Lagorce, où elle était récoltée pour ses racines avant d’être commercialisée à grande échelle. Plus récemment, à Grospierres, la collecte de graines à des fins pharmaceutiques s’est poursuivie jusqu’au début du xxe siècle (Derouret-Serret, 1974). Ces pratiques d’exploitation intensive ont probablement entraîné des déclins locaux, voire des phénomènes de dérive génétique. Malgré son statut de protection nationale, l’espèce fait encore l’objet de prélèvements ponctuels, principalement à des fins horticoles, bien que dans des proportions moindres.
Une part significative des populations connues au sein du périmètre du projet de Grand Site se situe en forêts publiques (forêt domaniale de Bois sauvage ou communale de Bidon soumise au régime forestier). Dans ce contexte, un travail collaboratif avec les agents de l’ONF, complété par une enquête participative auprès des habitants, permettrait de mieux préciser la répartition actuelle de l’espèce. Des dispositifs de suivi sont d’ores et déjà envisagés dans un cadre associatif à l’échelle de la montagne de la Serre. À moyen terme, des analyses génétiques couplées à des études de connectivité permettraient d’évaluer l’existence d’éventuelles dérives au sein de certaines populations et d’orienter, le cas échéant, des actions de renforcement. Par ailleurs, une réflexion spécifique sur les modalités de gestion forestière au niveau des noyaux de population apparaît souhaitable.
S’agissant des cynoglosses, la mise en œuvre de mesures de conservation suppose au préalable une amélioration des connaissances sur leur distribution. La conduite d’une enquête ciblée (supports de type carte postale, page web incluant une clé de détermination et des éléments de biologie) permettrait de mobiliser un réseau d’observateurs et de combler les lacunes actuelles.
Le bois des Bruyères concentre également des enjeux de conservation importants. À la suite d’observations relatives au chêne pédonculé, l’ONF, dans le cadre de la révision de l’aménagement de la forêt communale de Salavas (2024-2043), a classé une part notable des peuplements âgés (80-100 ans) en libre évolution, avec intégration au réseau FRENE. Les autres peuplements de feuillus situés dans la ZNIEFF de type 1 Bois des Bruyères sont orientés vers une gestion en futaie irrégulière, globalement compatible avec les enjeux écologiques identifiés. Toutefois, certaines espèces, comme Cytisus elongatus, restent insuffisamment prises en compte et peuvent être affectées par les travaux forestiers (entretien des pistes, exploitation). Une attention particulière à leur localisation et à leur prise en compte dans les opérations de gestion apparaît nécessaire. L’ONF assure déjà des actions en faveur de cette espèce, avec un suivi populationnel, sur les contreforts de la vallée du Rhône, en amont de la carrière de Cruas.
Par ailleurs, la découverte récente de nombreuses populations de Silene viridiflora dans les Cévennes occitanes suggère une dynamique favorable sans doute liée au vieillissement des forêts. Cette tendance reste néanmoins à confirmer dans un contexte de changement climatique. Au bois des Bruyères, les populations identifiées demeurent extrêmement fragiles (environ dix individus recensés, dont une station réduite à un seul individu). Bien que la banque de graines puisse être plus importante que ne le suggèrent les observations, un renforcement des populations pourrait être envisagé à titre conservatoire.
4.5. Conservation des milieux humides
Le maintien des prairies hygrophiles de Saint-Vincent et de la Foussoubie constitue un enjeu majeur à l’échelle du projet de Grand Site. Une étude de faisabilité en vue d’une gestion patrimoniale des prés de Saint-Vincent a été conduite par le Conservatoire d’espaces naturels Rhône-Alpes (Jullian, 2003), sans toutefois déboucher, à l’époque, sur une mise en œuvre opérationnelle.
Dans ce contexte, la relance d’une animation territoriale apparaît aujourd’hui prioritaire, compte tenu de l’importance de ce secteur tant pour les activités agricoles que pour la conservation de la biodiversité. Cette démarche pourrait utilement s’appuyer sur les retours d’expérience issus des actions engagées sur la Dent de Rez, notamment en matière de gestion agropastorale et de concertation avec les acteurs locaux.
Parallèlement, la réalisation d’un diagnostic écologique approfondi serait nécessaire. Celui-ci devrait inclure une cartographie fine des communautés végétales, ainsi qu’une évaluation quantitative des populations d’espèces menacées, afin de disposer d’un état de référence robuste et de guider la définition des mesures de gestion.
Bibliographie
Andrieu F., Sulmont É., Dickenson D., Saint-Léger J.-C. & Bernard Ch., 2025. Contribution à la flore de la Lozère : espèces nouvelles depuis 2000. Carnets botaniques 247 : 1-35.
Anonyme, 2003. Dossier de création et plan de gestion (période d’application 2005-2012) de la Réserve biologique domaniale de Bois Sauvage (Dirigée 104,52 ha et Intégrale 409,50 ha). ONF Drôme-Ardèche, 94 p. + annexes.
Beauvisage G. & Bretin Ph., 1906. Herborisation entre Saint-Péray et Vernoux-d’Ardèche. Annales de la Société botanique de Lyon 31 : 91-97.
Bernard Ch., 1980. Aperçu de la végétation et de la flore de la montagne de Crussol (suite). Le Monde des Plantes 407 : 6-8.
Bernard P., 2024. Évaluation du troisième plan de gestion de la RNR des gorges du Gardon (2017-2023). Conservatoire d’espaces naturels Occitanie / Région Occitanie, 60 p.
Bianchin N., 2015. Stratégie de préservation de la flore vasculaire du Parc naturel régional des Monts d’Ardèche. Conservatoire botanique national du Massif central / Parc naturel régional des Monts d’Ardèche, 64 p.
Bianchin N., 2016. Bilan stationnel sur Silene viridiflora L. Conservatoire botanique national du Massif central / Département de l’Ardèche / Communauté de communes du Pays des Vans en Cévennes, 10 p.
Bianchin N., 2018a. Suivi dans l’ENS « Bois d’Abeau, des Bartres et vallée de la Gagnière » des espèces végétales en danger critique d’extinction. Conservatoire botanique national du Massif central / Département de l’Ardèche / Communauté de communes du Pays des Vans en Cévennes, 12 p.
Bianchin N., 2018b. Suivi des populations d’espèces végétales remarquables du site Natura 2000 FR8201662 et Espace naturel sensible « Massif de Crussol, Soyons, Cornas-Chateaubourg ». Conservatoire botanique national du Massif central / Communauté de communes Rhône-Crussol, 47 p.
Bianchin N., 2018c. État des lieux sur la flore remarquable de la partie aval du marais des Agusas (Ardèche). Conservatoire botanique national du Massif central / DDT de l’Ardèche, 48 p.
Bianchin N., 2019. Cartographie des habitats naturels dans l’extension du site classé du Pont d’Arc et de ses abords (Ardèche). Conservatoire botanique national du Massif central / Département de l’Ardèche, 69 p.
Bianchin N., 2023. Bilan de l’action cs.07 – Suivi des communautés floristiques remarquables du plan de gestion de la RNN (année 1). Conservatoire botanique national du Massif central / Syndicat de gestion des gorges de l’Ardèche, 5 p.
Bianchin N. & Aurousseau P., 2008. Sur deux nouvelles Gagées pour l’Ardèche. Comptes rendus de la Société botanique de l’Ardèche 53 : 12.
Bianchin N., Le Gloanec V. & Bastianelli M., 2023. Étude sur la préservation des mares des chaux basaltiques. Conservatoire botanique national du Massif central / Région Auvergne-Rhône-Alpes, 41 p. + annexes.
Bianchin N. & Monlyade L., 2025. Étude de l’impact des chèvres sur les communautés végétales des balmes. Conservatoire botanique national du Massif central / Syndicat de gestion des gorges de l’Ardèche, 32 p. + annexes.
Blandin P., Aberlenc H.-P., Bauvet C., Bianchin N., Cockle-Betian A., Coute A., … & Schwaab F., 2016. L’écocomplexe de Païolive en Ardèche méridionale (France) : un pic de biodiversité du hotspot méditerranéen. Ecologia Mediterranea 42 (2) : 51-95.
Bonnet P., Goeau H., Hopkins F., Vela E., Sahl A., Affouard A., … & Joly A., 2020. Contribution citoyenne au suivi de la flore d’un parc national français, un exemple remarquable à l’échelle du Parc national des Cévennes. Carnets botaniques 21 : 1‑9, https://doi.org/10.34971/zaz0-n247.
Bonnet V., Antonetti Ph., Fort N., Guillerme N. & Kristo O., 2017. Stratégie de conservation de la flore en Rhône-Alpes – Bilan des actions de conservation et orientation de planification. Conservatoires botaniques nationaux alpin et du Massif central / Région Auvergne-Rhône-Alpes, 28 p.
Bonnet V., Fort N., Terpereau G. & Vayssie A., 2024. Plan national d’actions 2024-2033 en faveur des pelouses sableuses continentales – Un plan multi-espèces, un plan habitats. Conservatoire botanique national alpin, Gap, 152 p.
Boudrie M., Descoings B. & Mandin J.-P., 2005. Les ptéridophytes du département de l’Ardèche (France). Le Journal de botanique 31 : 17-73, https://doi.org/10.3406/jobot.2005.2003.
Boulanger V., Baltzinger C., Saïd S., Ballon P., Ningre F., Picard J.-F. & Dupouey J.-L., 2011. Deer-mediated expansion of a rare plant species. Plant Ecology 212 (2) : 307-314, https://doi.org/10.1007/s11258-010-9823-9.
Breistroffer M., 1948. Supplément au catalogue des plantes vasculaires de l’Ardèche. Bulletin de la Société scientifique du Dauphiné 63 (6) : 53-56.
Breistroffer M., 1951. Les limites septentrionales d’extension de la flore méditerranéenne dans la Drôme et l’Ardèche. Mémoires de la Société botanique de France 97 : 81-95.
Breistroffer M., 1953. Les limites de la flore eu-méditerranéenne dans la Drôme et dans l’Ardèche. Procès-Verbaux mensuels de la Société dauphinoise d’ethnologie et d’archéologie 221-223 : 40-65.
Breistroffer M., 1954a. Supplément au catalogue des plantes vasculaires de l’Ardèche (2e partie). Bulletin mensuel de la Société linnéenne de Lyon 23 (3) : 60-64, https://doi.org/10.3406/linly.1954.7630.
Breistroffer M., 1954b. Note sur l’Endymion (Somera) italicus. Bulletin mensuel de la Société linnéenne de Lyon 23 (5) : 129-130, https://doi.org/10.3406/linly.1954.7644.
Breistroffer M., 1957. Supplément au catalogue des plantes vasculaires de l’Ardèche (3e partie). Bulletin mensuel de la Société linnéenne de Lyon 26 (10) : 281-293, https://doi.org/10.3406/linly.1957.7938.
Breistroffer M., 1960. Supplément au Catalogue des plantes vasculaires de l’Ardèche (4e partie). Bulletin mensuel de la Société linnéenne de Lyon 29 (3) : 73-86, https://doi.org/10.3406/linly.1960.6859.
Breistroffer M., 1979. Flore de la Dent de Rez sur Saint-Remèze. Bulletin de procès-verbaux de la Société dauphinoise d’études biologiques (Bio-Club) 7 : 71-72.
Breistroffer M., 1985. La flore méditerranéenne de Saint-Martin-d’Ardèche. Bulletin de la Société dauphinoise d’études biologiques, n. s.,12 : 49-52.
Breistroffer M., Bernard Ch. & Farille M., 1974. Compte rendu sommaire de la 102e session extraordinaire de la Société, Montélimar, 1-7 juin 1973. Bulletin de la Société botanique de France 121 (1-2) : 49-72, https://doi.org/10.1080/00378941.1974.10839231.
Cariot A. & Saint-Lager J.-B., 1889. Flore du bassin moyen du Rhône et de la Loire. E. Vitte, Lyon, 999 p.
Carnicero P., Sáez L., Garcia-Jacas N. & Galbany-Casals M., 2017. Different speciation types meet in a Mediterranean genus: the biogeographic history of Cymbalaria (Plantaginaceae). Taxon 66 (2) : 393-407.
Carré E., 2015. Synthèse du suivi des pelouses psammophiles des gorges de l’Ardèche. Rapport de stage M2 Pro EBE AgroParisTech, 41 p. + annexes.
Castioni M., 2017. Compte rendu de la sortie du 14 mai 2017 à Salavas (Ardèche). Comptes rendus de la Société botanique de l’Ardèche 62 : 24-27.
Catalán P., Müller J., Hasterok R., Jenkins G., Mur L.A., Langdon T., Betekhtin A., Siwinska D., Pimentel M. & López-Alvarez D., 2012. Evolution and taxonomic split of the model grass Brachypodium distachyon. Annals of Botany 109 (2) : 385-405, https://doi.org/10.1093/aob/mcr294.
Chegrani P., 2021. Feuille de route de la DREAL Auvergne-Rhône-Alpes sur l’inventaire continu des zones naturelles d’intérêt écologique, faunistique et floristique (ZNIEFF) pour la période 2021-2025. Direction régionale de l’environnement, de l’aménagement et du logement Auvergne-Rhône-Alpes (DREAL AURA), 56 p.
Choisnet G., 2019. Approche phytosociologique et symphytosociologique des végétations et des paysages du Bas-Vivarais (nord du bassin méditerranéen français). Thèse, Université de Bretagne occidentale, 346 p. + annexes.
Choisnet G. & Fournier A., 2021. Évaluation de la gestion écopastorale de la Dent de Rez (07). Coenose / Syndicat des gestion des Gorges de l’Ardèche, 46 p. + annexes.
Collectif, 2002. On a trouvé… On a retrouvé. Comptes rendus de la Société botanique de l’Ardèche 47 : 2.
Collectif, 2004. On a trouvé… On a retrouvé. Comptes rendus de la Société botanique de l’Ardèche 49 : 2-7.
Collectif, 2006. On a trouvé… On a retrouvé. Comptes rendus de la Société botanique de l’Ardèche 51 : 2-5.
Collectif, 2007. On a trouvé… On a retrouvé. Comptes rendus de la Société botanique de l’Ardèche 52 : 2-12.
Collectif, 2009. On a trouvé… On a retrouvé. Comptes rendus de la Société botanique de l’Ardèche 54 : 3-4.
Collectif, 2011. On a trouvé… On a retrouvé. Comptes rendus de la Société botanique de l’Ardèche 56 : 2-3.
Collectif, 2012. On a trouvé… On a retrouvé. Comptes rendus de la Société botanique de l’Ardèche 57 : 3-9.
Collectif, 2014. On a trouvé… On a retrouvé. Comptes rendus de la Société botanique de l’Ardèche 59 : 5-6.
Collectif, 2015. Contribution à l’inventaire de la flore. Bulletin de la Société botanique du Centre-Ouest, n. s., 45 : 73-105.
Collectif, 2016. On a trouvé… On a retrouvé. Comptes rendus de la Société botanique de l’Ardèche 61 : 7-14.
Collectif, 2018. On a trouvé… On a retrouvé. Comptes rendus de la Société botanique de l’Ardèche 63 : 16-21.
Collectif, 2019. On a trouvé… On a retrouvé. Comptes rendus de la Société botanique de l’Ardèche 64 : 3-4.
Collectif, 2021. On a trouvé… On a retrouvé. Comptes rendus de la Société botanique de l’Ardèche 66 : 7-8.
Collectif, 2022. On a trouvé… On a retrouvé. Comptes rendus de la Société botanique de l’Ardèche 67 : 4.
Collectif, 2023. On a trouvé… On a retrouvé. Comptes rendus de la Société botanique de l’Ardèche 68 : 5-7.
Collectif, 2024. On a trouvé… On a retrouvé. Comptes rendus de la Société botanique de l’Ardèche 69 : 6.
Coquillat M., 1965. Catalogue de la flore ligéro-rhodanienne. Manuscrit, 1475p.
Coste L.-A., 2015. Établissement de protocoles de suivi de végétation, le cas du massif de la Dent de Rez. Mémoire de fin d’études, CFR Angers, 127 p.
Coulot P., Rabaute Ph., Michaud H. & Bernard Ch., 2001. Découverte de plusieurs stations de Trifolium leucanthum M. Bieb. dans le sud de la France et chorologie de cette espèce en France. Le Monde des Plantes 473 : 10-14.
Croze Th., 2016. Sur la présence de la Pariétaire du Portugal Parietaria lusitanica L. subsp. lusitanica (Urticaceae) dans le département du Vaucluse. Bulletin de la Société botanique du Vaucluse 24 : 16-18.
Croze Th., Carlón Ruiz L., Tison J.-M., Michaud H., Molina J. & Moreno Moral G., 2024 – Phelipanche cingularum (Orobanchaceae), a new species from southern France. Phytotaxa 653 (1) : 1-19, https://doi.org/10.11646/phytotaxa.653.1.1.
Croze Th., Sauve R., Rolland A., Jonquet O., Bartheld R. & Roussel L., 2025. Notes et contributions à la flore de France méditerranéenne (Sud-Est, Corse et contrées limitrophes). Carnets botaniques 282, https://doi.org/10.34971/KXT4-BV85.
Dapsence A., 2024. Pelouses psammophiles : caractérisation de l’état de conservation et proposition d’indicateurs adaptés au suivi des sites dans les gorges de l’Ardèche (07), France. Rapport de stage M2 Biodiversité, Écologie et Évolution Aix-Marseille Université́, 27 p.+ annexes.
Derouret-Serret F., 1974. La Pimpanello de Grospierres – Paeonia peregrina Mill., la pivoine voyageuse. Les Cahiers du Grospierrois Grou Peïrou 6 : 15-17.
Descoings B.-M., 1984a. Inventaire des espèces végétales rares et menacées de la Réserve naturelle des Gorges de l’Ardèche. Rapport fin contrat, comité scientifique Gorges Ardèche. Privas, 45 p. ronéo. + 2 cartes.
Descoings B.-M., 1984b. Protection des espèces végétales rares et menacées de disparition dans la Réserve naturelle des Gorges de l’Ardèche. Rapport fin contrat, comité scientifique Gorges Ardèche, Privas, 9 p. ronéo.
Descoings B.-M. & Mandin J. P., 1984. Inventaire des espèces rares ou menacées du département de l’Ardèche. Société botanique de l’Ardèche, 10 + 52 p.
Descoings B.-M., Mandin J.-P. & Delpech R., 2011. Comptes rendus de la 120e session extraordinaire de la Société botanique de France en Ardèche (1988-1989). Le Journal de Botanique 55 (1) : 3-114, https://doi.org/10.3406/jobot.2011.1125.
Durnerin C. & Mandin J.-P., 1992. Sortie du 31 mai 1992 à Salavas (Ardèche). Comptes rendus de la Société botanique de l’Ardèche 37 : 40-42
Elisens W. J., 1985. The systematic relationship of Asarina procumbens to New World species in tribe Antirrhineae (Scrophulariaceae). Madroño 32 (3) : 168-178.
Jullian L., 2003. Étude de faisabilité d’une gestion patrimoniale : les prés Saint Vincent (commune de Gras, Ardèche). CREN Rhône-Alpes / Conseil Régional Rhône-Alpes / ministère de l’Écologie et du Développement durable, 24 p.
Foucault B. (de), 2009. Contribution au prodrome des végétations de France : les Cardaminetea hirsutae Géhu 1999. Le Journal de Botanique 48 : 49-70, https://doi.org/10.3406/jobot.2009.1070.
Foucault B. (de), 2012. Contribution au prodrome des végétations de France : les Sisymbrietea officinalis Korneck 1974. Le Journal de Botanique 58 : 55-116, https://doi.org/10.3406/jobot.2012.1152.
Gault G., 2020. Chémotaxonomie du genre Ferula en France. Convergences botaniques 2020 – 21.
Gleizes L., 2014. Mise en œuvre d’un suivi de la dynamique naturelle des milieux forestiers de la Réserve naturelle nationale des Gorges de l’Ardèche, période 2012-2013. Syndicat de gestion des Gorges de l’Ardèche, Saint-Remèze, 135 p.
Ichter J., Aberlenc H.-P., Auge V., Bonet R., Combrisson D., Couilloud F., Dufrene M., Dusoulier F., Gargominy O., Holthof J.-F., Lacoeuilhe A., Langlois D., Le Gall L., Leccia M.-F., Poncet R., Ramage T., Sorel D., Tissot B., Touroult J. & Poncet L., 2024. Actes du séminaire des inventaires généraux de la biodiversité (IGB/ATBI). PatriNat (OFB/MNHN) / Parc national des Écrins, Le Bourg d’Oisans, 35 p.
Julve Ph. & de Foucault B., 2002. Approche synusiale intégrée en Ardèche : compte rendu phytosociologique de la session. Bulletin de la Société botanique du nord de la France 55 (3-4) : 33-41.
Kessler F. & Bianchin N., 2010. Plantes nouvelles ou intéressantes pour le département de l’Ardèche. Le Journal de Botanique 49 (1) : 13-31, https://doi.org/10.3406/jobot.2010.1076.
Kristo O. & Ragache Q., 2022. Plan d’action en faveur des plantes messicoles en Auvergne-Rhône-Alpes, 2022-2027 ; déclinaison régionale du plan national d’action. Conservatoire botanique national alpin, Conservatoire botanique national du Massif central / DREAL Auvergne-Rhône-Alpes, région Auvergne Rhône-Alpes, 66 p. + annexes.
Küpfer P., 1974. Recherches sur les liens de parenté entre la flore orophile des Alpes et celle des Pyrénées. Boissiera 23 : 12-322.
Lagarde F., 2001. Distribution dans le Gard de deux Hormathophylla rares (tribu des Alyssae). Bulletin de la Société d’étude des sciences Naturelles de Nîmes et du Gard 63 : 11-30.
Lagarde F., 2007. Compte rendu de la minisession dans le Gard des 29, 30 avril et 1er mai 2006. Le Journal de botanique 38 : 49-72, https://doi.org/10.3406/jobot.2007.999.
Le Berre M. & Diadema K. (coord.), 2020. Stratégie de conservation de la flore en région méditerranéenne – guide méthodologique pour les espèces. Rapport inédit, CBNMed, RESEDA Flore, 11 p.+ annexes.
Le Berre M. & Diadema K. (coord.), 2021. Hiérarchisation des taxons – stratégie de conservation de la flore vasculaire en région méditerranéenne. Rapport d’étude, CBNMed, CBNC, CBNA, CBNMC, RESEDA Flore, 23 p.+ annexes.
Le Berre M., Piazza C., Bianchin N., Fort N., Andrieu F., Delage A., Hugot L., Pires M., Debarros G. & Diadema K., 2022. Typification des actions – stratégie de conservation de la flore vasculaire en région méditerranéenne. Rapport d’étude, CBNMed, CBNC, CBNMC, CBNA, RESEDA Flore, 12 p.+ annexes.
Le Berre M., Piazza C., Bianchin N., Fort N. & Diadema K., 2023. Priorisation des projets – stratégie de conservation de la flore vasculaire en région méditerranéenne. Rapport d’étude, CBNMed, CBNC, CBNMC, CBNA, RESEDA Flore, 11 p. + annexes.
Le Gloanec V., 2026. Étude des végétations des Stipo-Trachynietea et de l’habitat 6220 en Auvergne-Rhône-Alpes – Territoire d’agrément du CBN Massif central. Conservatoire botanique national du Massif central / Région Auvergne-Rhône-Alpes / DREAL Auvergne-Rhône-Alpes, 21 p. + annexes.
Leprince J.-H., Veau F., Issartel G. & Ladet A., 2012. Diagnostic écologique de la vallée de l’Ibie (communes de Lagorce, Rochecolombe, Saint-Maurice-d’Ibie, Vallon-Pont-d’Arc et Villeneuve-de-Berg). Ligue pour la protection des oiseaux de l’Ardèche / Fédération Rhône-Alpes de protection de la nature / Syndicat de gestion des Gorges de l’Ardèche, 152 p.
Madon O., 1994. Présence dans le Gard de Heteropogon contortus (L.) P. Beauv. ex Roemer et. Schultes. Le Monde des Plantes 451 :15-18.
Maglio M., 2026. Réintroduction d’espèces disparues du Grand Lyon. Les pelouses sableuses des vallées du Rhône et de la Saône : un enjeu prioritaire. Conservatoire botanique national du Massif central / Métropole Grand Lyon, 14 p. + annexes.
Mandin J.-P., 1993. Progression actuelle d’espèces méditerranéennes vers le nord. Le cas de Ferula communis L. subsp. glauca (L.) Rouy et Camus en Ardèche (France). Acta Botanica Gallica 140 (1) : 81-90, https://doi.org/10.1080/12538078.1993.10515570.
Mandin J.-P., 2003. Sortie du dimanche 4 mai 2003 : Salavas (Ardèche). Comptes rendus de la Société botanique de l’Ardèche 48 : 18-21.
Mandin J.-P., 2012. Les zones humides de Labastide-de-Virac, sortie botanique du 3 juin 2012. Comptes rendus de la Société botanique de l’Ardèche 57 : 40-43.
Mandin J.-P., 2013. Réalisation du suivi de la recolonisation de la flore, notamment la Corbeille d’argent à gros fruit (Hormathophylla macrocarpa) – Mesures de compensation et d’accompagnement RD 290 secteur des tunnels (commune de Vallon-Pont-d’Arc). Société botanique de l’Ardèche / Syndicat de gestion des Gorges de l’Ardèche / Département de l’Ardèche, 21 p.
Mandin J.-P., 2014. Réalisation du suivi de la recolonisation de la flore, notamment la Corbeille d’argent à gros fruit (Hormathophylla macrocarpa) – Mesures de compensation et d’accompagnement RD 290 secteur des tunnels (commune de Vallon-Pont-d’Arc) – Campagne de suivi 2014. Société botanique de l’Ardèche / Syndicat de gestion des Gorges de l’Ardèche / Département de l’Ardèche, 21 p.
Mandin J.-P., 2015. Réalisation du suivi de la recolonisation de la flore, notamment la Corbeille d’argent à gros fruit (Hormathophylla macrocarpa) – Mesures de compensation et d’accompagnement RD 290 secteur des tunnels (commune de Vallon-Pont-d’Arc) – Campagne de suivi 2015 et bilan 2013-2015. Société botanique de l’Ardèche / Syndicat de gestion des Gorges de l’Ardèche / Département de l’Ardèche, 21 p.
Mandin J.-P., & Bauvet C., 2004. Sortie du dimanche 9 mai 2004 : Rimouren (Ardèche). Comptes rendus de la Société botanique de l’Ardèche 49 : 30-33.
Mandin J.-P., Castioni M., Chaignon Y. & Barth P., 2021. Compte rendu de la sortie du dimanche 6 juin à Salavas et Vagnas (Ardèche). Comptes rendus de la Société botanique de l’Ardèche 66 : 33-37.
Marron B., Mandin J.-P, Delpech R., 1996. Sortie du 5 mai 1996 à Bois Sauvage (Ardèche). Comptes rendus de la Société botanique de l’Ardèche 41 : 4-7.
Meier H. & Braun-Blanquet J., 1934. Prodrome des groupements végétaux, 2 – Classe des Asplenietales rupestres, Groupements rupicoles. Comité international du Prodrome phytosociologique, Montpellier.
Misset C. 2019. Les Cardaminetea hirsutae Géhu 1999 dans le sud de la France, observations nouvelles. Psychodrômia 3 : 6-63.
Nouviant, J. 1997. Recherches sur Ephedra en Europe, III – Entre Ephedra distachya et helvetica. Bulletin de la Murithienne 115 : 68-75.
Nouviant J. 1998. Recherches sur Ephedra en Europe, IV – Critique de Ephedra nebrodensis. Bulletin de la Murithienne 116 : 69-79.
Pascault B. & Bianchin N., 2021. Évaluation des travaux de restauration et d’entretien des pelouses sèches et garrigues sur 3 secteurs d’Ardèche méridionale. Rapport d’expertise, Conservatoire d’espaces naturels Rhône-Alpes / Conservatoire botanique national du Massif central / Fédération départementale de la chasse Ardèche, 63 p.
Pattier D., 2016. Session Vivarais méridional (sud Ardèche) du 17 au 24 mai 2014, introduction à la session. Bulletin de la Société botanique du Centre-Ouest, n. s., 46 : 181-182.
Perroud L., 1882. Excursion botanique dans l’Ardèche. Annales de la Société botanique de Lyon 9 : 171-200, https://doi.org/10.3406/linly.1882.17085.
Petetin A., 2000. Expertise de l’habitat naturel « Hêtraie à buis » dans la réserve biologique domaniale de la forêt de Barrès (Ardèche). Conservatoire botanique national du Massif central / Direction régionale de l’environnement Rhône-Alpes, 11 p.
Peyronel O., 2007. La Gratiole officinale dans la Réserve naturelle des Gorges de l’Ardèche. Comptes rendus de la Société botanique de l’Ardèche 52 : 13-15.
Peyronel O., 2011. Les prospections botaniques dans et autour de la Réserve naturelle nationale des Gorges de l’Ardèche. Comptes rendus de la Société botanique de l’Ardèche 56 : 4-8.
Peyronel O., 2013. Le Pas du Mousse, sortie botanique du 28 avril 2013. Comptes rendus de la Société botanique de l’Ardèche 58 : 15-18.
Qi M.Q., Upadhyaya M.K., Furness N.H. & Ellis B.E., 1993. Mechanism of Seed Dormancy in Cynoglossum officinale L. Journal of Plant Physiology 142 (3) : 325-330, https://doi.org/10.1016/S0176-1617(11)80430-X.
Raimbault M., Rouchouse C. & Ozil H. (dir.), 2008. De la Dent de Rez aux gorges de l’Ardèche : histoire et environnement d’un territoire, Saint-Remèze / Vals-les-Bains, Syndicat de gestion des Gorges de l’Ardèche / éditions de l’Ibie / éditions du Chassel, 648 p.
Renaux B., Le Gloanec V., Le Hénaff P.-M. & Bianchin N., 2023. Végétations forestières du Massif central – Catalogue phytosociologique. Conservatoire botanique national du Massif central, Chavaniac-Lafayette, 480 p. (Flore et végétation du Massif central).
Revol J., 1910. Catalogue des plantes vasculaires du département de l’Ardèche. Ed. A. Rey & Cie, 288 p.
Revol J., 1922. Supplément au Catalogue des plantes vasculaires de l’Ardèche. Annales de la Société botanique de Lyon 42 : 51-103, https://doi.org/10.3406/linly.1922.15632.
Revol J., 1924. Supplément au Catalogue des plantes vasculaires du département de l’Ardèche (additions). Annales de la Société botanique de Lyon 43 : 75, https://doi.org/10.3406/linly.1924.15648.
Rigaux J., 2014. Document d’objectifs du site FR 820 1668 B24 « Marais des Agusas, montagnes de la Serre et d’Uzège ». Naturalia Environnement, MEDDE, 342 pages + annexes.
Serres O. (de), 1600. Théâtre d’Agriculture et mesnage des champs. I. Métayer, 1002 p.
Sulmont E., 2007. Sur les traces de Breistroffer au bois des Bruyères (Salavas) et au Grand Bois (Vagnas), Ardèche, le 13 avril 2007. Comptes rendus de la Société botanique de l’Ardèche 52 : 16-22.
Sulmont E. & Castioni M., 2013. Le bois des Bruyères à Salavas, sortie botanique du 5 mai 2013. Comptes rendus de la Société botanique de l’Ardèche 58 : 19-24.
Sutter R., 1973. Über Vorkommen und Verbreitung von Asplenium petrarchae (Guérin) DC. und die Assoziationen Phagnalo-Asplenietum petrarchae Br.-Bl. und Parietarietum lusitanicae ass. nov. prov. Botanische Jahrbücher für Systematik, Pflanzengeschichte und Pflanzengeographie 93 (4) : 568-602.
Tallon G., 1954. Contribution à la flore du sud de l’Ardèche. Bulletin mensuel de la Société linnéenne de Lyon 23 (6) : 169-170.
Terpereau G., Ratajczak E. & Fort N., 2025. Protocoles de suivi de la flore et des habitats patrimoniaux du réseau Flore sentinelle. Conservatoire botanique national alpin, 36 p.
Tison J.M. & de Foucault B., 2014. Flora Gallica – Flore de France. Biotope, Mèze, xx + 1 196 p.
Tollet É., 2023. Travaux de sécurisation de la RD 290 secteur des tunnels à Vallon-Pont-d’Arc – Suivi de la recolonisation de la flore, notamment de la Corbeille d’argent à gros fruits (Hormathophylla macrocarpa) – Bilan 2023. Ubiquiste / Département de l’Ardèche, 16 p.
UICN France, 2018. Guide pratique pour la réalisation de listes rouges régionales des espèces menacées – Méthodologie de l’UICN et démarche d’élaboration, seconde édition. Paris, France.
Vega (de) C., Arista M., Ortiz P.L., Herrera C.M. & Talavera S., 2009. The ant-pollination system of Cytinus hypocistis (Cytinaceae), a Mediterranean root holoparasite. Annals of Botany 103 (7) : 1065-1075, https://doi.org/10.1093/aob/mcp049.
Wister J.C. (éd.), 1962. The Peonies. American Horticultural Society.
Zhou S.-L., Xu C., Liu J., Yu Y., Wu P., Cheng T. & Hong D.-Y., 2021. Out of the Pan-Himalaya: Evolutionary history of the Paeoniaceae revealed by phylogenomics. Journal of Systematics and Evolution 59 : 1170-1182, https://doi.org/10.1111/jse.12688.
Remerciements
Nous remercions le Syndicat de gestion des Gorges de l’Ardèche ainsi que le Département de l’Ardèche pour la confiance qu’ils nous ont accordée en nous confiant cette étude. Nous adressons également nos remerciements à l’ensemble des botanistes qui nous ont transmis leurs observations. Nous exprimons notre gratitude à Matthieu Lefebvre, chargé de l’herbier du Muséum de Grenoble, pour la transmission des scans des carnets de Breistroffer. Nous remercions également Laurence Julian, du CEN Rhône-Alpes, et Luce Mansot, chargée des ressources documentaires au CBN Massif central, pour leur précieuse aide dans les recherches bibliographiques. Enfin, nous remercions Anouk Suchet, Théo Deboffe et Mélanie Piroux, du service Outils et ressources numériques du CBN Massif central, pour leur contribution à la compilation, à l’extraction des données et à la production cartographique. Nous remercions également Nicolas Guillerme, Thomas Croze et Bruno de Foucault pour leur relecture attentive de ce manuscrit.