Asplenium sagittatum en Corse : état des connaissances en 2026
Title
Asplenium sagittatum in Corsica: current state of knowledge (2026)
Résumé
Asplenium sagittatum est une fougère sténoméditerranéenne rare, disséminée sur son aire de répartition. En Corse, elle est strictement inféodée aux rochers calcaires ombragés et humides, principalement sur des encorbellements sous couvert dense de chêne vert, dans des vallons encaissés. L’espèce y est uniquement connue de la commune de Bonifacio (Corse-du-Sud), où elle occupe une quinzaine de sous-populations de petite taille, globalement stables et présentant un renouvellement attesté par la présence de juvéniles. Toutefois, certains aménagements entraînent localement une dégradation des habitats, pouvant conduire à sa disparition. Cet article décrit les caractéristiques biologiques, écologiques et chorologiques de l’espèce, dresse un état détaillé des localités corses (effectifs, structure, menaces, statuts de protection) et propose des mesures de conservation et de gestion.
Abstract
Asplenium sagittatum is a rare steno-Mediterranean fern, scattered throughout its distribution range. In Corsica, it is strictly confined to shaded, humid calcareous rocks, mainly occurring on rocky overhangs beneath dense holm oak (Quercus ilex) canopy within narrow, enclosed valleys. The species is known only from the municipality of Bonifacio (Corse-du-Sud), where it occupies around fifteen small sites that are generally stable and show evidence of renewal, as indicated by the presence of juveniles. However, certain land-use developments have locally led to habitat degradation, in some cases resulting in the disappearance of the species. This paper describes the species’ biological, ecological, and chorological characteristics, provides a detailed assessment of Corsican sites (population size, structure, threats, and protection status), and proposes conservation and management measures.
1. Introduction
Les fougères (Ptéridophytes) constituent un groupe ancien de plantes vasculaires qui occupent une place essentielle dans l’histoire évolutive du règne végétal. Avec 12 000 espèces dans le monde, contre 250 000 pour les plantes à fleurs, les fougères ne représentent qu’une petite partie de la biodiversité végétale (Prelli & Boudrie, 2024). Leur importance n’en est pas moins considérable. Apparues il y a plus de 360 millions d’années, elles se distinguent par un cycle de reproduction sans fleurs ni graines, reposant sur des spores et un gamétophyte indépendant. Elles sont également caractérisées par une grande diversité morphologique et par leur capacité à coloniser des milieux variés, depuis les sous‑bois humides jusqu’aux anfractuosités rocheuses ensoleillées. Parmi elles, le genre Asplenium compte environ 750 espèces (inclus Ceterach Willd., Phyllitis Hill. ; Tison & de Foucault, 2014). Il se singularise par sa préférence pour les habitats rocheux et calcaires. Asplenium sagittatum (l’Asplénie sagittée) illustre parfaitement cette spécialisation écologique. Il s’agit d’une espèce sténoméditerranéenne relativement disséminée sur l’ensemble de son aire de présence et toujours rare. En Corse, elle n’est connue que sur la commune de Bunifaziu (Bonifacio), à l’extrême sud de l’île, où elle occupe une quinzaine de localités.
Au niveau réglementaire, Asplenium sagittatum figure à l’annexe I de la Liste des espèces végétales protégées sur l’ensemble du territoire français métropolitain (arrêté du 20 janvier 1982, modifié par l’arrêté du 31 août 1995). Par ailleurs, le taxon figure dans le Livre rouge de la flore menacée de France, tome I (Olivier et al., 1995) et il est inscrit en Corse et en Provence-Alpes-Côte d’Azur sur les listes des espèces déterminantes de l’inventaire ZNIEFF (zones naturelles d’intérêt écologique, faunistique et floristique). Enfin, il est évalué en « VU » (vulnérable) dans les Listes rouges régionales de la flore vasculaire de Corse (Delage & Hugot, 2015) et de la flore vasculaire de Provence-Alpes-Côte d’Azur (Noble et al., 2015), en « NT » (quasi menacé) dans la Liste rouge de la flore vasculaire de France métropolitaine (UICN France, FCBN, AFB & MNHN, 2018) et en « LC » (préoccupation mineure) dans la Liste rouge européenne des lycopodes et des fougères (García et al., 2017).
En 2021, le Conservatoire botanique national de Corse (CBNC), dans le cadre de la rédaction de la stratégie régionale de conservation pour la flore de Corse (Piazza et al., 2021), a réalisé une hiérarchisation des taxons selon trois critères : la rareté biogéographique, la rareté locale et les menaces (vulnérabilité de l’habitat et artificialisation). L’application de ces critères à l’ensemble des taxons de la flore de Corse (hors taxons exotiques) a permis d’attribuer une note à chacun d’entre eux, allant de 15 pour les taxons à enjeu de conservation le plus fort, à 3 pour les taxons à enjeu de conservation le plus faible. Asplenium sagittatum a obtenu, en l’état des connaissances en 2021, une note de vulnérabilité de 10 sur 15 (score de 2 sur 5 pour la rareté biogéographique, de 5 sur 5 pour la rareté locale, soit 3 mailles de présence de 5 x 5 km² entre 2000 et 2021 et de 3 sur 5 pour la menace liée à la vulnérabilité/artificialisation de l’habitat). L’espèce se classe, selon la méthodologie retenue, dans la catégorie d’enjeu « fort » sur l’île. Dans les étapes ultérieures de la stratégie, une action a été définie pour chaque taxon prioritaire de la stratégie régionale de conservation (c’est-à-dire pour les taxons à enjeu « fort », à score compris entre 9,5 et 11,29 et les taxons à enjeu « très fort », à score compris entre 11,3 et 15) (Piazza et al., 2022). Pour Asplenium sagittatum, un « bilan stationnel » a été préconisé (note 1). Ce travail a été réalisé en 2026. Il a eu pour objectifs de rechercher et de vérifier l’état de ses sous-populations dans les différentes localités où il a été signalé et de comparer les résultats avec ceux des précédents suivis trouvés dans la littérature.
Après une présentation de la méthodologie dans la première partie de l’article, nous ferons, dans la seconde partie, un état des lieux des connaissances sur le taxon et nous présenterons, dans la dernière partie, les résultats de la campagne de terrain, réalisée en Corse en 2026.
2. Méthodologie
Périodes de prospection. Le travail de terrain, d’une durée de quatorze jours, s’est déroulé du 2 mars au 9 juin 2026. Les prospections ont été menées par Carole Piazza sur l’ensemble des sites, avec l’appui d’Alain Delage sur les sites de Canetto (sous-populations M, N, O, planche 2) ainsi que sur la partie amont du ruisseau de Canali (sous-population L, planche 2).
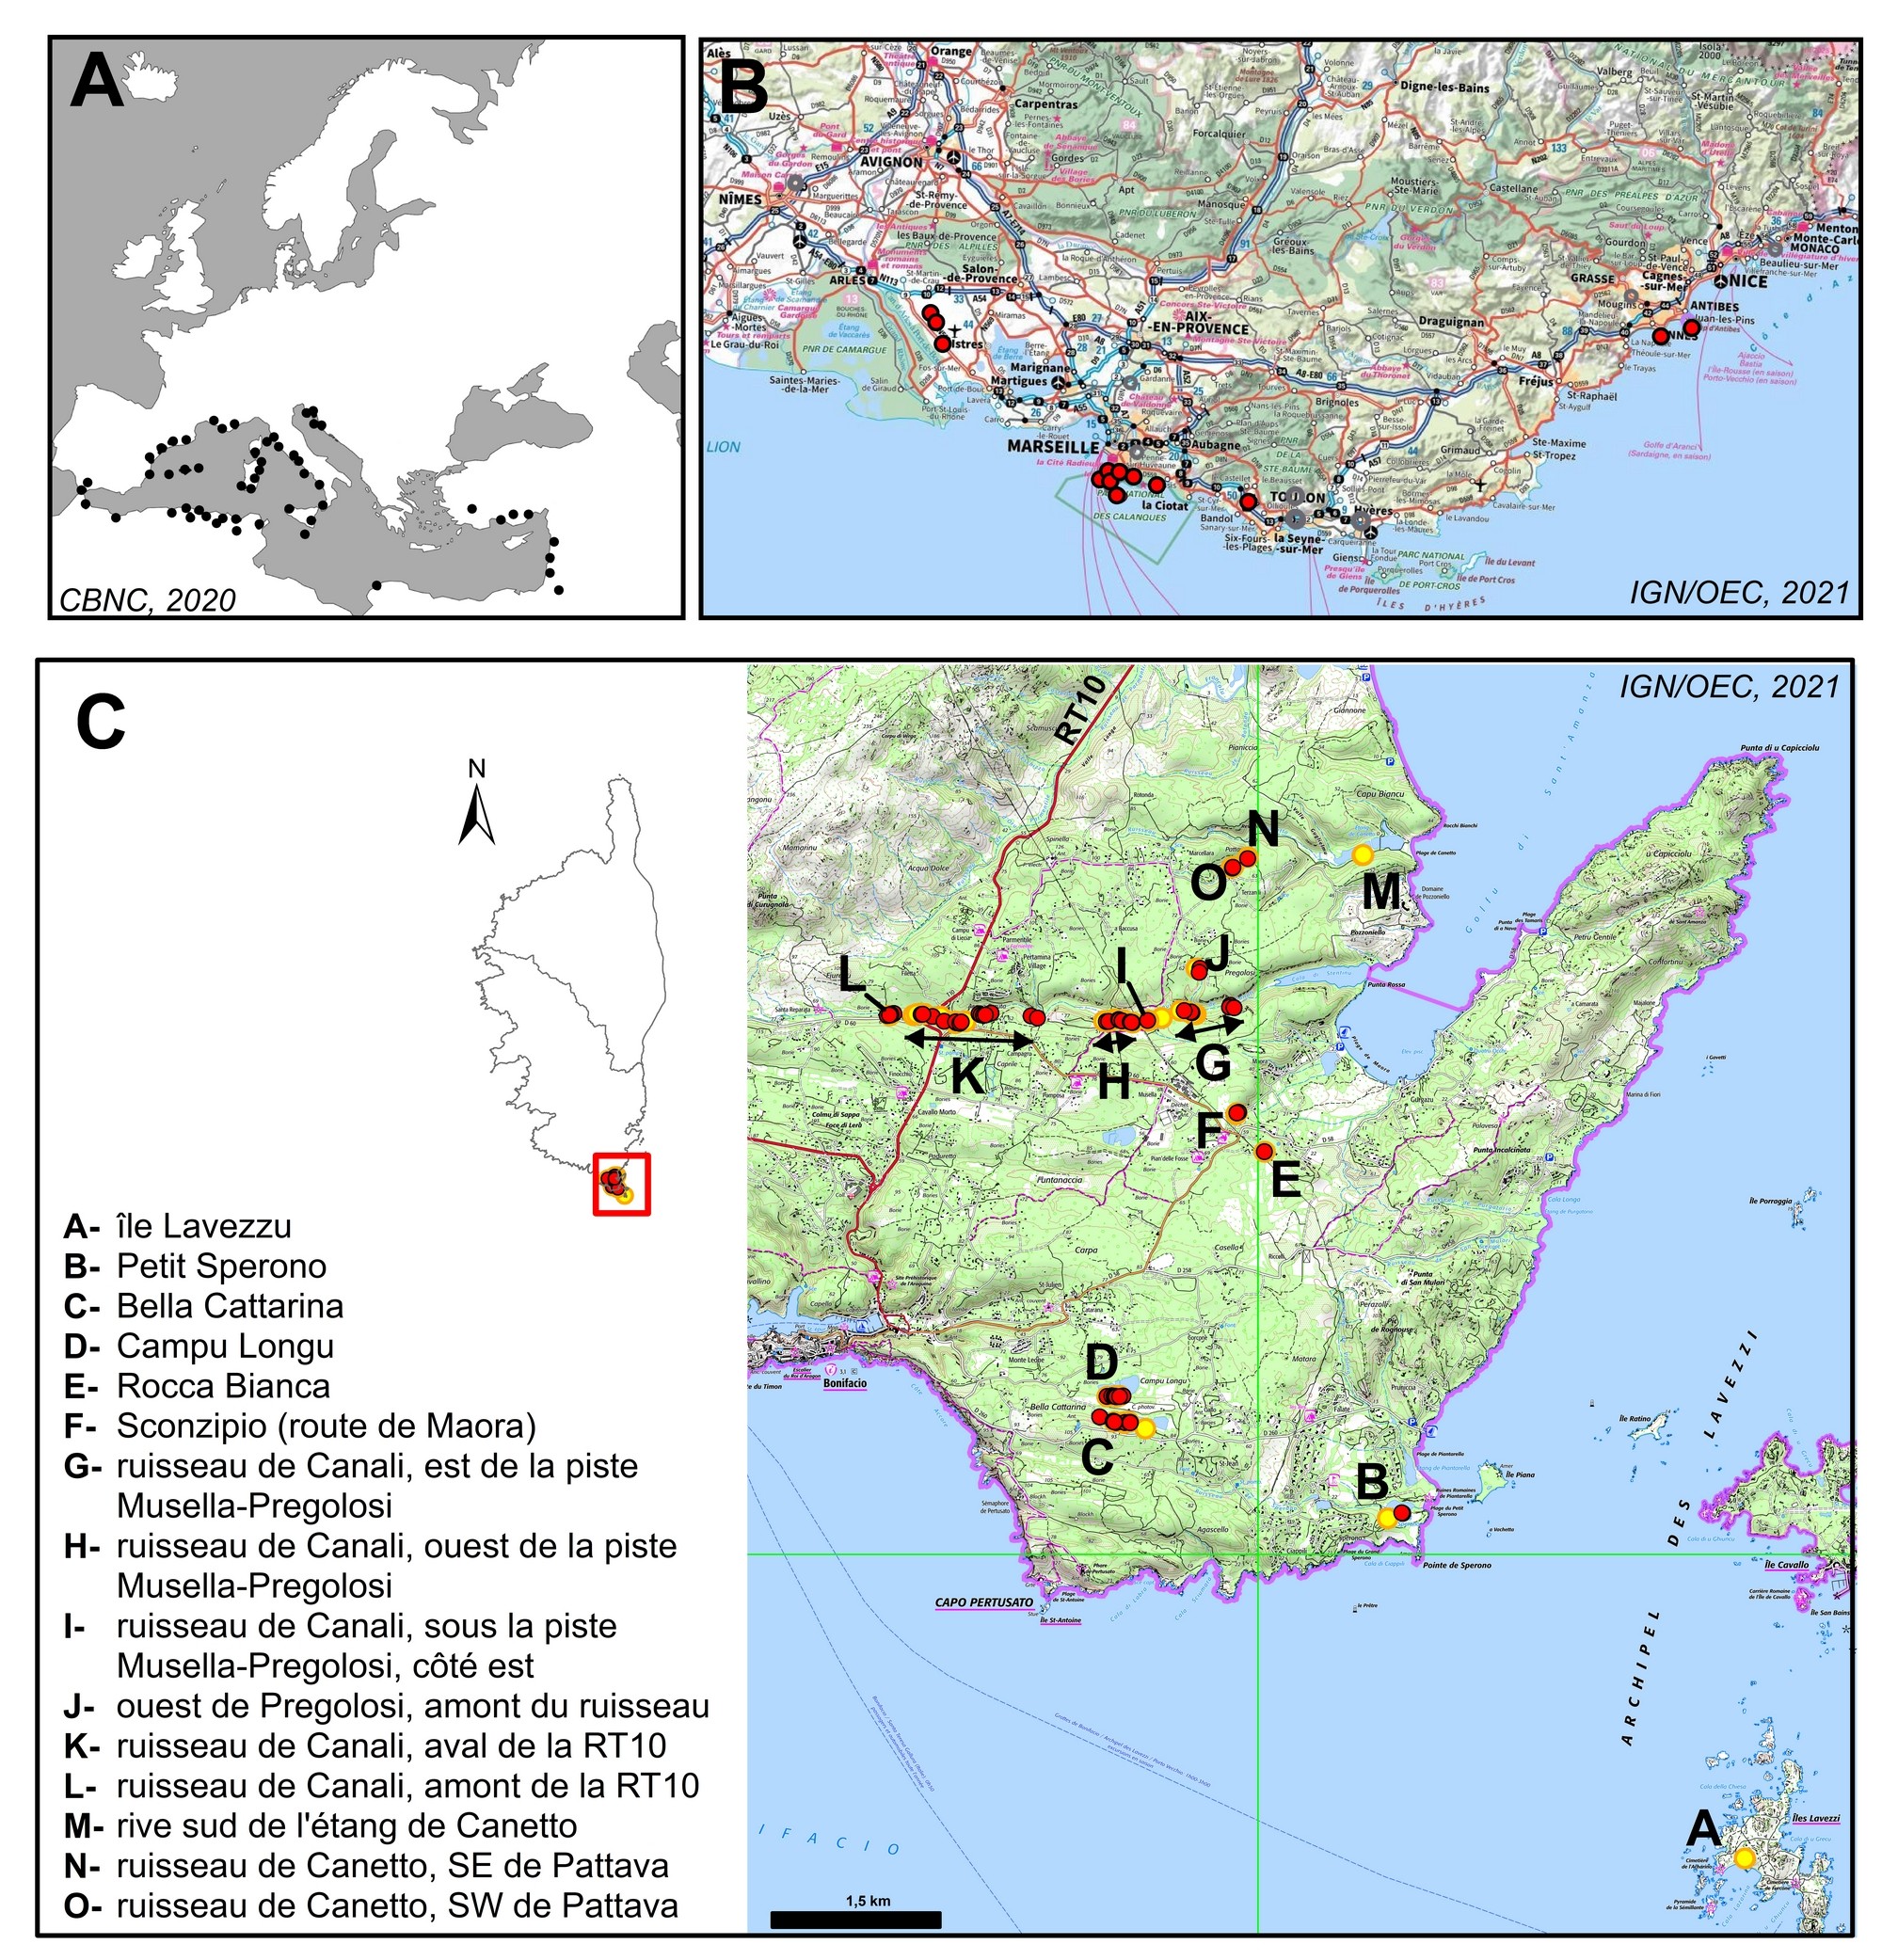
Localisation et cartographie des sous-populations en Corse. Nous nous sommes appuyés sur la base de données floristiques Simethis (simethis.eu), créée par le Conservatoire botanique national méditerranéen de Porquerolles (CBNMéd) et à laquelle le CBNC est associé et sur la bibliographie pour la recherche des localités « historiques » c’est-à-dire anciennement connues. Toutes ont été visitées à l’exception de celle de l’île Lavezzu (sous-population A, planche 2). Quelques sites potentiellement favorables à la présence du taxon et/ou situés dans la continuité de localités existantes ont également été prospectés, ce qui a permis d’étendre, à la marge, l’aire de présence du taxon. Chaque individu ou groupe d’individus observés a été pointé au GPS de façon à établir une cartographie précise de la répartition du taxon sur ses différents sites de présence (planches 5 à 11).
La localisation générale du taxon s’est appuyée sur Mifsud et al. (2016), Prelli & Boudrie (2024) et sur les sites en ligne suivants :
https://www.gbif.org/fr/occurrence/search?taxonKey=HLDD&view=map ; https://europlusmed.org/cdm_dataportal/taxon/0bf09538-7cda-4610-88fb-92473b633660 ; https://powo.science.kew.org/taxon/urn:lsid:ipni.org:names:17371940-1.
La localisation en France continentale s’est appuyée sur les données récentes du CBNMéd recherchées dans la base de données Simethis.
Étude démographique et évolution des sous-populations. Les individus ont été comptés dans chacune des sous-populations et leur stade phénologique a été noté. Les résultats obtenus ont été comparés aux comptages réalisés par Alain Delage entre 2007 et 2013 Isabelle Guyot (1990-1991) et Alain Fridlender (1993), indiqués dans la base de données Simethis. Les caractères concernant l’écologie, la biologie et la phénologie du taxon ont été notés, ainsi que les menaces pesant sur l’espèce et sur ses habitats.
Détermination et nomenclature des taxons. Les espèces ont été déterminées avec les flores de Coste (1906), de de Bolòs & Vigo (1984), de Pignatti (2003, 2017), d’Arrigoni (2006), de Jeanmonod & Gamisans (2013), de Tison & de Foucault (2014) et de Prelli & Boudrie (2024). La nomenclature suit Taxref 18 (Gargominy et al., 2025) pour les noms scientifiques et Mercier (2022) pour les noms français.
Relevés phytosociologiques. La description de la végétation se base sur treize de nos relevés, réalisés suivant la méthode phytosociologique sigmatiste (Géhu & Rivas-Martínez, 1981). Ces relevés sont groupés dans l’annexe 1. Les coefficients de recouvrement (CR) ont été calculés en suivant la pratique habituelle (Vanden Berghen, 1982 ; Géhu, 2006) (note 2).
Pour la nomenclature syntaxonomique, nous nous sommes appuyés sur Gamisans (1991), Rivas-Martínez et al. (1992), Olivier et al. (1995), Bardat et al. (2004), de Foucault (2016), Mucina et al. (2016), Reymann et al. (2016), Noble & Baret (2019), UMS PatriNat (2021), Lafon et al. (2024) et Roux et al. (2024).
Les supports topographiques utilisés ont été les cartes au 1:25 000 (IGN/OEC, 2021), les photos aériennes (IGN/OEC, 2019).
Enfin, une analyse des protections réglementaire et foncière a également été faite.
3. Présentation d’Asplenium sagittatum
3.1. Taxonomie, caryologie et synonymes
- Famille : Aspleniaceae Newman, 1840.
- Taxonomie : Asplenium sagittatum (DC.) Bange, 1952 (Bange, 1952 ; Gargominy et al., 2025).
- Nom vernaculaire : Asplénie sagittée (Mercier, 2022), Herbe à la mule, Scolopendre à oreillettes, Scolopendre sagittée.
- Caryologie : 2n = 72 (in Berthet, 1981).
- Synonymes : Asplenium hemionitis auct. non L., 1753, sensu Sw., 1801 ; Scolopendrium hemionitis Lagasca, D. García & Clemente, 1802 ; Scolopendrium sagittatum DC., 1815 ; Phyllitis hemionitis auct. non (L.) Kuntze, 1891 ; Asplenium sagittatum (DC.) Bange, 1952 ; Phyllitis sagittata (DC.) Guinea & Heywood, 1954.
Le genre Phyllitis n’ayant pratiquement aucun caractère générique valablement différentiel, Bange (1952) a reversé les espèces du genre Phyllitis dans le genre Asplenium. Ainsi, Phyllitis scolopendrium (L.) Newmann, 1844 a repris le nom donné par Linné, soit Asplenium scolopendrium L., 1753. En revanche, la préexistence d’un Asplenium hemionitis L., 1753 du Portugal, d’Afrique du Nord et des îles atlantiques n’a pas permis de conserver au Phyllitis hemionitis son épithète spécifique. Bange a donc repris le nom de sagittatum que lui avait donné A. de Candolle en 1815.
Ainsi, Asplenium sagittatum (DC.) Bange, 1952 est fondé sur Scolopendrium sagittatum DC., 1815. La combinaison ultérieure Phyllitis sagittata (DC.) Guinea & Heywood, 1954, bien que valablement publiée, est postérieure et constitue un synonyme taxonomique. Les mentions de Phyllitis hemionitis ou Asplenium hemionitis correspondent à des applications erronées du nom de Linné et ne doivent pas être retenues. Aucun type n’a été formellement désigné pour le basionyme.
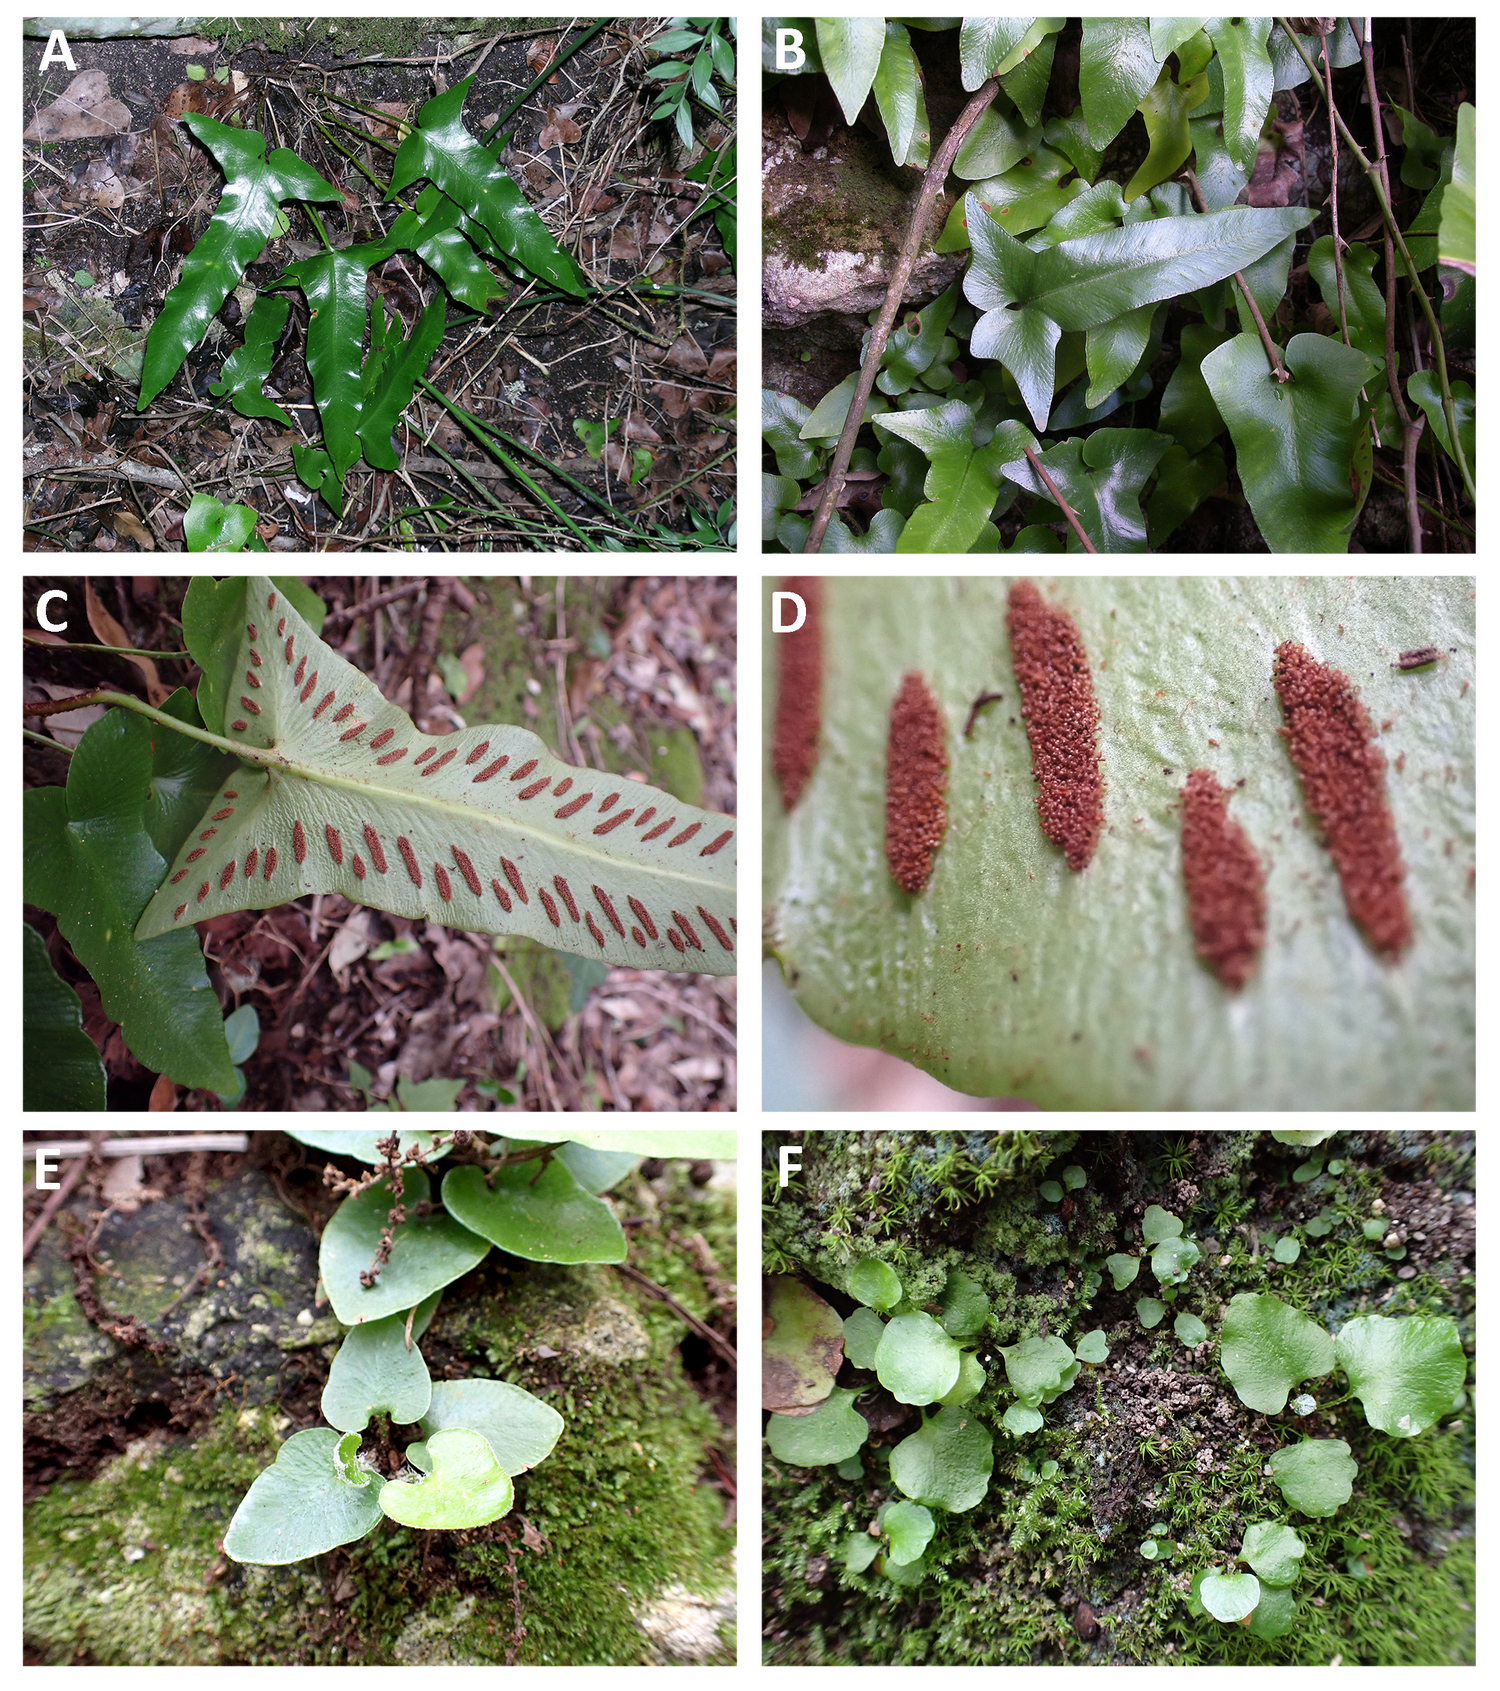
3.2. Étymologie et description morphologique (planche 1)
La description du taxon est donnée ci-dessous d’après la bibliographie (Coste, 1906 ; de Bolòs & Vigo, 1984 ; Pignatti, 2003, 2017 ; Arrigoni, 2006 ; Jeanmonod & Gamisans, 2013 ; Tison et al., 2014 ; CBNC, 2020 ; Prelli & Boudrie, 2024) et d’après nos observations de terrain.
Étymologie : Le nom de genre Asplenium correspond à Asplenon, nom donné par le médecin grec Dioscoride (1er siècle de notre ère) à des plantes guérissant des maladies de la rate (splen en grec). L’épithète spécifique sagittatus/a/um « percé d’une flèche » signifie, en botanique, « en forme de fer de flèche », par suite de la présence, au bas du limbe, de deux lobes pointus.
Description : fougère pérenne, à rhizome court et rampant, permettant un ancrage solide de la plante dans les fissures calcaires où elle se développe. Feuilles (frondes) d’un vert sombre et luisant, visibles toute l’année, de 8-30 cm, à pétiole et rachis parsemés d’écailles. Pétiole plus court ou aussi long que le limbe. Limbe étroitement triangulaire, 2-3 fois aussi long que large, à base élargie et en cœur, présentant deux lobes en oreillettes (peu marqués toutefois sur les petites frondes). Sores disposés en chevrons par rapport à la nervure médiane de la fronde et à celles des lobes, pouvant atteindre 15 mm de long, linéaires, jumelés, allongés le long de deux nervures adjacentes parallèles et ayant chacune une indusie fixée sur sa bordure externe, l’ensemble simulant un sore unique à l’indusie se fendant en deux valves (sores scolopendroïdes).
3.3. Reproduction, cycle de vie et phénologie
Reproduction et cycle de vie. Chez les fougères, les frondes assurent à la fois des fonctions photosynthétiques et reproductrices, puisqu’elles portent sur leur face inférieure des sporanges regroupés en sores. À maturité, les sporanges libèrent des spores disséminées principalement par le vent. En conditions favorables, celles-ci germent pour former un prothalle, petit gamétophyte portant les organes reproducteurs mâles et femelles. La fécondation, dépendante de la présence d’eau, conduit à la formation d’un embryon qui se développe en sporophyte autonome. Le cycle de vie est ainsi caractérisé par une alternance de générations entre un sporophyte diploïde dominant et un gamétophyte haploïde, réduit et éphémère.
Autofécondation et fécondation croisée (d’après Prelli & Baudrie, 2024). Le schéma classique proposé chez les fougères pour la sexualité du prothalle sous-entend une autofécondation entre anthérozoïde et oosphère formés par un même prothalle. Des tests de culture réalisés en laboratoire démontrent la réalité de l’autofécondation intragamétophytique, mais aussi ses limites. Schneller (1979) a montré que la culture de spores isolées d’Athyrium filix-femina (L.) Roth donne naissance à un jeune sporophyte dans 27 % des cas. Mais, les pourcentages de réussite sont bien supérieurs dans les cultures de spores groupés par deux : développement d’un sporophyte dans 79 % des cas si les deux spores viennent de la même plante et dans plus de 95 % si elles viennent de plantes différentes. L’autofécondation est rare dans le monde vivant car elle ne permet aucun brassage génétique et limite considérablement les possibilités évolutives et adaptatives des populations qui en sont issues. Il n’est donc pas surprenant de découvrir que des obstacles tendent à limiter son importance et à favoriser des fécondations croisées entre prothalles différents, nés d’un même sporophyte ou (ce qui est génétiquement préférable) de sporophytes différents. Il s’agit notamment d’actions hormonales ou de mécanismes génétiques, mais ces phénomènes sont encore trop peu étudiés sur les espèces européennes (Prelli & Boudrie, 2024). Néanmoins, l’existence d’hybrides parmi les populations naturelles, dont l’origine implique la réalisation d’une fécondation croisée, démontre que l’importance de ce mode de reproduction est loin d’être négligeable. On peut citer à titre d’exemples Asplenium hybridum (Milde) Bange (= Phyllitopsis hybrida (Milde) Reichst.) hybride allotétraploïde (144 chromosomes) entre Asplenium sagittatum et Ceterach officinarum subsp. bivalens (espèces diploïdes à
2n = 72 chromosomes) connu seulement dans quelques îles bordant l’Adriatique en Croatie (Prelli & Boudrie, 2024) ou encore A. ´dutartrei Berthet (3n), hybride stérile entre A. ceterach (4n) et A. sagittatum (2n), découvert en août 1978 par Gilles Dutartre dans une fissure des rochers granitiques de la partie sud-ouest de l’île Cavallo et décrit par Berthet (1981). Un seul individu de cet hybride a été observé. Les quelques frondes prélevées en mai 1979 constituent l’échantillon de référence du taxon (ou type). Elles se trouvent dans l’herbier Berthet, sous le n° 1580. Ce taxon, très proche du précédent, serait donc d’après Berthet (1981) : « l’homologue, occidental et triploïde, d’Asplenium hybridum, oriental et tétraploïde ». Il n’a pas été revu depuis 1979.
Phénologie d’Asplenium sagittatum. Les frondes d’Asplenium sagittatum se développent en fin d’hiver et persistent jusqu’à l’année suivante. La sporulation a lieu du printemps au début de l’été.
3.4. Chorologie (planche 2)
Asplenium sagittatum ne présente que de petites localités disjointes sur le pourtour méditerranéen. L’espèce ne s’éloigne guère du littoral et reste rare sur l’ensemble de son aire. Sa répartition relativement fragmentée reflète ses exigences écologiques strictes et la rareté de ses habitats préférentiels.
Répartition générale. Cette espèce est présente en Europe méridionale, notamment en Espagne (y compris aux Baléares : Ibiza, Majorque et Minorque), en France (dont la Corse), en Italie – principalement sur la façade sud-ouest – ainsi qu’en Sardaigne et en Sicile. Elle est également signalée à Malte et en Croatie. Au Moyen-Orient, sa présence est attestée au Liban, en Syrie, en Israël, en Palestine et en Jordanie. En Afrique du Nord, elle est connue en Libye, en Algérie, en Tunisie et au Maroc. Sa présence en Grèce demeure très incertaine, reposant sur une mention ancienne du xixe siècle qui n’a jamais été confirmée. Elle est en revanche considérée comme absente de Crète (les signalements étant dus à une confusion avec une forme particulière d’A. scolopendrium), ainsi qu’à Chypre (Prelli & Boudrie, 2024).
Répartition en France. L’espèce est peu fréquente en France continentale. D’après les données récentes du CBNMéd (tirées de la base de données Simethis) on la trouve ponctuellement, en Provence, depuis Saint-Martin-de-Crau à l’ouest (dans ou à proximité de la Réserve naturelle des Coussouls de Crau, à l’ouest de l’étang de Berre), jusqu’au cap d’Antibes à l’est. Entre ces deux points, elle est présente dans le Parc national des Calanques au sud/sud-est de Marseille, y compris dans l’île Maïre et dans l’île de Riou (non revue récemment dans l’île de Jarre), à la pointe du Cerveau (Sanary-sur-Mer) et sur l’île Sainte-Marguerite au sud-est de Cannes. Elle n’a pas été revue depuis le xixe siècle entre la Seyne-sur-Mer et Hyères et semble éteinte dans le Gard où elle a été trouvée en 1867, dans un puits, près de Nîmes (Tison et al., 2014 ; Prelli & Boudrie, 2024).
Répartition en Corse. L’espèce se trouve uniquement sur le plateau calcaire de Bunifaziu en Corse-du-Sud. Une quinzaine de localités est connue : à l’ouest de l’étang de Canetto ; dans le vallon de Canali ; à Sconzipio, au SW du golfu di Sant’Amanza ; à Rocca Bianca, à l’est de Pian’delle Fosse ; à Campu Longu, Bella Cattarina et sur la rive sud de l’étang de Sperono. En revanche, le taxon a disparu de la rive sud de l’étang de Canetto et n’a pas été recherché sur l’île Lavezzu.
3.5. Écologie (planche 3)
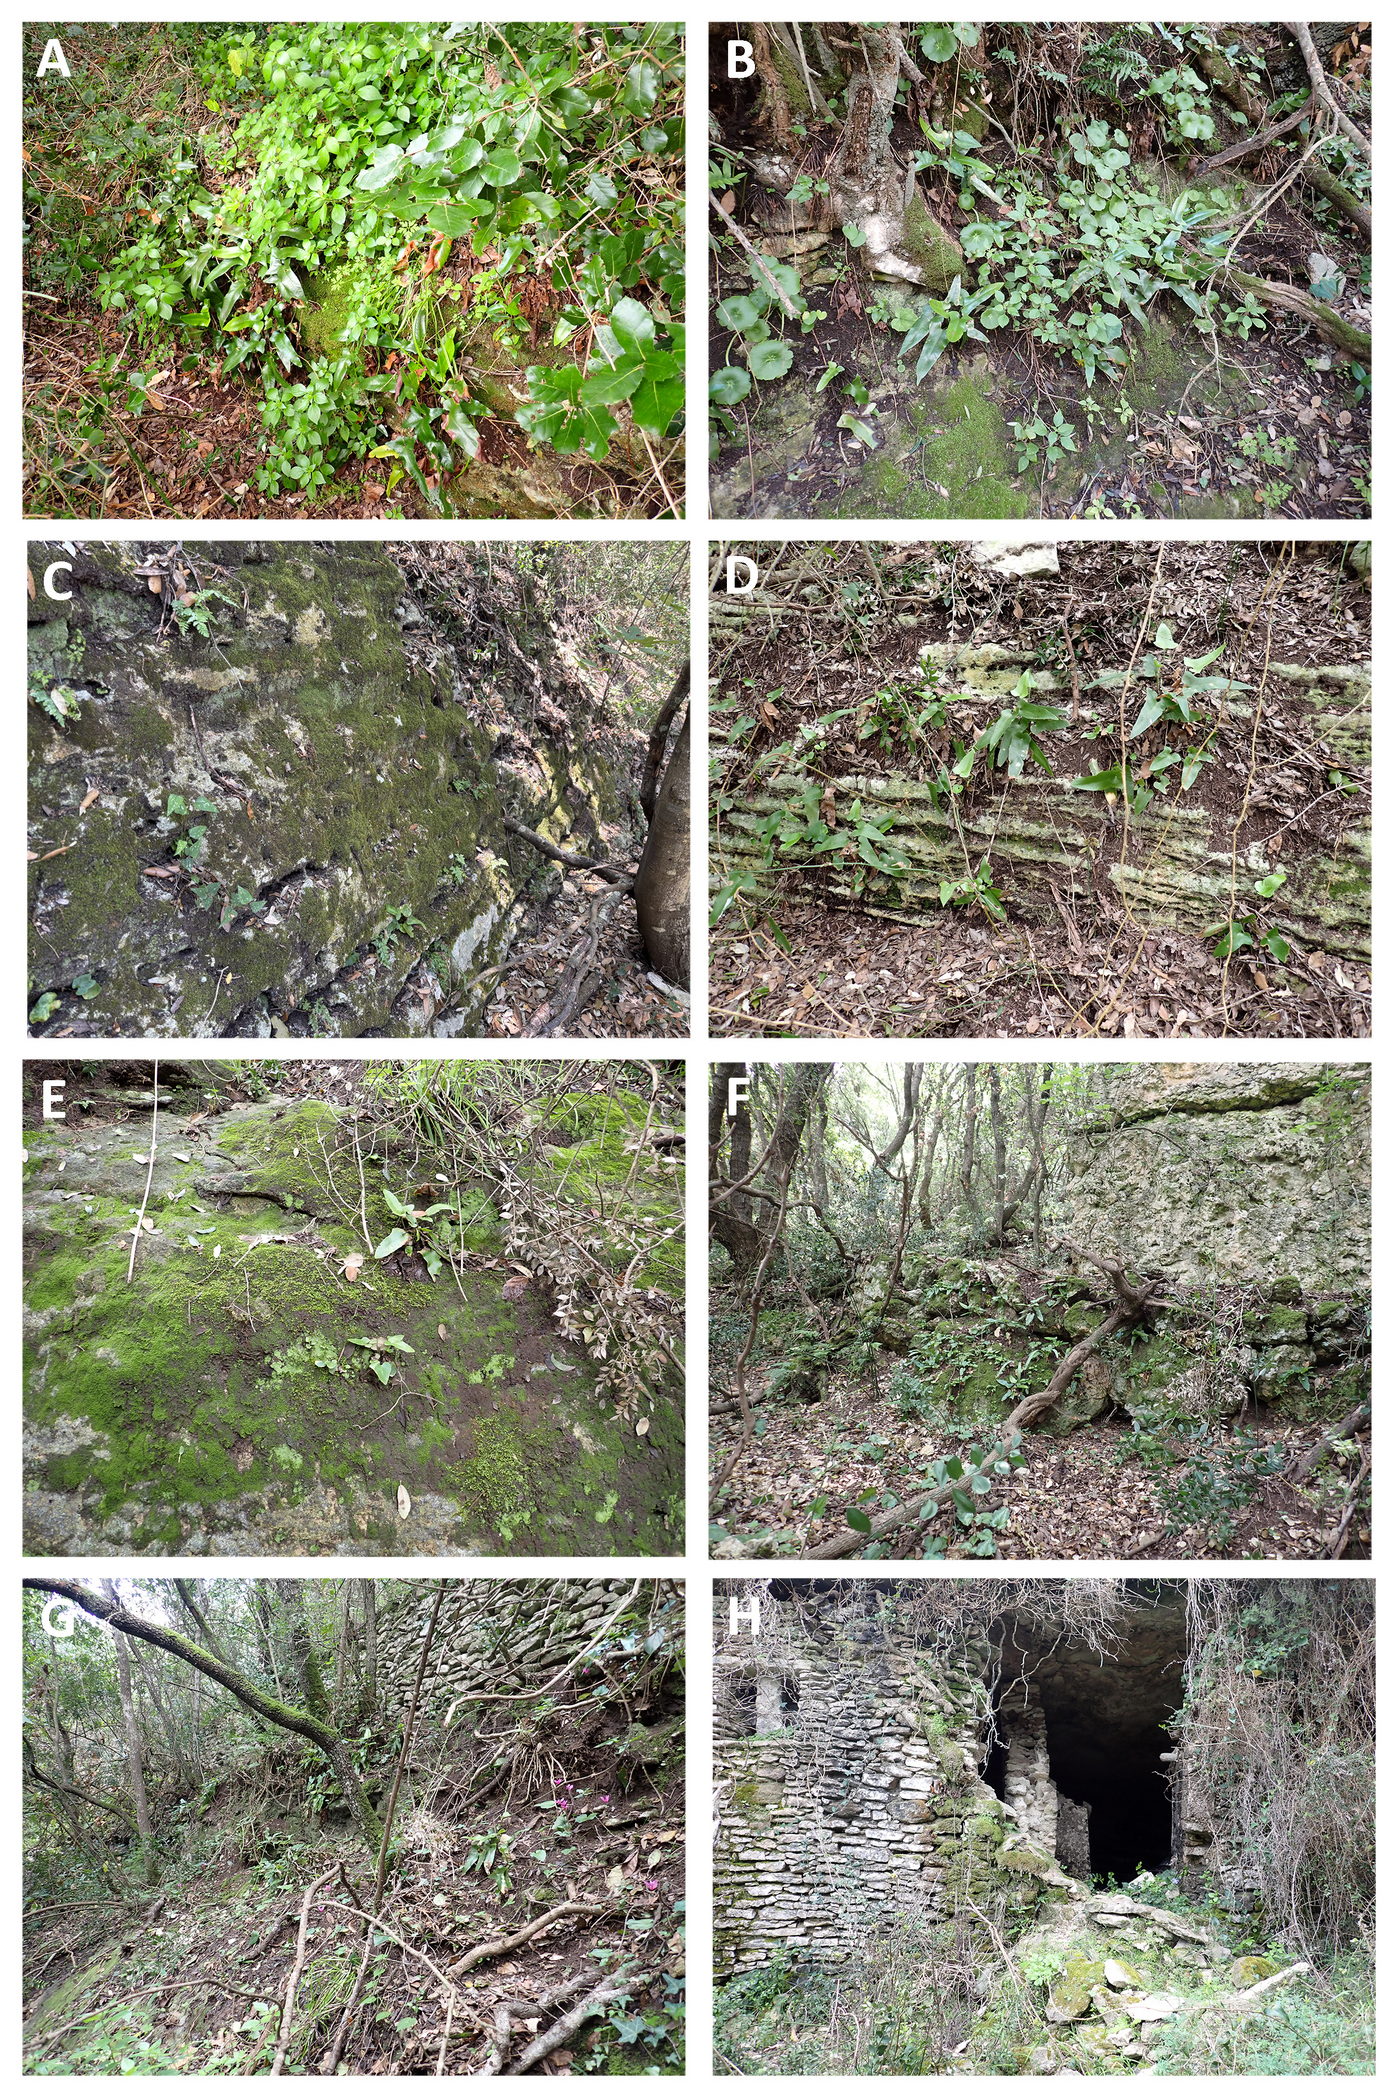
Asplenium sagittatum est une plante thermophile, qui se rencontre seulement sur des rochers calcaires ombragés du pourtour méditerranéen et qui n’exprime sa morphologie caractéristique que dans les sites où l’ombrage est associé à une humidité importante : vallons encaissés, falaises suintantes, vieux murs en pierres sèches, entrée de grottes ou de gouffres. Elle peut également se réfugier dans des puits. Elle se trouve le plus souvent à basse altitude et à proximité du littoral, parfois sur des îlots, mais est signalée jusqu’à 1 000 m d’altitude en Espagne (Prelli & Boudrie, 2024). L’espèce préfère les microhabitats frais, peu exposés au soleil direct, bénéficiant d’une hygrométrie relativement stable.
En Corse, cette fougère est strictement inféodée aux rochers calcaires très ombragés et humides de l’étage thermoméditerranéen. On la trouve principalement sur les encorbellements, en sous-bois dense de chêne-vert, dans les vallons encaissés, exposés principalement au nord. Elle est cependant capable de se maintenir sous forme prostrée lorsqu’elle est exposée à la lumière à la faveur d’un débroussaillement. Bien que connue pour être strictement inféodé au calcaire, Daniel Jeanmonod a observé sur l’île Lavezzu, en 1990, un individu d’A. sagittatum sur granite (Jeanmonod, 1991). Mais l’espèce n’a plus été revue depuis sur ce site, ce qui laisse penser qu’elle est apparue de façon occasionnelle et qu’elle ne s’est pas maintenue. De la même manière, un individu hybride, triploïde et stérile (A. ´dutartrei Berthet) a été trouvé sur l’île Cavallo. D’après Jeanmonod (1991) ces découvertes semblent démontrer que l’espèce peut vivre sur granite dans les îlots. Les deux taxons n’ont pas été revus depuis. Néanmoins, aucune prospection ciblée n’a été entreprise pour tenter de les retrouver.
3.6. Syntaxonomie (annexe 1)
Du point de vue écologique, Asplenium sagittatum est une espèce caractéristique des rochers calcaires humides en contexte méditerranéen. Elle colonise principalement les fissures ombragées, les grottes, ainsi que les falaises suintantes, les encorbellements et les murets de pierres sèches des étages thermo‑ à mésoméditerranéens. Dans la littérature, elle est le plus souvent rattachée à la classe des Parietarietea judaicae (végétation rudérale vivace des murs et rochers méditerranéens) (Rivas-Martínez et al., 1992 ; de Foucault, 2016 ; Noble & Baret, 2019 ; Lafon et al., 2024 ; Roux et al., 2024) ou, par défaut, à celle des Asplenietea trichomanis (végétation des parois rocheuses calcaires) (Gamisans, 1991 ; Olivier et al., 1995 ; Reymann et al., 2016).
A. sagittatum est généralement une espèce compagne, rarement caractéristique d’association. Plusieurs travaux floristiques mentionnent sa présence au sein de cortèges végétaux sans pour autant formaliser de syntaxons. Toutefois, une association dans laquelle cette espèce joue un rôle structurant a été décrite aux Baléares, par Rivas-Martínez et al. (1992), sur la base de deux relevés comprenant trois taxons (Parietaria judaica, Phyllitis sagittata et Asperula paui) : le Parietario judaicae‑Phyllitidetum sagittatae Rivas Mart. et al. 1992, caractéristique des végétations de murs et de rochers anthropisés du thermo‑méditerranéen. D’abord incluse dans les Asplenietea trichomanis (Rivas-Martínez et al., 1992), elle a ensuite été classée dans les Parietarietea judaicae Rivas Mart. in Rivas Goday 1964 (Parietarietalia judaicae Rivas Mart. in Rivas Goday 1964, Centrantho rubri-Parietarion judaicae Rivas Mart. 1960 (Noble & Baret, 2019 ; Lafon et al., 2024).
Selon de Foucault (2016), cette association serait remplacée en France méditerranéenne par un syntaxon vicariant, nettement plus riche en espèces. Cette hypothèse s’appuie sur les relevés publiés par Knoerr (1960) et a conduit à la description d’une nouvelle association : le Pallenido maritimae‑Asplenietum sagittati Knoerr ex B. Foucault 2016. Cette dernière, classée dans les Parietarietalia judaica et dont l’alliance reste indéterminée (de Foucault, 2016 ; Roux et al., 2024), correspond à des « pelouses chasmophytiques aérohalophiles sciaphiles colonisant les interstices des falaises calcaires méditerranéennes très ombragées, exposées au nord, plus ou moins suintantes, enrichies en éléments azotés par le lessivage des déjections des oiseaux de mer ». De Foucault (2016) souligne, par ailleurs, que « la définition de ce syntaxon halonitrophile, relevant des Parietarietea judaicae, n’empêche pas l’éventuelle description d’un autre syntaxon à A. sagittatum lié à des sites plus préservés, moins nitratés, à rattacher alors aux Asplenietea trichomanis et à l’Asplenion glandulosi » (de Foucault, 2016 ; Olivier et al., 1995). À l’inverse, Noble et Baret (2019) considèrent que la description du Pallenido maritimae‑Asplenietum sagittati est discutable, car fondée sur la présence d’espèces compagnes dont la fréquence serait en réalité liée à la méthode de relevé utilisée par Knoerr, notamment à une surface d’échantillonnage sans doute trop importante.
Dans son ouvrage de synthèse sur la végétation de la Corse, Gamisans (1991) classe, par défaut, les groupements à Asplenium sagittatum dans les Asplenietea rupestris Braun-Blanq. & Meier 1934 (groupements d’anfractuosités de rochers et de murs). Reymann et al. (2016) suivent cette proposition et rattachent également ces groupements à la classe des Asplenietea trichomanis (Asplenietalia glandulosi ; Asplenion glandulosi). Néanmoins, cette classe demeure complexe (Mucina et al., 2016) et n’a pas encore fait l’objet d’une synthèse nationale complète. La position phytosociologique des groupements à Asplenium sagittatum en Corse reste donc à préciser. Les relevés phytosociologiques récents (2026) suggèrent l’existence de deux types de groupements : des communautés relativement riches et souvent anthropisées, proches du Parietario judaicae-Phyllitidetum sagittatae (annexe 1, relevés 1 à 7), et des groupements plus naturels, peu perturbés, dominés par A. sagittatum (annexe 1, relevés 8 à 13). Dans les deux cas, la strate bryophytique est particulièrement développée et la couverture arborée à Quercus ilex dominant est souvent très dense.
3.7. Menaces (planche 4)
Asplenium sagittatum n’est pas considérée comme une espèce menacée à l’échelle globale. Elle est classée « NT » (quasi menacée) dans la Liste rouge de la flore vasculaire de France métropolitaine (UICN France, FCBN, AFB & MNHN, 2018) et « LC » (préoccupation mineure) dans la Liste rouge européenne des lycopodes et fougères (García et al., 2017). Toutefois, cette espèce peut présenter une vulnérabilité à l’échelle locale.
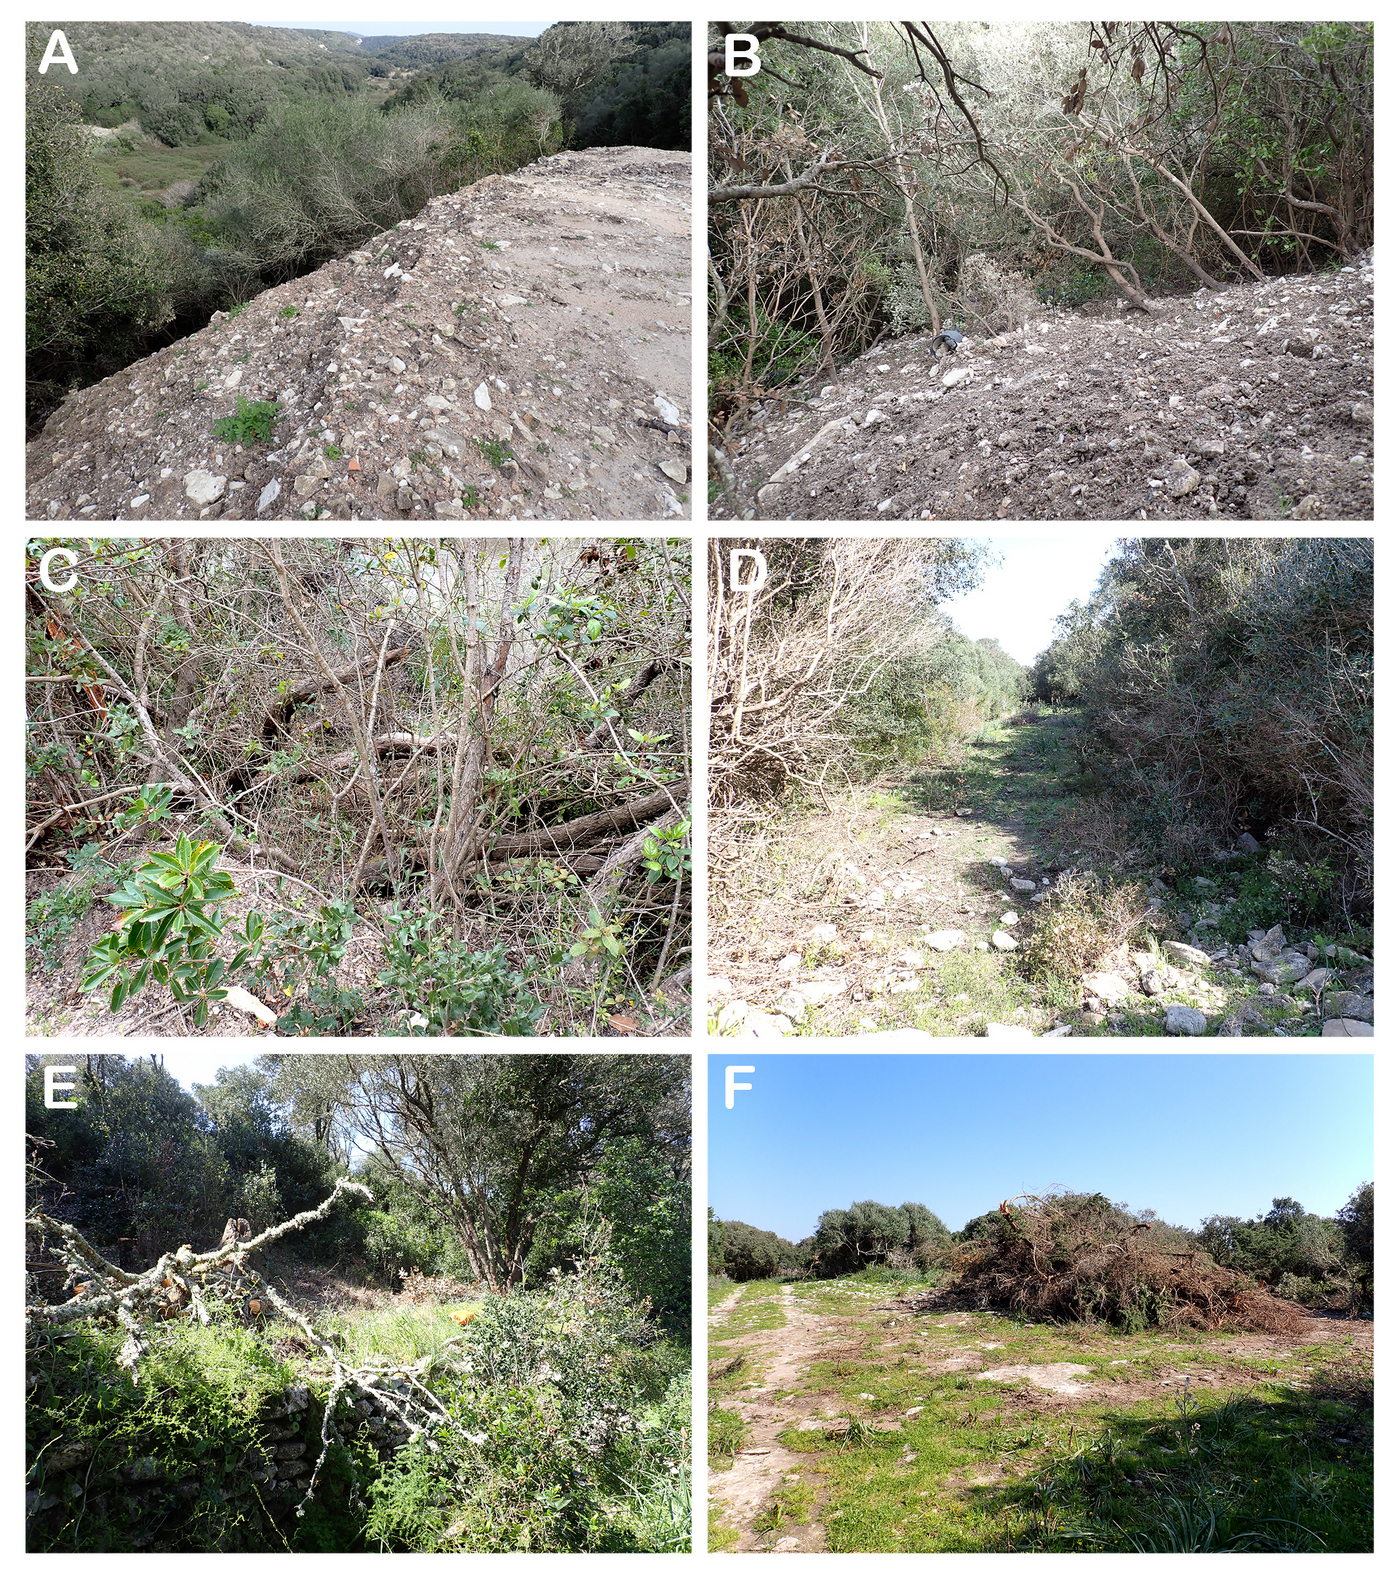
La dégradation ou la destruction de ses habitats rupestres – notamment lors de travaux de restauration ou de nettoyage des murs, de l’aménagement de falaises, ou encore de l’artificialisation des gorges – constitue une menace directe. Plusieurs localités ont d’ailleurs déjà disparu en France continentale.
En Corse, ce taxon se rencontre surtout sur des versants exposés au nord, à proximité de petits cours d’eau ou de plans d’eau temporaires. L’urbanisation et les aménagements des zones sommitales (plateaux), ainsi que les travaux de terrassement (notamment l’ouverture de pistes), le dépôt de gravats sur les pentes et le déboisement lié aux activités agricoles ou à la construction constituent autant de pressions susceptibles de perturber ses populations. Ces actions peuvent dégrader les habitats et, dans certains cas, entraîner la disparition de l’espèce, comme cela a été observé sur la rive sud de l’étang de Canetto (sous-population O, planches 2 et 11). Par ailleurs, les changements climatiques, notamment l’allongement des périodes de sécheresse, pourraient également lui être défavorables, effets possiblement amplifiés par la défoliation des chênes verts due aux attaques du Bombyx disparate (Lymantria dispar), comme cela a été constaté en mai-juin 2026.
Ainsi, la surveillance des sous-populations connues apparaît essentielle afin de suivre l’évolution de cette espèce sensible.
4. État des lieux des sous-populations corses en 2026
4.1. Historique des découvertes en Corse (planche 2)
Asplenium sagittatum est signalé dans le bassin calcaire de Bonifacio depuis le début du xixᵉ siècle avec des mentions anciennes peu précises (Briquet, 1910). À partir de la seconde moitié du xxᵉ siècle, les observations se multiplient et se précisent, notamment dans le vallon de Canali, autour des étangs de Sperono et de Canetto et sur l’île Lavezzu (Dutartre, 1978 ; Jauzein, 1989 ; Jeanmonod, 1991). Plusieurs localités sont confirmées et suivies au fil des décennies, tandis que de nouvelles localités sont découvertes à partir des années 2000 : Rocca Bianca, Bella Cattarina, Campu Longu, Pattava (Gamisans & Paradis, 2002 ; simethis.eu). Ces travaux ont progressivement permis d’améliorer la connaissance de la répartition de l’espèce, aujourd’hui estimée à une quinzaine de sous-populations.
4.2. Statut des sites (planches 5 à 11)
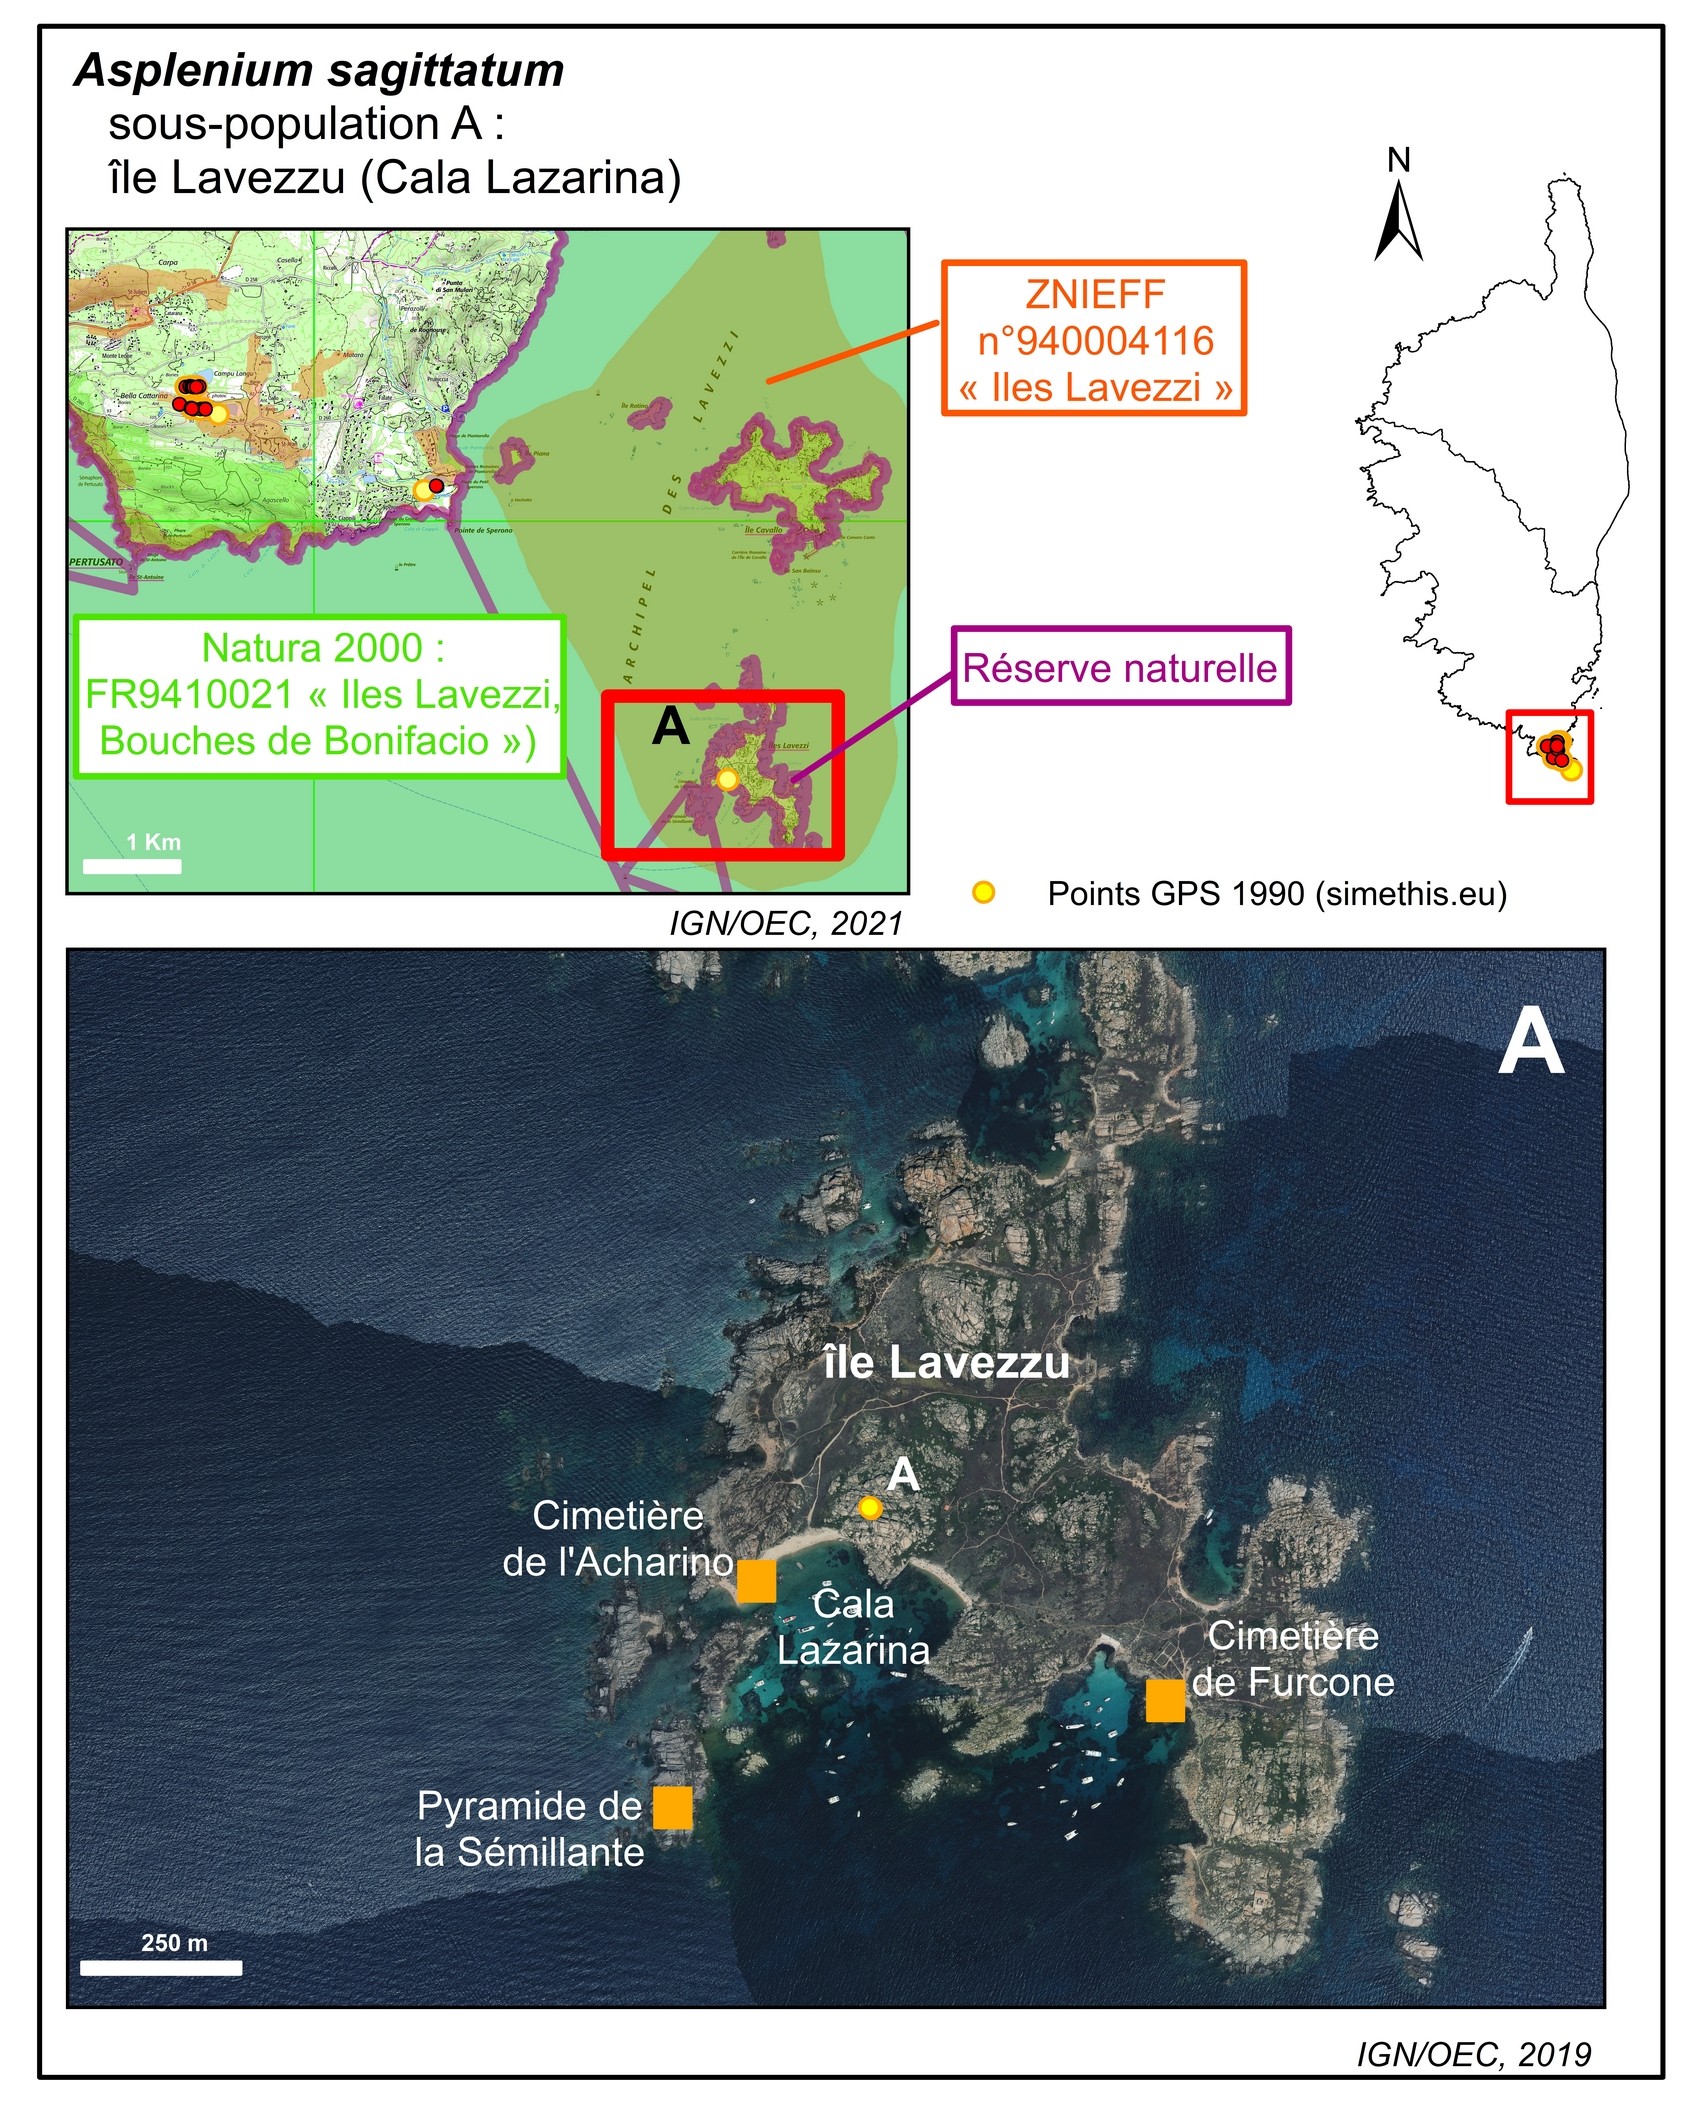
Seule l’île Lavezzu (planche 5) dispose de protections réglementaire et foncière fortes. Elle se situe dans la réserve naturelle des Bouches de Bonifacio, est intégrée au réseau Natura 2000 et est entièrement classée en ZNIEFF de type I. La sous-population de Bella Cattarina se trouve, pour partie, dans le périmètre d’un arrêté préfectoral de protection de biotopes (APPB) qui intègre les parcelles L 120, L 122 et L 123 (planche 7).
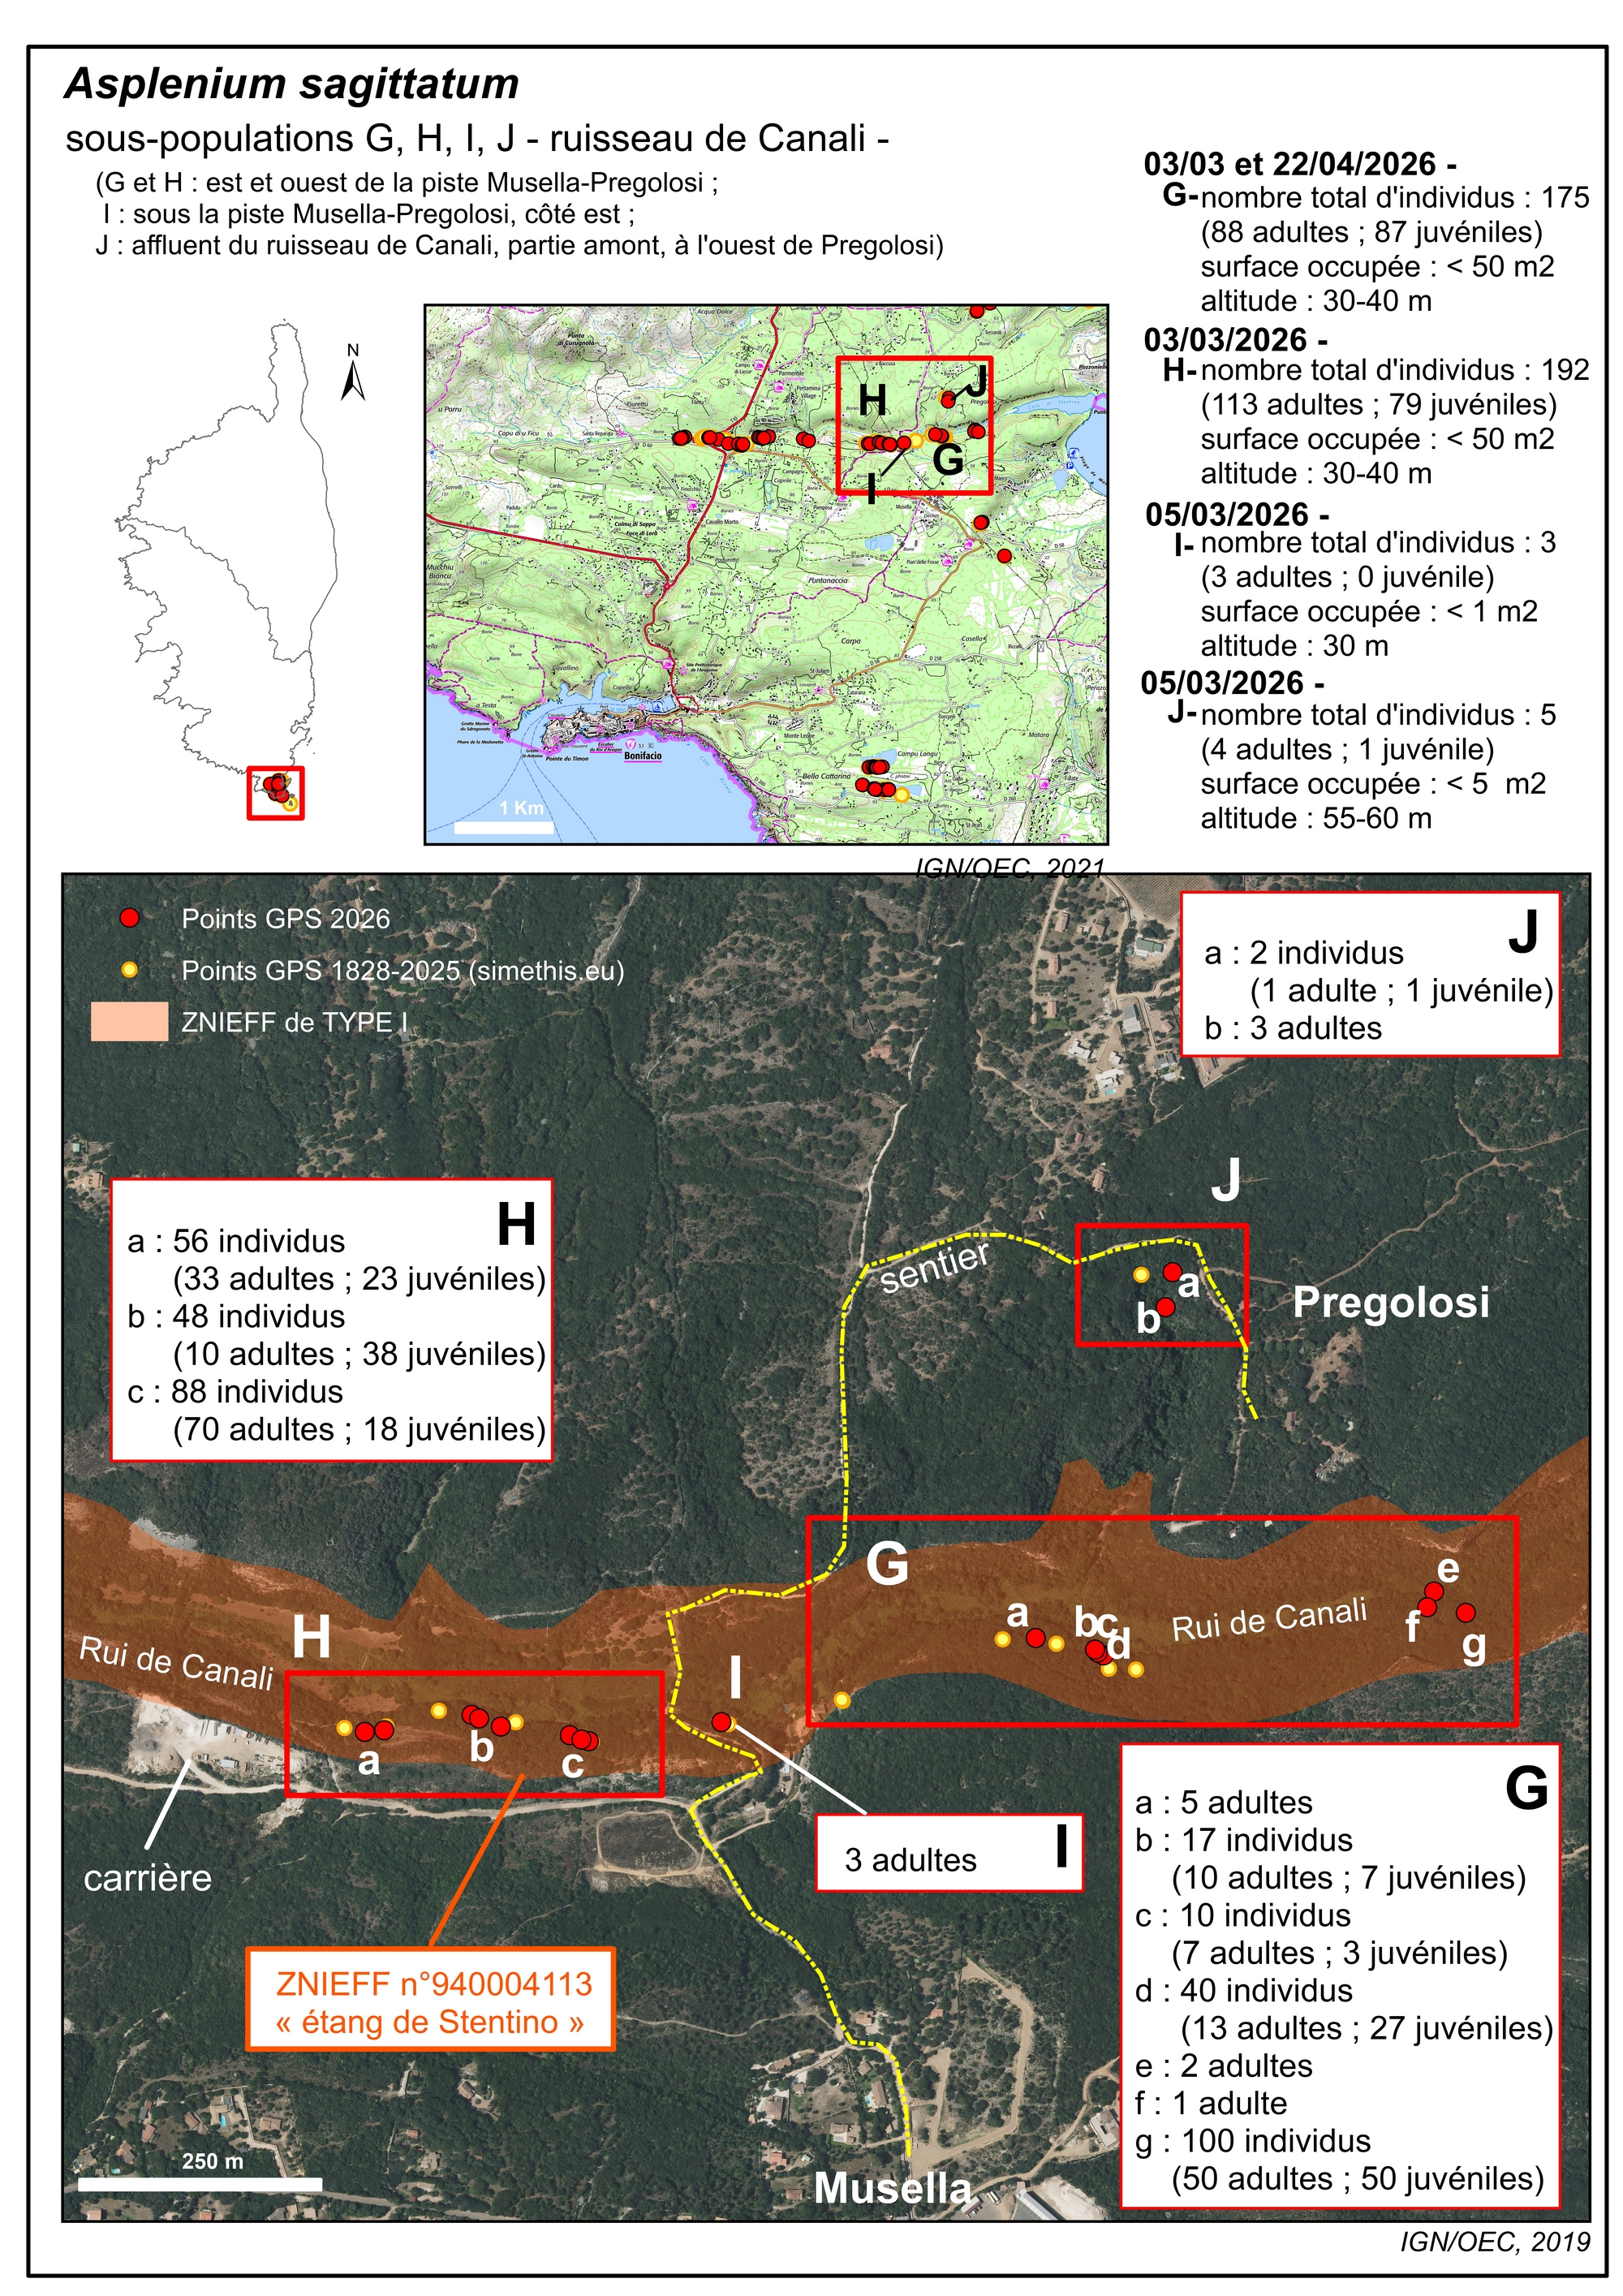
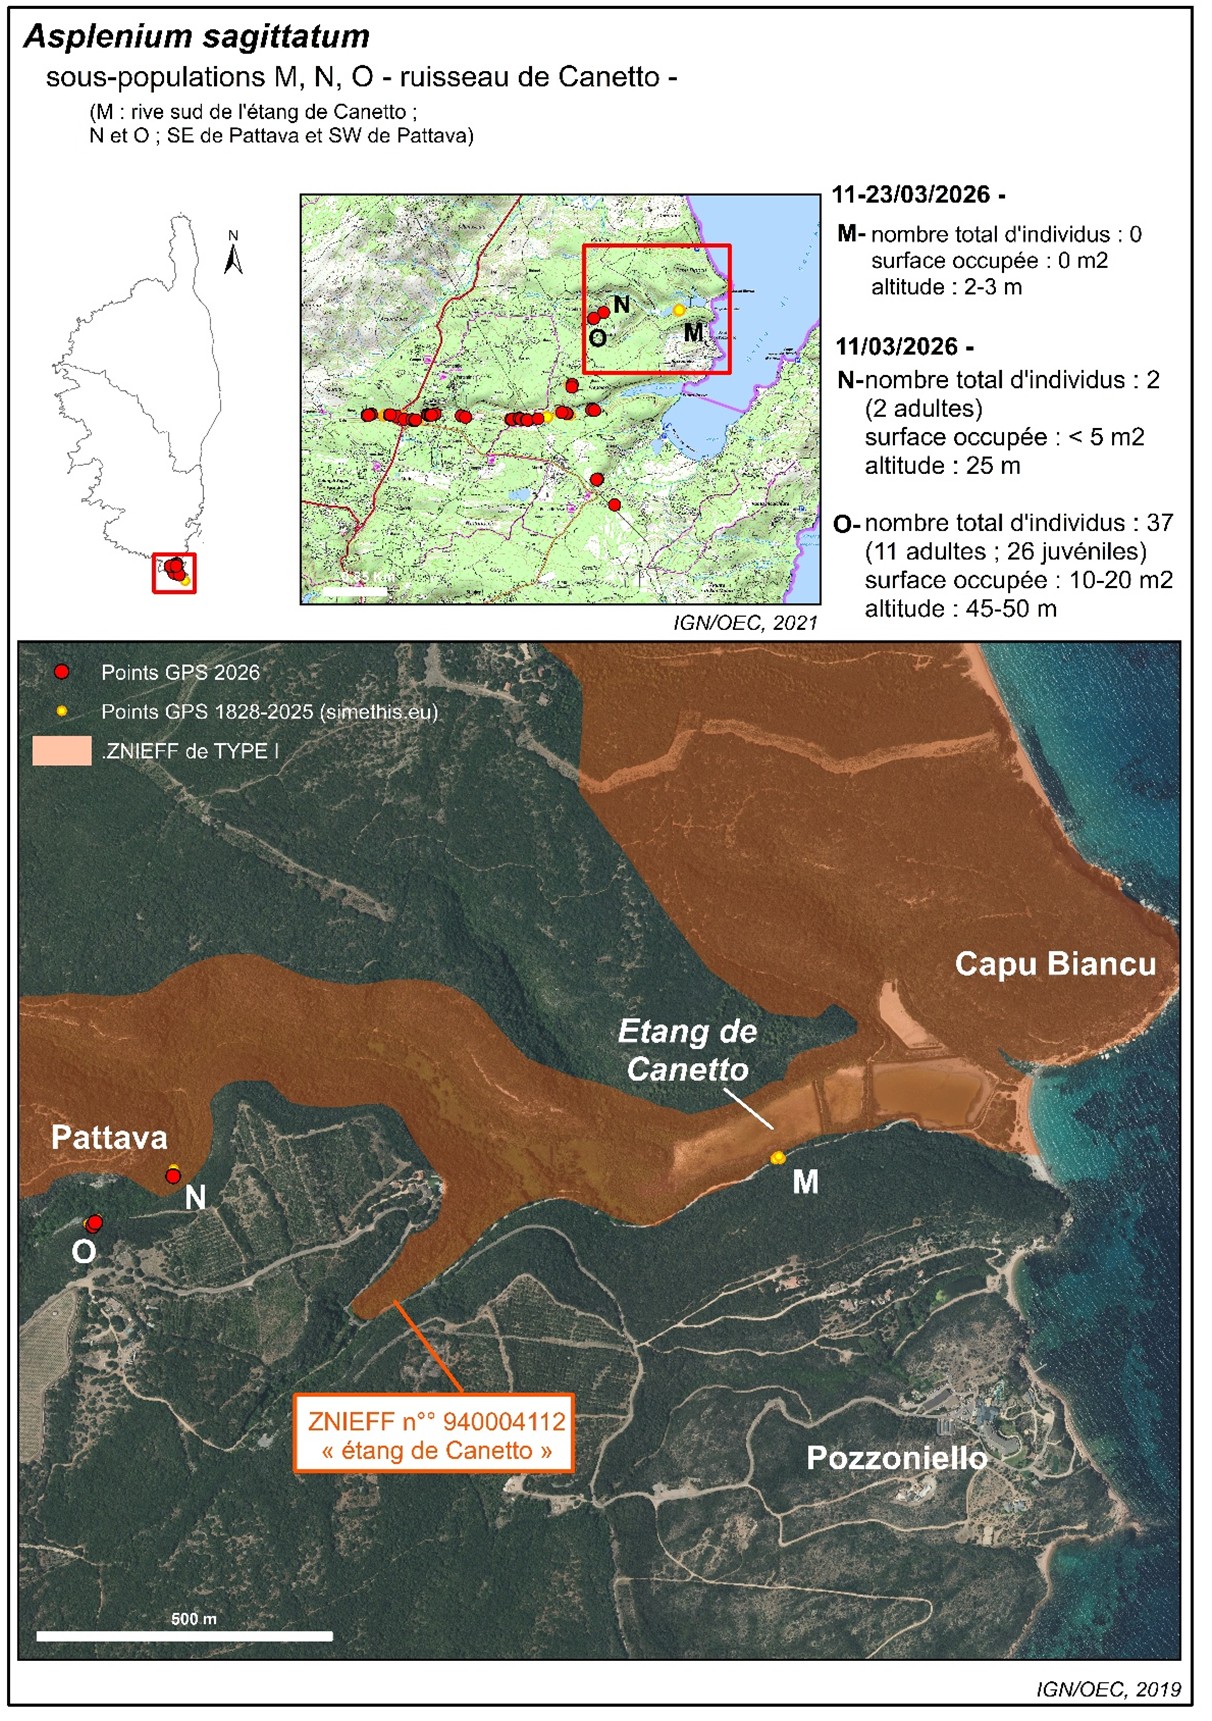
Plusieurs sous-populations sont classées en ZNIEFF de type I : Bella Cattarina et Campu Longu (planche 7), est et ouest du ruisseau de Canali (planche 9), rive sud de l’étang de Canetto et SE de Pattava (planche 11).
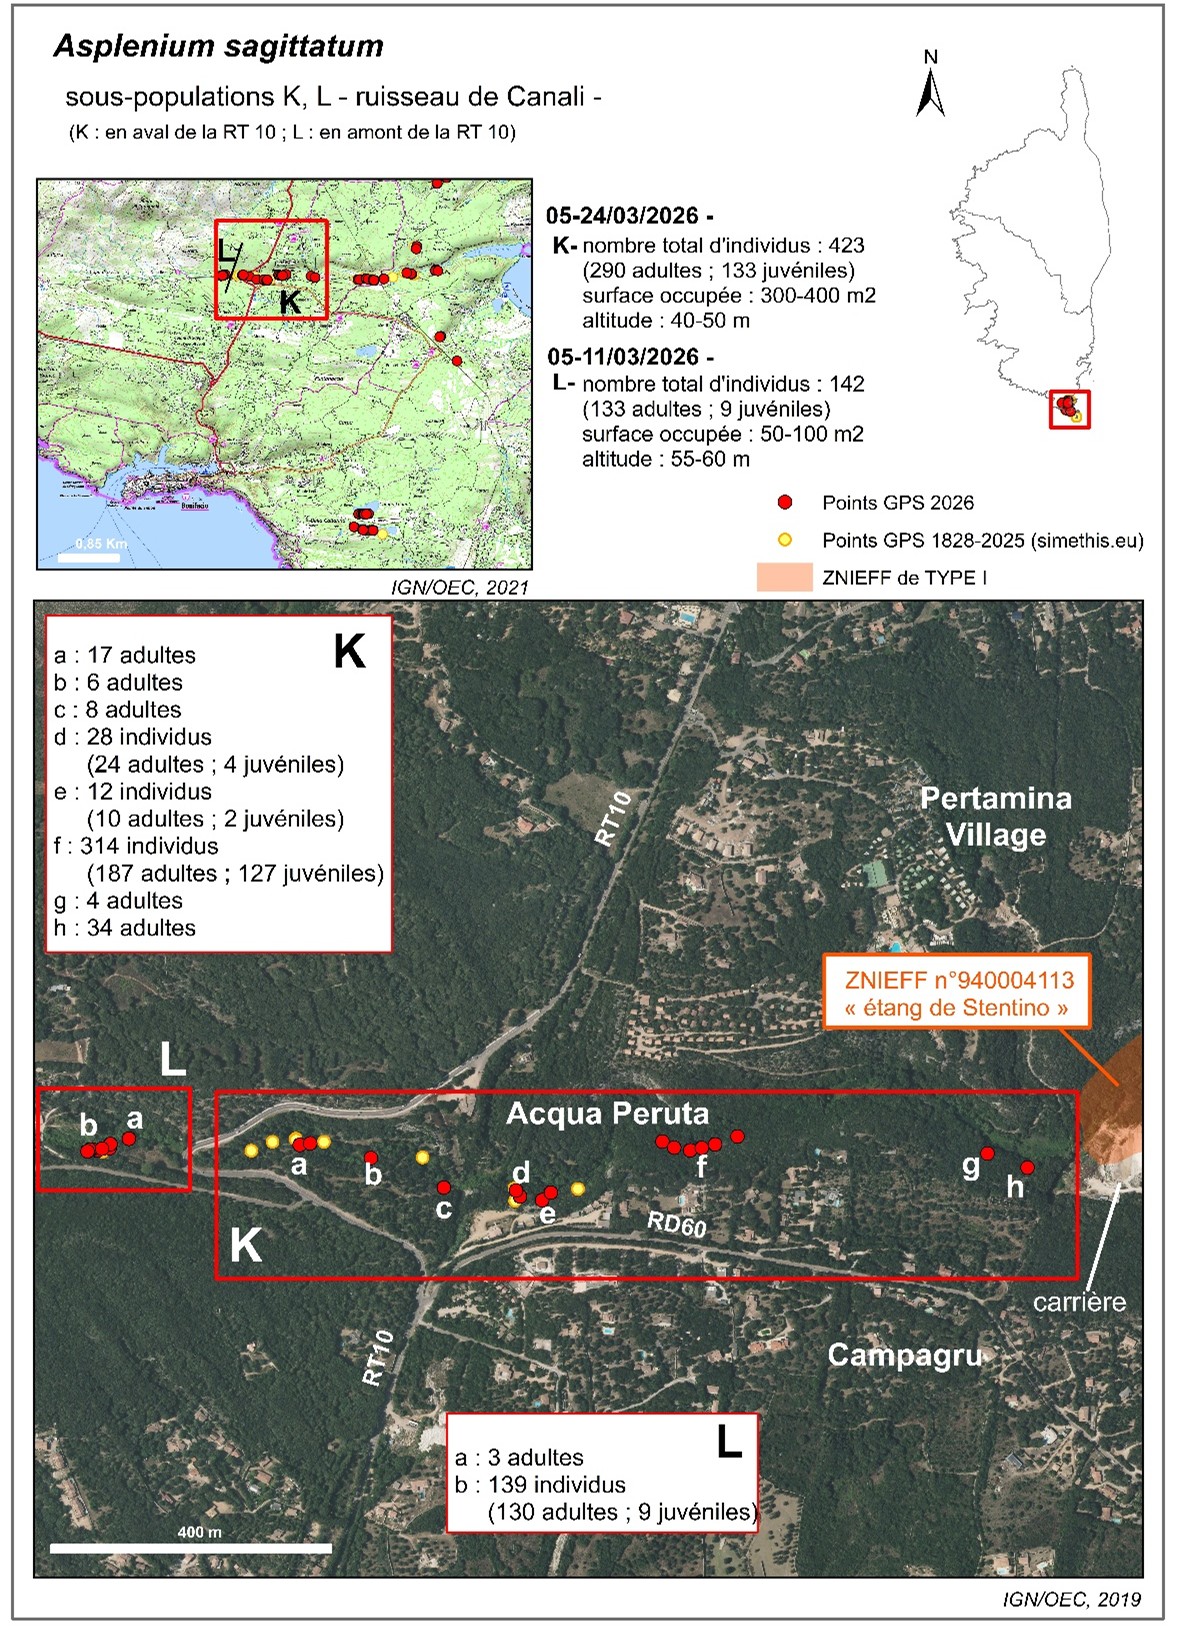
Sept des quinze sous-populations d’Asplenium sagittatum de Corse (soit près de 45 %) ne bénéficient d’aucun statut : Sperono (planche 6), Rocca Bianca et Sconzipio sur la route de Maora (planche 8), ouest de Pregolosi (planche 9), parties amont et aval du pont de Canali sur la RT 10 (planche 10) et SW de Pattava (planche 11).
Par ailleurs, aucune sous-population n’appartient au Conservatoire du littoral.
4.3. Étude des sites
Île Lavezzu (planche 5)
Localisation. Les îles Lavezzi constituent un archipel composé de 23 îles, îlots et récifs granitiques, situé à environ 10 km au sud-est de Bonifacio, en Corse-du-Sud. Elles représentent le point le plus méridional de la France métropolitaine. L’ensemble de l’archipel doit son nom à l’une de ses principales îles, l’île Lavezzu.
Historique des observations. Un individu unique d’Asplenium sagittatum a été signalé, en 1990, par Daniel Jeanmonod à l’extrémité sud-ouest de l’île Lavezzu, entre les cimetières de l’Archarino et de Furcone, dans une des fissures des gros blocs granitiques de la Cala Lazarina. Cette observation constitue la seule mention du taxon sur substrat granitique en Corse.
Situation actuelle. Depuis 1990, aucune nouvelle observation n’a été signalée, mais aucune recherche ciblée n’a été menée pour vérifier la présence du taxon.
Protections réglementaire ou foncière. Le site dispose de protections réglementaire et foncière fortes. L’île Lavezzu se situe dans la réserve naturelle des Bouches de Bonifacio. Elle est intégrée au réseau Natura 2000 (site FR9410021 Îles Lavezzi, Bouches de Bonifacio) et est entièrement classée en ZNIEFF de type I, n° 940004116 Îles Lavezzi.
Menaces. Malgré une fréquentation élevée durant la période estivale, l’espèce, si sa présence est confirmée, se trouve au sein d’un site protégé bénéficiant d’une gestion adaptée. De plus, son habitat demeure difficilement accessible, étant localisé parmi d’importants blocs granitiques. Ainsi, si l’espèce est toujours présente sur le site, aucune menace particulière ne semble actuellement peser sur sa conservation.
Petit Sperono (planche 6)
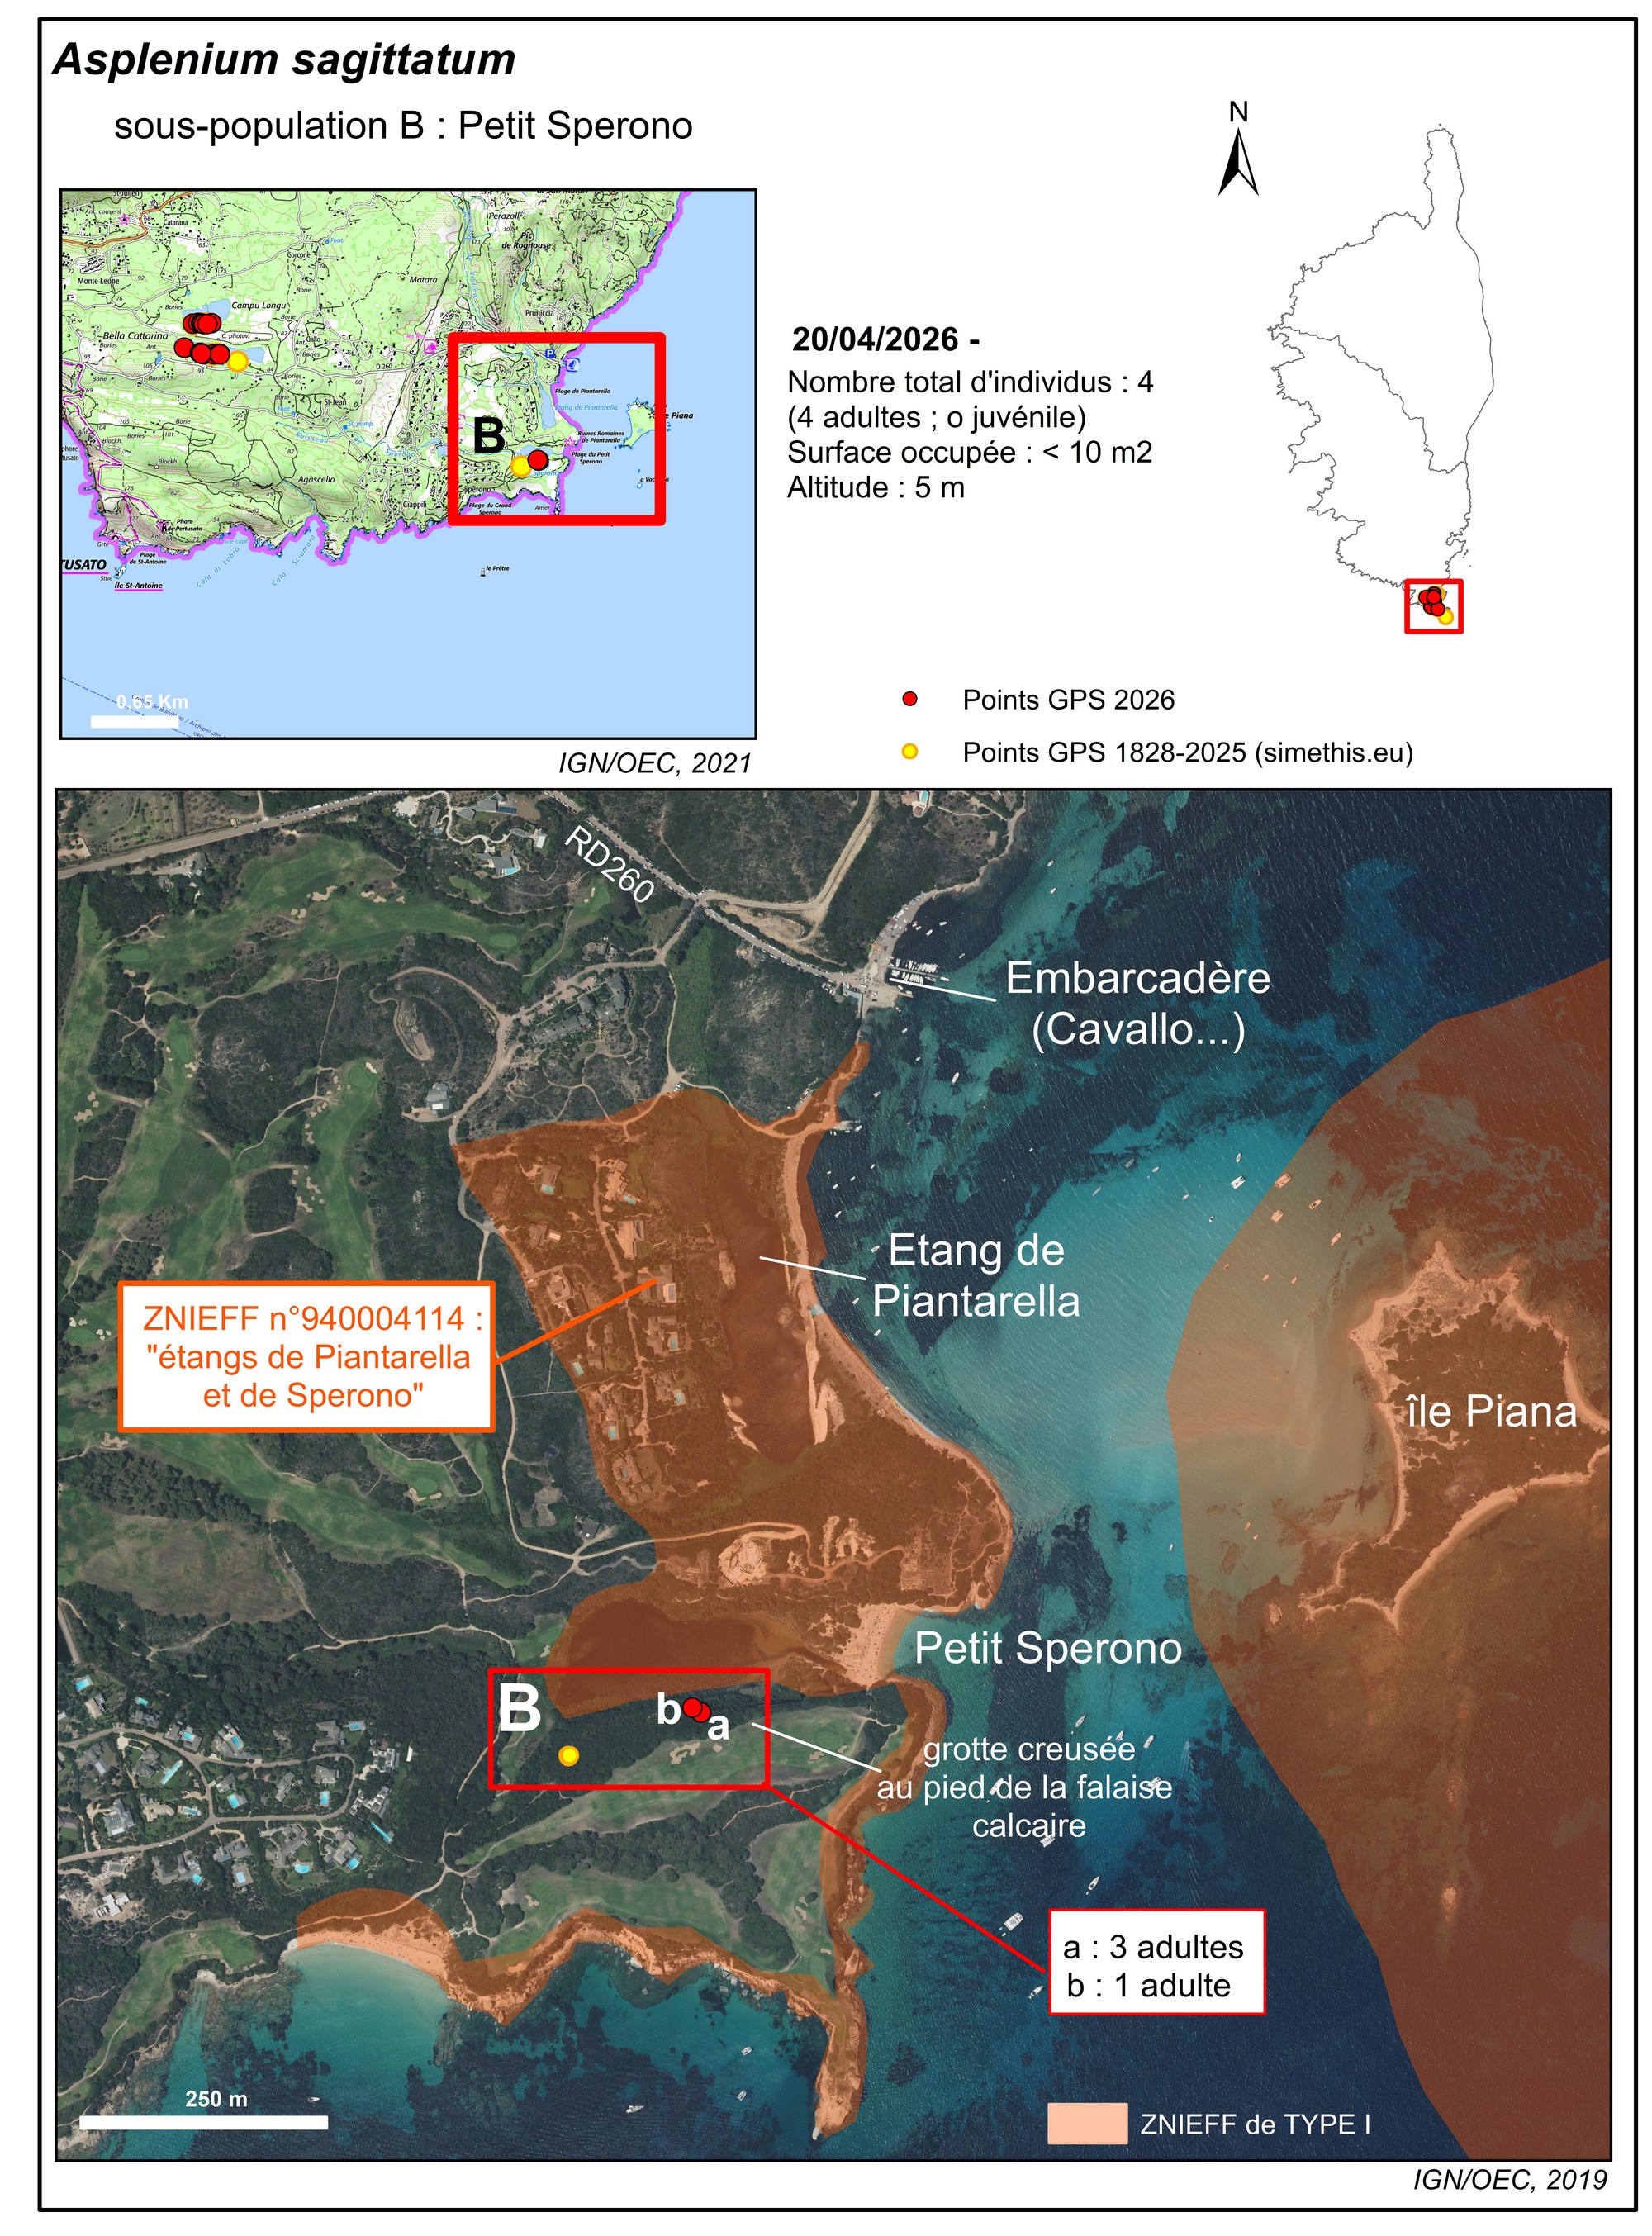
Localisation. Le site du Petit Sperono se trouve à l’extrémité sud-est de la Corse, face à l’île Cavallo. On y accède en longeant la côte vers le sud à partir de l’embarcadère de Piantarella, situé à l’extrémité de la RD 260. Il est constitué d’une dune à Juniperus turbinata sur laquelle se trouve notamment Armeria pungens (endémique cyrno-sarde-péninsule Ibérique). À l’extrémité sud de la zone sableuse se trouve un petit étang d’environ 320 m de long, d’orientation est-ouest, bordé côté sud par des falaises calcaires d’une vingtaine de mètres de hauteur. La végétation entre l’étang et la falaise est principalement constituée de Juniperus turbinata, d’Anthyllis barba-jovis et d’une strate haute et dense à Quercus ilex et Smilax aspera, ce qui rend difficile le cheminement sous la falaise.
Historique des observations. Asplenium sagitatum a été signalé à plusieurs reprises, entre 1977 et 1990, au sud de l’étang de Sperono (Dutartre, 1978 ; base de données Simethis). Deux secteurs d’observation sont donnés dans la littérature : « sur le bord de l’ancien chemin d’accès, 50 m en amont » (base de données Simethis : Muracciole, 1984) et « sur la rive sud de l’étang de Sperono, à la queue de l’étang, juste à la fin du chemin qui va de la plage au golf. Sous les broussailles ; salsepareilles, etc. Au pied des falaises calcaires » (base de données Simethis : Guyot, 1990). Recherché dans les années 2000-2010, il n’avait pas été revu en raison des difficultés d’accès.
Situation actuelle. Les prospections menées en 2026 ont permis d’observer une sous-population à environ 160 m en amont de l’embouchure de l’étang et à moins de 25 m à l’ouest d’une grotte plus ou moins en eau tout au long de l’année, creusée dans la partie inférieure de la falaise. Quatre individus adultes ont été recensés : trois individus situés entre 1,5 et 2 m au-dessus du pied de la falaise, implantés soit directement dans les fissures de la roche, soit dans de petits dépôts de sol humique accumulés dans les cavités ; et un individu isolé, observé une dizaine de mètres plus loin, à moins de 50 cm du sol, niché dans les anfractuosités de la paroi. Isabelle Guyot ne signalait qu’un individu en 1990, mais pas au même endroit. Il est donc possible que la station s’étende en amont de l’étang. Cette sous-population se développe sous un couvert végétal dense, dominé par Quercus ilex et Smilax aspera (recouvrement de 100 %), avec la présence plus ponctuelle de Viburnum tinus et Rubus ulmifolius, en exposition nord. La station se caractérise par une humidité relativement élevée et une faible influence maritime. La végétation de la paroi est globalement peu diversifiée. On note la présence d’Hedera helix, de Ruscus aculeatus et localement d’Adiantum capillus-veneris et de Bellium bellidioides. Mais, seule la strate bryophytique est plus ou moins en contact direct avec Asplenium sagittatum.
Protections réglementaire ou foncière. Le site ne dispose d’aucune protection réglementaire ou foncière. Il se trouve, à la limite, mais en dehors, de la ZNIEFF de type I, n° 940004114 Étangs de Piantarella et de Sperono.
Menaces. Aucune menace immédiate ne semble affecter la station. Les activités liées au golf se concentrent sur le plateau surplombant la falaise calcaire, et l’ancien chemin reliant le golf à la mer a aujourd’hui disparu et est entièrement colonisé par la végétation. Si cette situation perdure, la population devrait se maintenir dans le temps. Par ailleurs, la présence d’autres individus en amont reste plausible, comme le suggèrent d’anciens signalements. Toutefois, cette hypothèse n’a pas pu être vérifiée en raison de l’absence d’autorisation d’accès au site du golf.
Bella Cattalina et Campu Longu (planche 7)
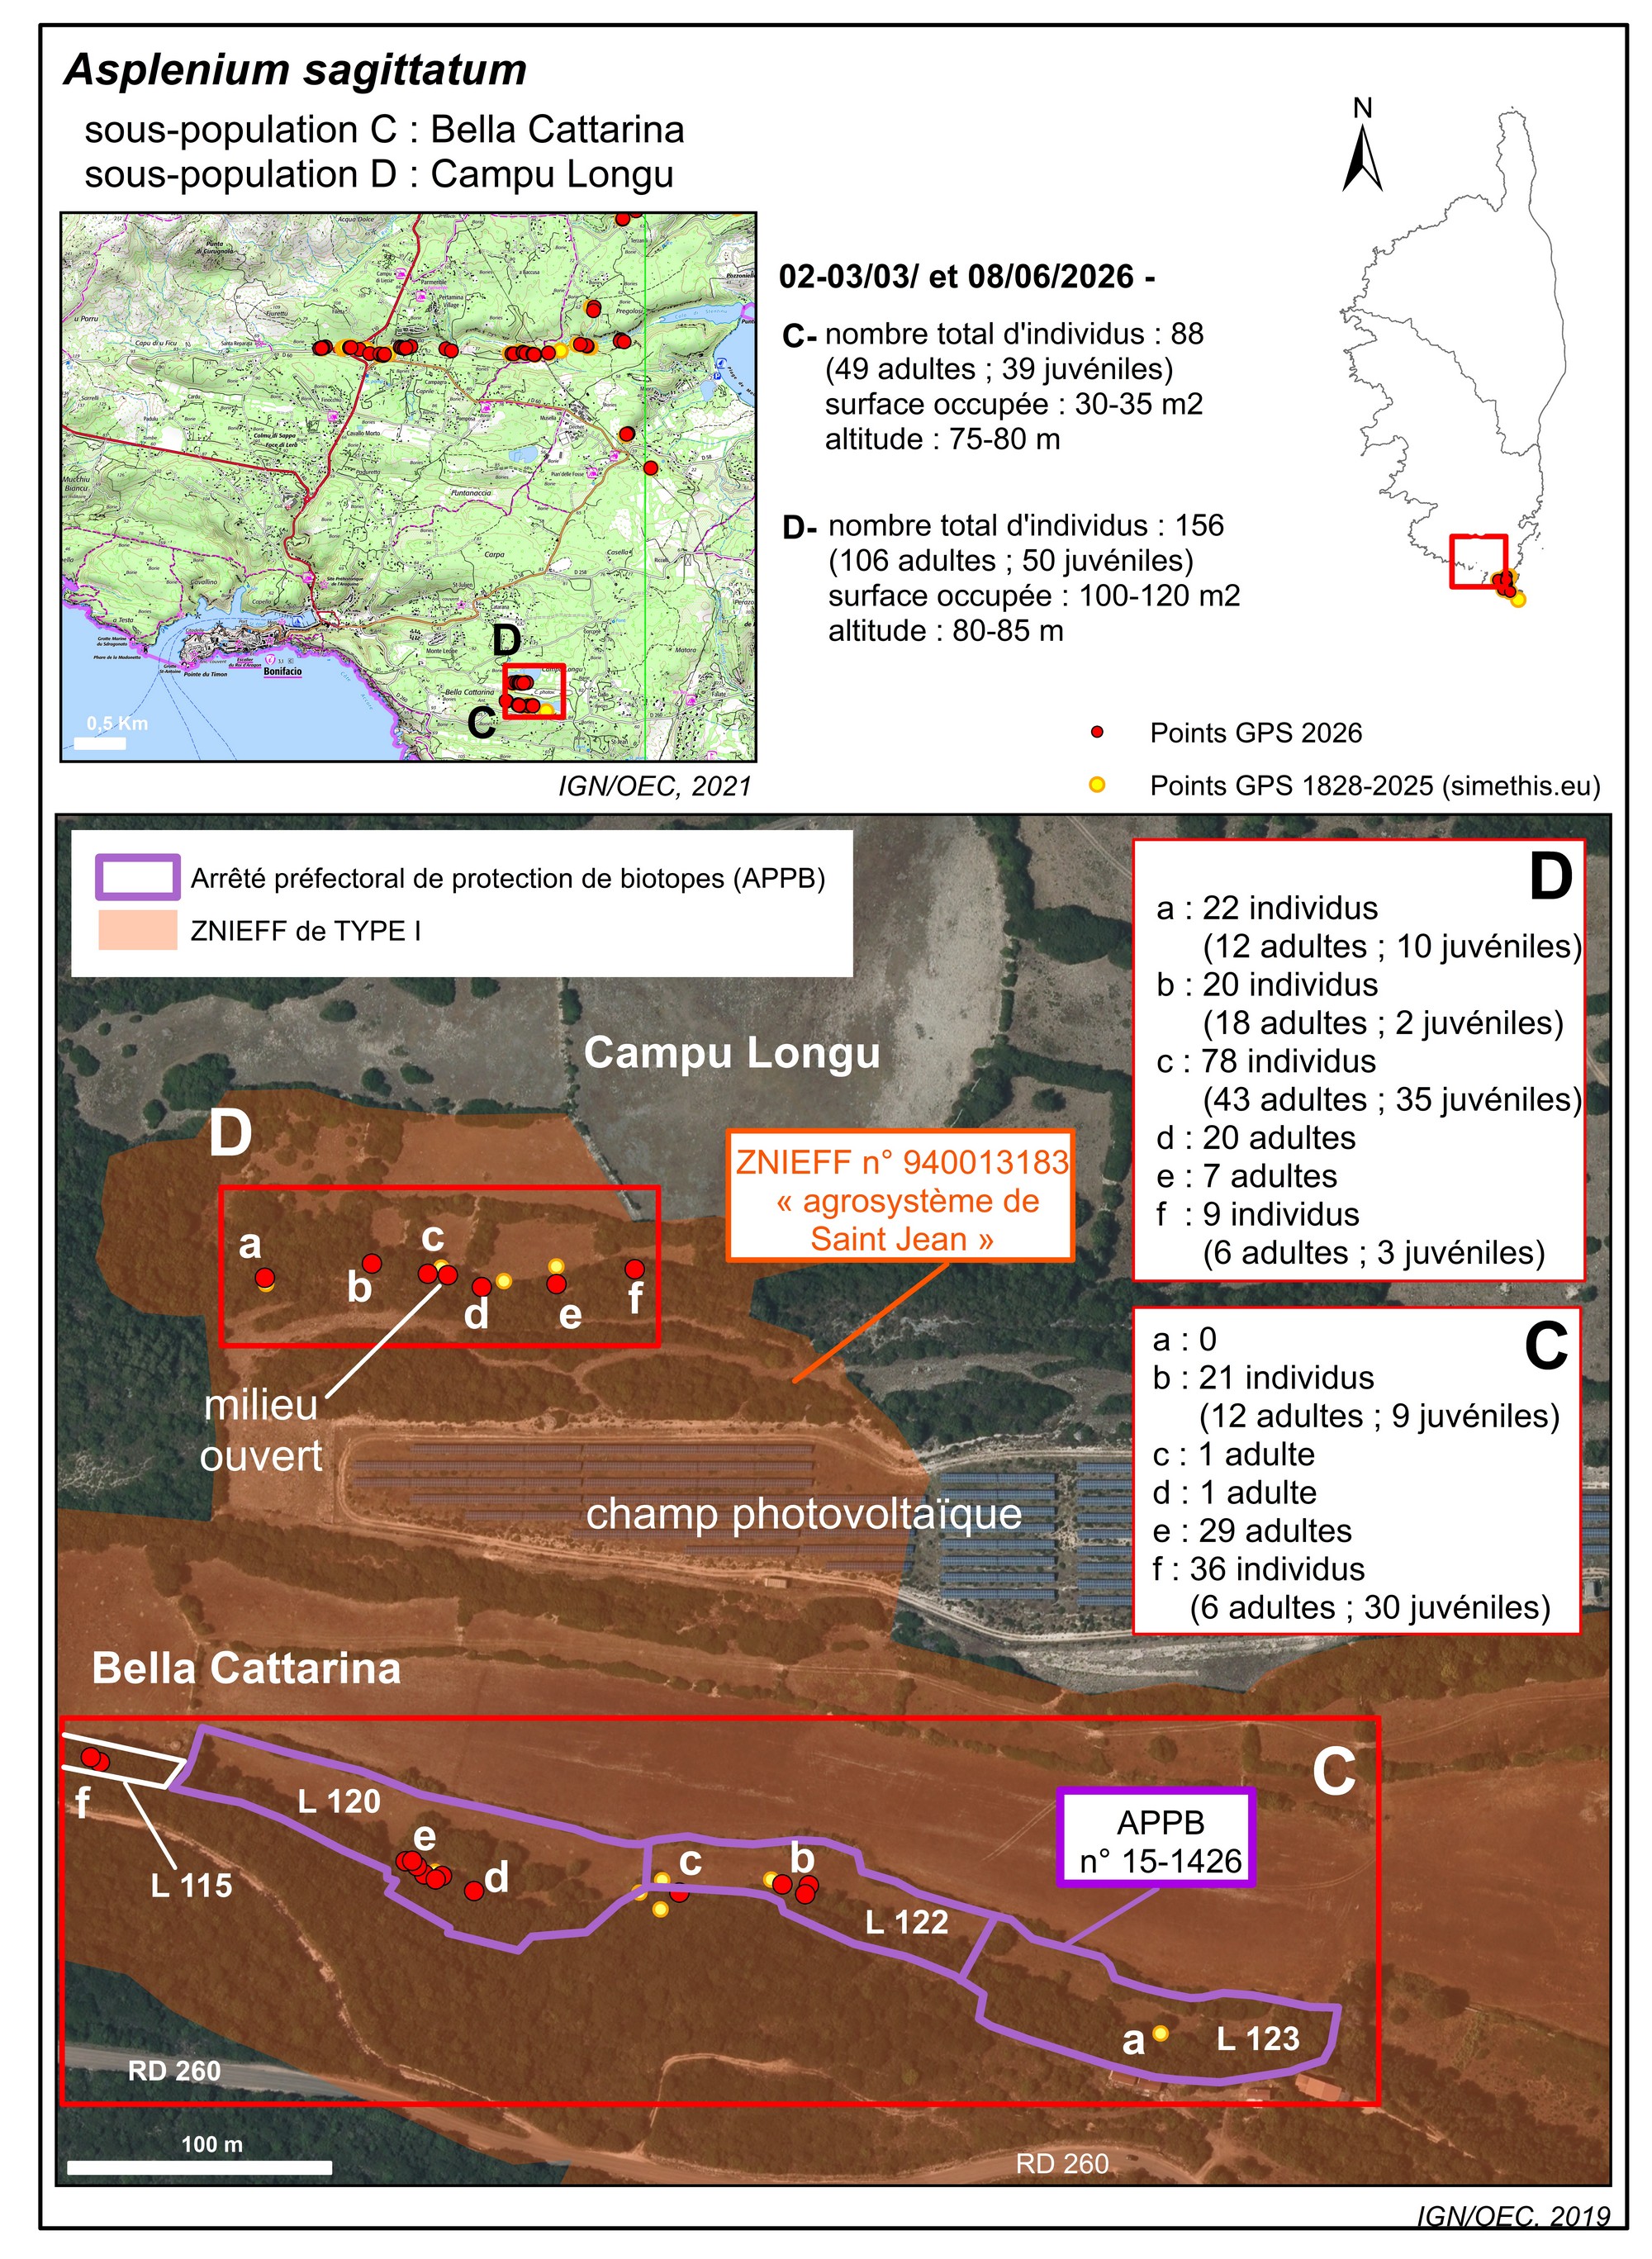
Localisation. Bella Cattarina et Campo Longo sont deux petites dépressions temporairement inondées, localisées à environ 2 km au sud-est de Bonifacio. Elles sont accessibles via la RD 260 reliant la ville à l’embarcadère de Piantarella. Un parc photovoltaïque a été implanté sur les reliefs séparant ces deux dépressions entre 2010 et 2011. Les sous-populations d’Asplenium sagittatum se développent sur les affleurements calcaires dominant ces zones humides, exposés au nord/nord-est pour Bella Cattarina et au nord pour Campo Longu, à des altitudes comprises entre 70 et 80 m. Le taxon est présent sur les deux sites de façon discontinue sur les secteurs notés de « a » à « f » sur la planche 7. Il occupe les fissures des encorbellements et des blocs calcaires, sous un taillis dense à Quercus ilex dominant. Le pourtour des dépressions humides a été défriché pour un usage agricole, entraînant un éloignement variable des sous-populations d’A. sagittatum par rapport aux zones démaquisées. Les localités les plus proches de ces zones reçoivent davantage de lumière, ce qui accentue la concurrence végétale, diminue l’humidité et limite le développement de la fougère.
Historique des observations. Le taxon a été observé pour la première fois le 16 décembre 2007 par Alain Delage sur les deux sites. Plusieurs sous-populations ont été localisées précisément par GPS :
- à Bella Cattarina : le long d’un linéaire d’environ 300 m orienté est-ouest (zones a, b, c, e), avec un effectif estimé à 232 individus, dont 3 adultes et 229 juvéniles ;
- à Campu Longu : sur un linéaire d’environ 110 m orienté N-NW/S-SE (zones a, c, d, e), avec un effectif estimé à 260 individus, dont 30 adultes et 230 juvéniles.
Situation actuelle. Les prospections menées en 2026 sur le site de Bella Cattarina ont permis d’observer le taxon sur un linéaire d’environ 280 m, avec un effectif estimé à 90 individus (dont 51 adultes et 39 juvéniles). Le périmètre de présence du taxon s’est réduit à l’extrémité sud-est de la station, puisque la zone notée « a » sur la planche 7, bien que recherchée, n’a pas été revue. En revanche, il s’est étendu vers le nord-ouest (zone notée « f » sur la planche 7).
Les prospections menées en 2026 sur le site de Campu Longu ont permis d’observer le taxon sur un linéaire d’environ 140 m, avec un effectif estimé à 156 individus (dont 106 adultes et 50 juvéniles). Le périmètre d’observation s’est étendu d’une quarantaine de mètres vers l’est (zone notée « f » sur la planche 7).
Les écarts constatés entre 2007 et 2026 concernant les effectifs et les périmètres de présence du taxon s’expliquent principalement par des biais de comptage (notamment pour les juvéniles au stade post-prothalle, difficiles à estimer) et par des différences d’intensité des prospections dans des milieux peu accessibles (végétation dense, présence importante de lianes épineuses).
Dans l’ensemble, les habitats ont peu évolué au cours des vingt dernières années. Toutefois, une certaine modification est perceptible dans la partie sud-est de Bella Cattarina, où les sous-populations a, b et c se trouvent désormais à proximité immédiate de zones démaquisées. Une clôture a également été installée à moins d’un mètre des sous-populations. Ces zones, plus éclairées et moins humides, favorisent le développement de la végétation concurrente, non pâturée du fait de l’absence d’accès pour le bétail. Néanmoins, ces secteurs présentaient déjà de faibles effectifs en 2007. Les zones historiquement les plus denses restent quant à elles très dynamiques.
Les différentes sous-populations se développent généralement sous un couvert végétal dense, dominé par Quercus ilex et Smilax aspera (recouvrement de 80-100 %), avec la présence plus ponctuelle de Pistacia lentiscus, Rhamnus alaternus, Viburnum tinus, ou de Ficus carica, en exposition nord ou nord/nord-est. L’humidité est relativement élevée. Une seule d’entre elles (sous-population Dc, planche 7), constituée d’individus chétifs, est en pleine lumière. La végétation au niveau des encorbellements et des parois ou blocs calcaires est globalement peu diversifiée. Les espèces les plus fréquemment rencontrées sont Asplenium onopteris, Hedera helix, Ruscus aculeatus, Dioscorea communis, Umbilicus rupestris, mais toujours avec des taux de recouvrement faibles. Seule Parietaria judaica peut avoir, ponctuellement, un pourcentage de recouvrement fort (sous-populations C a, b, d, planche 7 et annexe 1) dans les endroits plus anthropisés. La strate bryophytique est généralement bien développée (50-90 %) surtout dans les milieux très ombragés et humides.
Protections réglementaire ou foncière. Les localités d’Asplenium sagittatum de Bella Cattarina et de Campo Longo sont incluses dans le périmètre de la ZNIEFF de type I n° 940004114 Étangs de Piantarella et de Sperono. Par ailleurs, l’arrêté préfectoral n° 15-1426 du 15 décembre 2015 a instauré une zone de protection de biotope en faveur des « stations d’herbe à la mule (Asplenium sagittatum/Scolopendrium hemionitis) de Bella Cattarina ». Cet arrêté préfectoral de protection de biotope (APPB) a intégré l’ensemble des sous-populations connues à cette date, correspondant aux parcelles cadastrales n° 120, 122 et 123 de la section L. Cependant, les prospections réalisées en 2026 ont permis d’identifier de nouvelles sous-populations situées à l’extrémité nord-ouest du site, sur la parcelle 115, qui n’est pas incluse dans le périmètre d’un APPB.
Menaces. Bien qu’une grande partie du site de Bella Cattarina soit dans le périmètre d’un APPB et que l’agriculteur soit sensibilisé à la présence du taxon, il conviendra d’éviter, sur les deux sites, de nouveaux déboisements et d’éventuels aménagements qui pourraient impacter les différents noyaux de populations.
Rocca Bianca (planche 8)
Localisation. Le hameau de Rocca Bianca se trouve à l’est du lieu-dit Pian’delle Fosse. On y accède via une petite route qui part de la RD 58, peu avant le croisement avec la RD 60, et qui se termine en cul-de-sac. La station d’Asplenium sagittatum se trouve dans les fissures d’un gros bloc calcaire situé, en bord de route, à l’entrée du hameau.
Historique des observations. Le taxon a été observé pour la première fois le 30 mai 2001 par Gamisans « Secteur Bonifacio, au SE de Musella, chemin de « Roca Bianca », rochers de calcaire compact (anfractuosité tournée au NW, récemment débarrassée de sa couverture de lianes) » (Gamisans & Paradis, 2002). Alain Delage a recherché et retrouvé le taxon le 27 novembre 2007. Il a recensé à cette époque sept jeunes pieds.
Situation actuelle. Le site a été de nouveau prospecté en 2026. Seuls quatre individus adultes, de développement assez limité, y ont été observés. Trois d’entre eux, espacés de quelques dizaines de centimètres, sont localisés dans le tiers sud-ouest du bloc rocheux, au sein d’une fissure plus ou moins parallèle à la route et située à moins d’un mètre du sol. Le quatrième individu se trouve à l’extrémité sud-ouest du massif, à moins de 50 cm du sol. Le premier groupe occupe des anfractuosités de la roche, dépourvues de toute autre végétation. L’individu isolé est quant à lui installé dans un renfoncement de la roche, avec deux autres espèces : Parietaria judaica et Smilax aspera.
Protections réglementaire ou foncière. Le site ne dispose d’aucun statut juridique ou foncier.
Menaces. Selon les observations de Gamisans, le site aurait été débroussaillé en 2001. Toutefois, son exposition au nord-ouest permet à Asplenium sagittatum de ne pas être directement exposé au rayonnement solaire, favorisant ainsi son maintien malgré une humidité relativement faible et l’absence de couverture arborée. Par ailleurs, bien que les accotements routiers fassent probablement l’objet d’un entretien régulier, celui-ci ne semble pas avoir d’impact notable sur le taxon.
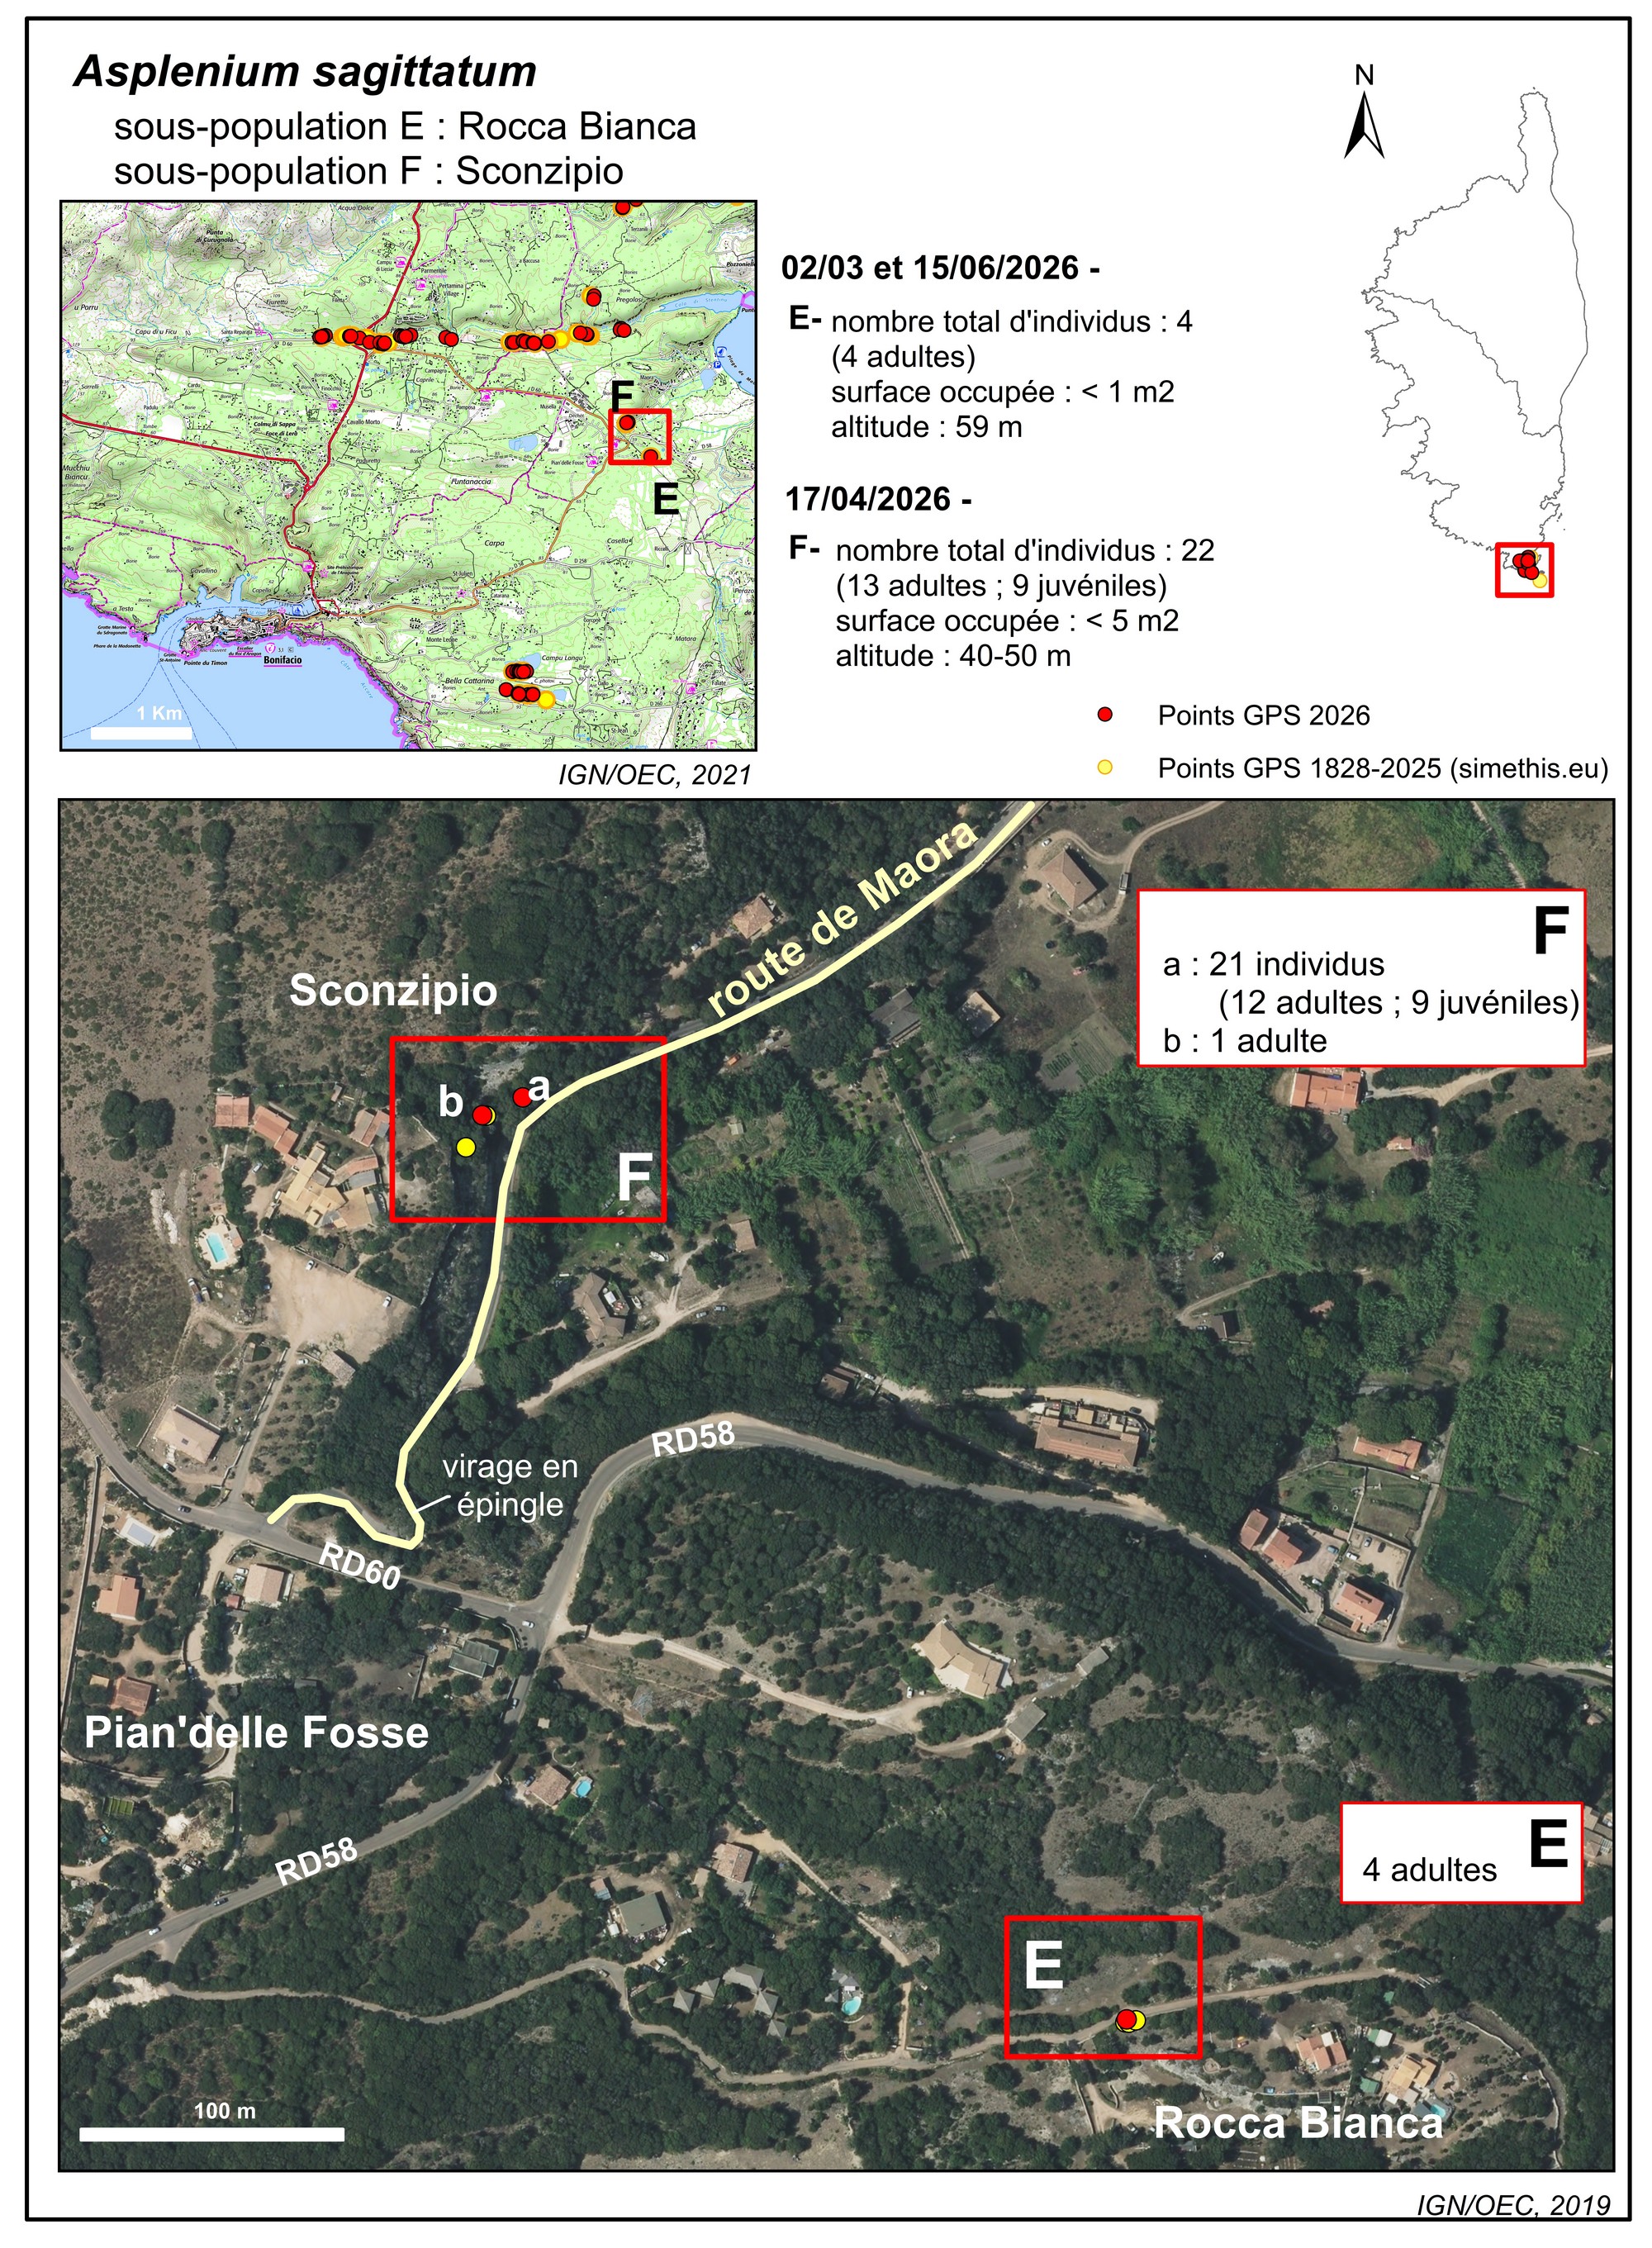
Sconzipio, route de Maora (planche 8)
Localisation. Cette sous-population est située à environ 4 km de Bonifacio et à un peu plus d’un kilomètre de la plage de Maora (golfu di Sant’Amanza). Elle se trouve entre la route de Maora et le lieu-dit Sconzipio, à une centaine de mètres du grand virage en épingle qui suit immédiatement le croisement avec la RD 60. Elle est dominée par une haute paroi calcaire.
Historique des observations. Le premier signalement du taxon sur le site a été fait par Soleirol, en 1830 : « Sant’Amanza » (Briquet, 1910). Il est très peu précis et ne permet pas de localiser la station. En 1991, Georges Bosc fera un nouveau signalement « au bord de la route vers Sant’Amanza », sans plus de précision (simethis.eu).
Situation actuelle. Les prospections menées en 2026 ont permis de localiser le taxon dans deux localités distantes d’environ 20 m. Il se développe dans les anfractuosités des encorbellements et des parois calcaires, à une altitude d’environ 60 m, en exposition sud-est. Il évolue sous un couvert végétal relativement dense (recouvrement de 80 %), dominé par Quercus ilex et Smilax aspera, avec la présence plus ponctuelle de Ruscus aculeatus, Hedera helix et Ficus carica. L’humidité y est modérément élevée. La végétation des encorbellements, parois ou blocs calcaires demeure peu diversifiée : aux côtés d’Asplenium sagittatum, l’espèce la plus fréquemment observée est Polypodium cambricum. En revanche, la strate bryophytique est très développée (80 à 90 %). L’effectif recensé reste faible, avec un total de 22 individus. Toutefois, la structure de la population apparaît équilibrée (13 adultes et 9 juvéniles), indiquant un renouvellement effectif.
Protections réglementaire ou foncière. Le site ne dispose d’aucun statut juridique ou foncier.
Menaces. Le taxon est cantonné à un secteur très restreint, situé entre une route et une importante barre rocheuse. En dehors d’éventuelles évolutions liées aux dérèglements climatiques, il ne semble pas faire l’objet de menaces immédiates. En revanche, les zones environnantes situées à l’est et au sud-ouest ont fait l’objet d’une urbanisation. Les aménagements des parties sommitales du relief, les travaux de terrassement, les dépôts de gravats sur les pentes, ainsi que les opérations de déboisement ont entraîné une modification des habitats et probablement la disparition d’une partie de cette sous-population.
Ruisseau de Canali (planches 9 et 10)
Localisation. Le ruisseau de Canali est un petit cours d’eau orienté ouest-est, d’environ 6 km de long, situé au nord-est de Bonifacio. Il prend sa source aux alentours de 250 m d’altitude, entre le monte Corbu et la punta Curugnola, avant de se jeter dans le golfe de Sant’Amanza, au niveau de la Cala di Stentinu. Son réseau hydrographique est peu développé. Il a peu d’affluents et il draine un bassin versant de superficie limitée. Dans sa partie amont, sur près de 2 km, il traverse des formations granitiques, puis, sur le reste de son linéaire, des formations calcaires et des vallons plus ou moins encaissés. Il présente un régime méditerranéen à écoulement irrégulier, avec des débits étroitement dépendants des précipitations saisonnières. Dans toute sa partie aval (sur environ 4 km) et en l’absence d’interventions anthropiques récentes, les vallons qui le surplombent sont occupés par des chênaies denses ; l’humidité y est souvent élevée et le substrat localement saturé en eau.
Historique des observations. Vivant (1968) observe le taxon en 1966, en aval de la RT 10, sur les « pentes calcaires érodées en petits gradins, dominant les alluvions de la rive droite du Canalli, en-dessous de la route récente D 60 » (sous-population K, planche 10) où il sera revu à de nombreuses reprises (base de données Simethis : groupe des botanistes du CBN Porquerolles, 1970 ; Boudrie, 1983 ; Bosc, 1991 ; Guyot, 1991 ; Fridlender, 1993) et dans la « vallée de Canalli, près de l’étang de Stentino, au N.E. de Bonifacio » (sous-population G, planche 10). Fridlender indique également, en 1993, une station dans le vallon de Canali, mais plus en amont (sous-population H, planche 10). Enfin, Alain Delage trouve, en 2007, deux nouvelles localités, dans la partie aval du ruisseau, au niveau ou à proximité d’un petit affluent (sous-populations I et J, planche 10) et, en 2007, une localité en amont de la RT 10 (sous-population L, planche 10).
Situation actuelle. Les prospections réalisées en 2026 le long du cours d’eau, depuis la chapelle Santa Reparata (en limite de la zone calcaire, en amont de la RT 10) jusqu’à environ 250 m de son embouchure (le reste du linéaire étant difficilement accessible) indiquent que le taxon est présent de manière quasi continue sur l’ensemble de ce tronçon, soit sur plus de 3 km. L’intensification des recherches en 2026 a d’ailleurs permis d’affiner la cartographie de distribution du taxon, en particulier à proximité de l’embouchure du ruisseau de Canali (sous-population G) ainsi que dans toute la partie aval de la sous-population K, vers Acqua Peruta. L’ouverture partielle du milieu entre la RT 10 et l’embranchement de la RD 60 a également facilité la découverte ou la redécouverte d’anciennes localités.
Toutefois, le taxon est absent des secteurs fortement anthropisés. C’est notamment le cas sur la rive sud du ruisseau, sur plus de 500 m à l’est d’Acqua Peruta (entre les sous-populations H et K). L’exploitation d’une carrière, la création d’une piste ainsi que l’accumulation de gravats et de matériaux sur les pentes ont profondément modifié les habitats, ce qui pourrait expliquer cette absence. Une situation similaire est observée au lieu-dit Acqua Peruta, côté sud, entre la RD 60 et le ruisseau : l’urbanisation du plateau côté route, associée à des terrassements et à des dépôts de matériaux sur les versants, semble avoir entraîné les mêmes conséquences.
Le long du ruisseau de Canali, Asplenium sagittatum est présent dans différents types de milieux : encorbellements, blocs calcaires de tailles variées ou encore murets, que ce soit en l’absence de sol ou sur des sols parfois relativement profonds. Ainsi, les habitats rencontrés sur ces 3 km présentent une certaine hétérogénéité. Hormis les secteurs précédemment mentionnés, la plupart ont peu évolué au cours des vingt dernières années.
Le taxon se développe généralement sous un couvert végétal dense (recouvrement de 80 à 100 %), dominé par Quercus ilex et Smilax aspera, avec la présence plus ponctuelle de Pistacia lentiscus, Viburnum tinus et de Ficus carica, en exposition nord. Les conditions y sont souvent humides, avec des sols parfois gorgés d’eau.
La végétation associée aux encorbellements, parois et blocs calcaires reste globalement peu diversifiée. Les espèces les plus fréquemment observées sont Asplenium onopteris, Hedera helix, Ruscus aculeatus et Dioscorea communis, généralement avec de faibles taux de recouvrement. À l’inverse, Parietaria judaica peut localement présenter des recouvrements élevés dans les zones plus anthropisées, notamment en amont et en aval de la RT 10. La strate bryophytique est, quant à elle, souvent bien développée (50 à 90 %), en particulier dans les milieux les plus ombragés et humides.
Les résultats détaillés des comptages par localité figurent sur les planches 9 et 10 et à l’annexe 2. Au total, 957 individus ont été recensés le long du ruisseau de Canali, dont 648 adultes et 309 juvéniles. Il s’agit de la plus importante sous-population d’Asplenium sagittatum connue en Corse.
Protections réglementaire ou foncière. Quelques localités à Asplenium sagittatum du ruisseau de Canali sont incluses dans le périmètre de la ZNIEFF de type I n° 940004113 Étang de Stentino (sous-populations G, H, I). Les autres localités ne bénéficient d’aucun statut.
Menaces. L’urbanisation, les gravats et autres matériaux déversés sur les pentes et ponctuellement les déboisements constituent des menaces actives sur toute une partie du cours d’eau.
Ruisseau de Canetto (planche 11)
Localisation. Le ruisseau de Canetto est un petit cours d’eau, d’orientation ouest-est, de moins de deux kilomètres de long, situé au nord-est de Bonifacio. Il s’inscrit dans le paysage typique du plateau de Bonifacio, marqué par des falaises calcaires, des vallons encaissés et une végétation méditerranéenne xérophile. Ce ruisseau prend sa source à moins de 100 m d’altitude. Il ne présente qu’un seul affluent, qui le rejoint en rive droite, à environ 800 m de son embouchure, et présente un régime hydrologique temporaire à intermittent, avec des écoulements principalement concentrés en période hivernale et printanière. En été, son lit est souvent à sec sur une grande partie de son linéaire. Son bassin versant est relativement restreint. Les versants du ruisseau présentent une mosaïque d’habitats comprenant des blocs rocheux, des encorbellements, des anfractuosités, favorables à la présence d’Asplenium sagittatum.
Historique des observations. En 1988, Ph. Jauzein découvre le taxon dans le « vallon du Canettu, rocher sous taillis dominant la berge sud de l’étang » (Jauzein, 1989) (sous-population M, planche 11). Il sera revu au même endroit (7 individus) par Fridlender en 1993, qui en fera une description très détaillée accompagnée d’un schéma. Par ailleurs, Alain Delage en 2013 observe deux autres localités au SE (3 individus) et au SW de Pattava (8 individus), en rive droite de l’affluent du ruisseau de Canetto (sous-population N et O, planche 11), mais ne retrouve pas la station du sud de l’étang de Canetto.
Situation actuelle. En 2026, des prospections ont été menées sur la rive droite de l’étang de Canetto afin de retrouver Asplenium sagittatum au niveau de la sous-population M. Malgré une végétation très dense, dominée par la salsepareille, l’ensemble de la berge a été exploré à deux reprises sans succès. Toutefois, grâce à la description précise et au croquis réalisés par Friedlender, l’emplacement exact de l’observation du taxon en 1993 a pu être localisé, bien que celui-ci n’y soit plus présent aujourd’hui.
Les autres sous-populations signalées en 2013 ont, elles, été retrouvées (sous-populations N et O). Ces deux localités se situent dans des milieux frais et ombragés, caractérisés par des formations arbustives et arborées denses dominées par Quercus ilex, Pistacia lentiscus, Viburnum tinus et Smilax aspera. La strate herbacée est peu développée contrairement à la strate bryophytique dont le recouvrement est compris entre 70 et 90 %. La sous-population N, localisée en fond de vallon, se développe sur de petits encorbellements en bordure de sentier et abrite deux individus adultes. La sous-population O, plus étendue, comprend 37 individus, dont 11 adultes et 26 juvéniles. Elle occupe les pentes du vallon, où le taxon se développe sur de petits encorbellements calcaires, sur des sols parfois relativement profonds.
Protections réglementaire ou foncière. Deux des trois sous-populations sont incluses dans la ZNIEFF de type I, n° 940004112 Étang de Canetto (stations M et N).
Menaces. Le ruisseau de Canetto, à l’instar de celui de Canali, est susceptible de subir différentes pressions d’origine anthropique, telles que l’urbanisation diffuse, l’ouverture de pistes ou encore les dépôts de gravats sur les versants. Ces perturbations sont susceptibles de dégrader la qualité des habitats et de compromettre la pérennité du taxon. Ainsi, la sous-population située sur la rive sud de l’étang de Canetto a vraisemblablement disparu à la suite de l’aménagement de la piste menant à la plage. Ce chantier a impliqué des terrassements et des déboisements, entraînant des apports de matériaux et de bois morts sur les pentes environnantes. Par ailleurs, des dépôts de matériaux (gravats et divers déchets) ont été observés sur les pentes de la sous-population O.
4.4. Synthèse des données (annexe 2)
Depuis sa découverte en Corse dans la première moitié du xixe siècle, le taxon a été signalé dans quinze localités. À l’exception de la sous-population micro-insulaire de l’île Lavezzu, toutes ont été recherchées. Treize ont été retrouvées et pour trois d’entre elles (sous-populations C, G, K, planche 2) le périmètre de présence du taxon a pu être étendu. En revanche, la sous-population M (planche 5) située sur la rive sud de l’étang de Canetto a été revue, mais sans le taxon, ce qui permet de conclure à sa disparition. Le nombre d’individus par sous-population varie de quelques individus à quelques centaines d’individus, mais la plupart semblent stables. La présence de juvéniles atteste du renouvellement des populations. Toutefois, divers aménagements (urbanisation, terrassements, création de pistes, déboisements, etc.) ont localement entraîné une dégradation des habitats, provoquant dans certains cas la disparition de l’espèce, comme sur la rive sud de l’étang de Canetto.
L’annexe 2 synthétise les données pour chacune des sous-populations. La population totale de l’île est estimée à minima à 1 270 individus, occupant une surface de moins de 1 000 m2.
5. Conclusions et perspectives (annexe 3)
Dans la base de données Simethis, le taxon est signalé dans cinq mailles de 5 km x 5 km, entre les années 1823 et 2025. Entre 2000 et 2021, période retenue dans le cadre du travail sur la stratégie de conservation « flore » pour la Corse, du CBNC, on ne dénombre plus que trois mailles de présence, ce qui a contribué au classement du taxon dans la catégorie d’enjeu de conservation « fort ». Les deux mailles manquantes correspondent à deux sous-populations excentrées, celle de l’île Lavezzu et celle de la rive sud de l’étang de Canetto. La première ne comportait qu’un seul individu sur granite et la seconde, bien que recherchée, n’a pas été retrouvée, en 2013 et en 2026. Dans le cadre de cette étude, l’aire de présence du taxon dans plusieurs de ses sous-populations (C, G, H) a été élargie à la marge. Malgré cela, le nombre de mailles de 5 x 5 km² est toujours de trois en 2026, puisque la sous-population de l’île Lavezzu n’a pas été recherchée et que la sous-population de la rive sud de l’étang de Canetto semble avoir disparu. Ainsi, selon la méthodologie retenue, le taxon reste évalué en enjeu de conservation « fort ».
Asplenium sagittatum est une fougère méditerranéenne protégée à l’échelle nationale, non endémique de Corse mais rare et localisée sur l’île, où elle se répartit en un nombre limité de sous-populations. Certaines ont été historiquement soumises à des pressions anthropiques importantes (urbanisation, ouverture de pistes, déboisement, dépôts de matériaux), ayant entraîné des réductions d’effectifs, une fragmentation de leur aire de distribution et des altérations de leur habitat, voire des disparitions locales. La situation actuelle semble toutefois relativement stabilisée.
Espèce hautement spécialisée, A. sagittatum est inféodée aux habitats rupestres calcaires et dépendante de conditions hydriques spécifiques. Si elle ne présente pas de menace globale à large échelle, la vulnérabilité et la rareté de ses habitats justifient une attention particulière, notamment dans un contexte de pressions anthropiques persistantes et de changements climatiques.
Le taxon a été signalé sur l’île de Lavezzu et un hybride avec A. ceterach a été observé sur l’île de Cavallo. Ces occurrences ponctuelles mériteraient d’être confirmées et complétées par des prospections ciblées sur les îlots du sud-est de la Corse, ainsi que sur certains secteurs continentaux (notamment Sperono).
Près de la moitié des sous-populations corses ne bénéficie actuellement d’aucune protection réglementaire. Le renforcement des mesures de conservation apparaît nécessaire, incluant l’extension de dispositifs existants (notamment l’APPB de Bella Cattarina) et la mise en place de protections sur les sites non couverts, afin de limiter les perturbations (déboisements, dépôts, terrassements).
Enfin, un suivi à long terme des différentes sous-populations est recommandé afin d’évaluer leur dynamique et leur sensibilité aux évolutions environnementales, en particulier climatiques.
Note 1. « Bilan stationnel (site inventory) d’un taxon, des taxons ou d’une communauté végétale : méthode d’inventaires spécifiques de terrain pour toutes les stations avérées et historiques ou pour un nombre représentatif de stations (si N > 20), avec relevé des informations précises sur l’état des populations ou des communautés végétales (Le Berre et al., 2019). Cet état des lieux sert également à évaluer l’état de conservation d’une espèce ou d’une communauté végétale » (Reseda-Flore, 2024).
Note 2. Les coefficients de recouvrement (CR) ont été légèrement modifiés pour les coefficients 2a et 2b, c’est-à-dire en donnant les valeurs suivantes (quantités moyennes) aux coefficients d’abondance-dominance : 5 = 87,5 ; 4 = 62,5 ; 3 = 37,5 ; 2b = 18,5 ; 2a = 8,5 ; 1 = 2,5 ; + = 0,2 ; r = 0,1. Ainsi, dans chaque relevé, la quantité moyenne des coefficients d’abondance-dominance a été additionnée pour chacun des taxons, et la somme obtenue a été divisée par le nombre total des relevés du tableau, puis multipliée par 100 pour obtenir le CR.
Bibliographie
Arrigoni P.V., 2006. Flora dell’Isola di Sardegna, 1. Società Botanica Italiana, Carlo Delfino éditore, 448 p. (Asplenium sagittatum, p. 127).
Bange A.-J., 1952. Synonymie et nomenclature de deux « Asplenium » européens (A. hybridum et A. sagittatum). Bulletin mensuel de la Société linnéenne de Lyon, 21ᵉ année, 4 : 83-84.
Bardat J., Bioret F., Botineau M., Boullet V., Delpech R., Géhu J.-M., Haury J., Lacoste A., Rameau J.-C., Royer J.-M., Roux G. & Touffet J., 2004. Prodrome des végétations de France. Patrimoines Naturels 61, Publications scientifiques du Muséum national d’Histoire naturelle, Paris, 171 p.
Berthet P., 1981. Un nouvel hybride d’Asplenium : A. dutartrei (Fougères). Bulletin mensuel de la Société linnéenne de Lyon, 50e année, 8 : 250-253.
Bolòs O. (de) & Vigo J., 1984. Flora dels Països Catalans (Introducció. Licopodiàcies-Capparàcies), I, 736 p. (Phyllitis sagittata, p. 188).
Briquet J., 1910. Prodrome de la Flore Corse, 1. Georg & Cie Ed., 642 p (Asplenium sagittatum = Phyllitis hemionitis, p. 16-17).
CBNC (Conservatoire botanique national de Corse), 2020. Atlas biogéographique de la flore de Corse. Albiana-Office de l’environnement de la Corse, Ajaccio, 607 p. (Asplenium sagittatum, p. 90).
Coste, l’abbé H., 1906. Flore descriptive et illustrée de la France, de la Corse et des contrées limitrophes, 1. Albert Blanchard, Paris, nouveau tirage (1998), 656 p. (Scolopendrium hemionitis, p. 16).
Delage A. & Hugot L., 2015. Liste rouge régionale de la flore vasculaire de Corse. Conservatoire botanique national de Corse, Office de l’environnement de la Corse, Corte, 72 p.
Dutartre G., 1978. Compte-rendu de la séance d’octobre 1977, répartition des plantes sur le calcaire corse. Bulletin mensuel de la Société linnéenne de Lyon, 47e année, 1 : 4-6.
Foucault B. (de), 2016. Errata et compléments à propos du Prodrome des végétations de France, troisième note. Journal de botanique de la Société botanique de France 75 : 53-61 (p. 58 et 59, fiche n° 49-25).
Gamisans J., 1991. La végétation de la Corse. In D. Jeanmonod & H.-M. Burdet (eds), Compléments au prodrome de la flore corse, annexe 2, 391 p.
Gamisans J. & Paradis G., 2002. Phyllitis sagittata (DC.) Guinea & Heywood. In D. Jeanmonod & A. Schlussel, Notes et contributions à la flore corse XVIII, Candollea 56 : 327-362 (Phyllitis sagittata, p. 329).
García Criado, M., Väre H., Nieto A., Bento Elias R., Dyer R., Ivanenko Y., Ivanova D., Lansdown R., Molina J.A., Rouhan G., Rumsey F., Troia A., Vrba J. & Christenhusz M.J.M., 2017. European Red List of Lycopods and Ferns. Brussels, Belgium: IUCN, iv + 59 p. 978-2-8317-1855-2.
Gargominy O., Tercerie S., Régnier C., Ramage T., Dupont P., Daszkiewicz P. & Poncet L., 2025. TAXREF, référentiel taxonomique pour la France : méthodologie, mise en œuvre et diffusion. Rapport PatriNat (OFB-CNRS-MNHN), Muséum national d’Histoire naturelle, Paris. 47 p.
Géhu J.-M., 2006. Dictionnaire de sociologie et synécologie végétales. J. Cramer, Berlin-Stuttgart, 899 p.
Géhu J.-M. & Rivas-Martínez S., 1981. Notions fondamentales de phytosociologie. Berichte der Internat. Symposium d. Internat. Vereinigung f. Vegetationskunde : 5-33.
IGN/OEC, 2021. Cartes à 1:25 000, TOP 25 (4255 OT-Bonifacio). Institut national de l‘information géographique et forestière.
IGN/OEC, 2019. Photographies aériennes, mission Corse. Institut national de l’information géographique et forestière.
Jauzein Ph., 1989. Asplenium sagittatum (DC.) A.J. Bange In D. Jeanmonod & H.-M. Burdet, Notes et contributions à la flore de Corse IV, Candollea 44 : 337-401 (Asplenium sagittatum, p. 342).
Jeanmonod D., 1991. Asplenium sagittatum (DC.) A.J. Bange. In D. Jeanmonod & H.-M. Burdet, Notes et contributions à la flore de Corse VII, Candollea 46 : 175-226 (Asplenium sagittatum, p. 182).
Jeanmonod D. & Gamisans J., 2013. Flora Corsica, 2e édition Bulletin de la Société botanique du Centre-Ouest, n. s., n° sp. 39 : 1-1074 (Asplenium sagittatum, p. 88).
Knoerr A., 1960. Le milieu, la flore, la végétation, la biologie des halophytes dans l’archipel de Riou et sur la côte sud de Marseille. Bulletin du Muséum d’histoire naturelle de Marseille XX : 89‑173.
Lafon P., Argagnon O., Belaud A. Catteau E., Causse G., Corriol G., Culat A., Delassus L., Dumoulin J., Gaudillat V., Goret M., Mangeat M., Millet J., Noble V., Paulin D. & Soucanye de Landevoisin C.-A., 2024. Catalogue de la végétation de France métropolitaine (CatVeg). Harmonisation jusqu’au rang de la sous-alliance et répartition départementale. Bulletin de la Société de botanique du nord de la France, numéro spécial : 1-372.
Le Berre M., Pires M. & Diadema K., 2019. Typification des actions. Que faire pour quelle espèce en région Provence-Alpes-Côte d’Azur ? Rapport inédit, CBNMéd, région PACA, 17 p. + ann.
Mercier D. P., 2022. Noms français normalisés de la flore vasculaire de France métropolitaine. Evaxiana 9 : 5-570.
Mifsud S., Napier M., Fenech S. & Cassar L. F., 2016. Current status of Asplenium sagittatum (Aspleniaceae) in the Maltese islands. Flora Mediterranea 26 : 69-80.
Mucina L., Bültmann H., Dierssen K., Theurillat J.-P., Raus Th., Čarni A., Šumberova K., Willner W., Dengler J., Gavilan Garcia R., Chytrý M., Hajek M., Di Pietro R., Iakushenko D., Pallas J., Daniëls F. J. A., Bergmeier E., Santos Guerra A., Ermakov N., Valachovic M., Schaminee J. H. J., Lysenko T., Didukh Y. P., Pignatti S., Rodwell J. S., Capelo J., Weber H. E., Solomeshch A., Dimopoulos P., Aguiar C., Hennekens S. M. & Tichý L., 2016. Vegetation of Europe: hierarchical floristic classification system of vascular plant, bryophyte, lichen, and algal communities. Applied Vegetation Science 19 (1) : 3-264.
Noble V., Van Es J., Michaud H. & Garraud L. (coordination), 2015. Liste rouge de la flore vasculaire de Provence-Alpes-Côte d’Azur. Direction régionale de l’Environnement, de l’Aménagement et du Logement & Région Provence-Alpes-Côte d’Azur, 14 p.
Noble V. & Baret J. 2019. Catalogue des végétations du département des Bouches-du-Rhône. Conservatoire botanique national méditerranéen de Porquerolles, 282 p.
Olivier L., Galland J.-P., Maurin H. & Roux J., 1995. Livre rouge de la flore menacée de France, I – Espèces prioritaires. Muséum national d’histoire naturelle, service du Patrimoine naturel, Conservatoire botanique national de Porquerolles, ministère de l’Environnement, Paris, IXXXVI + 486 + CLIX (Asplenium sagittatum, p. 51).
Piazza C., Spinosi P., Quiquerez I., Delage A. & Hugot L., 2021. Stratégie de conservation de la flore vasculaire de Corse, 1re partie – Hiérarchisation des taxons et détermination des enjeux de conservation. Conservatoire botanique national de Corse / Office de l’environnement de la Corse, 102 p.
Piazza C., Spinosi P., Delage A. & Hugot L., 2022. Stratégie de conservation de la flore vasculaire de Corse, 2e partie – Typification des actions, priorisation et choix des projets. Conservatoire botanique national de Corse-Office de l’environnement de la Corse, 104 p.
Pignatti S., 2003. Flora d’Italia, volume primo. Edagricole, Bologna, 790 p. (Phyllitis sagittata, p. 60).
Pignatti S., 2017. Flora d’Italia, seconda edizione, volume primo. Edagricole, Milano, 1064 p. (Phyllitis sagittata, p. 47).
Prelli R. & Boudrie M., 2024. Les fougères et plantes alliées d’Europe, 2e éd. Éditions Biotope, Mèze, 528 p.
Reseda-Flore (coord.), 2024. Glossaire pour la conservation de la flore et des milieux naturels méditerranéens, version 2. CBNMED, CBNA, CBNC, CBNMC, CEFE-CNRS, AMAP, IMBE, ISEM, LESSEM, Tour du Valat, 15 p.
Reymann J., Panaïotis Ch. & Bioret F. (coord.), 2016. Prodrome des végétations de Corse. Documents Phytosociologiques, série 3, 4 : 1-175.
Rivas-Martínez S., Costa M. & Loidi J., 1992. La vegetación de las islas de Ibiza y Formentera (islas Baleares, España). Itinera Geobotanica 6 : 99-236.
Roux C., Bioret F. & Thébaud G., avec la collaboration de Boullet V., Brocard L. & Choisnet G., 2024. Prodrome des végétations de France 2, 1 – Synthèse des classes déclinées 2009-2024. BIOM – Revue scientifique pour la biodiversité du Massif central et des moyennes montagnes, 324 p.
Schneller J.J., 1979. Biosystematic Investigations on the Lady Fern (Athyrium filix-femina). Plant Systematics and Evolution 132 : 255-277.
Tison J.-M. & de Foucault B. (coords), 2014. Flora Gallica, Flore de France. Biotope, Mèze, xx + 1 196 p. (Asplenium sagittatum, p. 5).
UICN France, FCBN, AFB & MNHN, 2018. La Liste rouge des espèces menacées en France, chapitre Flore vasculaire de France métropolitaine. Paris, France, 31 p.
UMS PatriNat, 2021. Table des syntaxons de la déclinaison du Prodrome des végétations de France (PVF2). UMS PatriNat (OFB-CNRS-MNHN) / INPN, octobre 2021.
Vanden Berghen C., 1982. Initiation à l’étude de la végétation. Jardin botanique national de Belgique, Meise, 263 p.
Vivant J., 1968. Plantes récoltées en Corse méridionale. Le Monde des Plantes 359 : 6-8.
Webographie
https://www.gbif.org/fr/occurrence/search?taxonKey=HLDD&view=map (consultation du 23/06/2026)
https://europlusmed.org/cdm_dataportal/taxon/0bf09538-7cda-4610-88fb-92473b633660 (consultation du 23/06/2026)
https://powo.science.kew.org/taxon/urn:lsid:ipni.org:names:17371940-1 (consultation du 23/06/2026)
simethis.eu (consultation du 23/06/2026)